Математические модели в естествознании
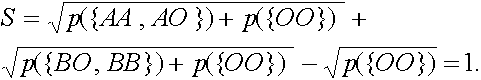
Для населения Японии известны следующие статистические данные: 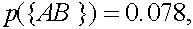
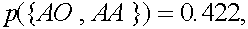
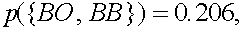
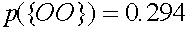 . Экспериментальное значение величины
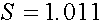 , что хорошо согласуется со статистическим прогнозом. Данное обстоятельство можно интерпретировать в пользу гипотезы.
Закон Харди -Вайнберга действует только тогда, когда скрещивание случайно, т.е. вероятность скрещивания между двумя генотипами равна произведению их частот. В тех случаях, когда скрещивание неслучайно, имеет место ассортивное, или предпочтительное скрещивание. Особи с определенными генотипами скрещиваются чаще, чем следует ожидать на основе случайности. Ассортивное скрещивание не меняет частот генов, но изменяет частоты генотипов.
Особенно интересную форму ассортивного скрещивания представляет собой инбридинг, при котором скрещивание между родственными особями происходит чаще, чем этого можно было бы ожидать на основе случайности. Инбридинг ведет к повышению частот гомозигот и уменьшает частоту гетерозигот по сравнению с ожидаемыми при случайном скрещивании. Самым крайним случаем инбридинга является самоопыление -форма размножения, широко распространенная для некоторых групп растений.
Мерой генетических последствий инбридинга служит коэффициент инбридинга. Это вероятность того, что особь является гомозиготной и оба (одинаковых) аллеля идентичны по происхождению, т.е. унаследованы у одного и того прародителя из некоторого предшествующего поколения. Отметим, что два одинаковых аллеля могут быть наследованы от разных предков. Коэффициент инбридинга обозначим через  .
Результаты инбридига в случае самоопыления анализировались еще Г. Менделем. Он исследовал потомство гетерозиготных растений (генотип Aa) после n поколений самоопыления. В первом поколении частоты гомозиготных растений: 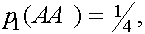
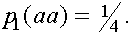 Ясно, что гомозиготные растения идентичны по происхождению. Гетерозиготные растения не идентичны по происхождению и их частота
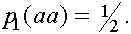 Здесь и ниже нижний индекс -номер поколения. Коэффициент инбридинга -частота гомозиготных растений, т.е.
 .
Во втором поколении потомки гомозиготных растений также гомозиготны и идентичны по происхождению. Частоты гомозиготных растений увеличиваются дополнительно за счет потомков гетерозиготных растений: 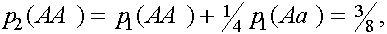
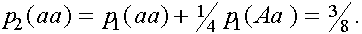
Частота гетерозиготных растений во втором поколении: 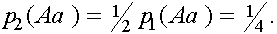 Коэффициент инбридинга
 .
Для произвольного n -ого поколения при самоопылении растений частота гетерозиготных растений 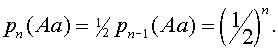
Если учесть, что 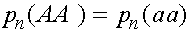 и
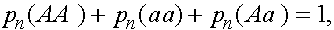 то в n -ом поколении частоты гомозиготных растений суть
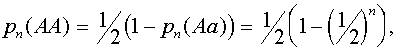
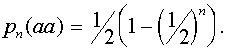
Коэффициент инбридинга соответственно 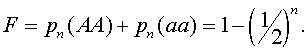
Он монотонно возрастает с ростом номера поколения Для самоопыляющихся растений с ростом номера поколения, снижается доля гетерозиготных и растут частоты гомозиготных растений. В каждом поколении коэффициент инбридинга в потомстве гетерозиготных растений один и тот же и равен  . В пределе гетерозиготные растения вообще исчезают. Этот результат и был получен Г.Менделем.
Определим значение коэффициента инбридинга в потомстве сибсов, т.е, особей имеющих общую пару родителей. Родословная потомства от скрещивания сибсов изображена на диаграмме.
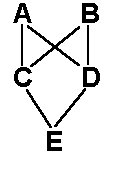
Пусть A и B -не состоящие в родстве родители, из гамет которых образуются зиготы C и D. Зигота E возникает от слияния гамет от C и D, т.е. от сибсов. Поскольку A и B не состояли в родстве, что их аллели в рассматриваемом локусе не идентичны по происхождению. Эти аллели для особи A обозначим как  , а для особи B - как
 (аллели не идентичны по происхождению, но могут быть идентичны по структуре). Нужно определить вероятность появления в потомстве сибсов гомозиготной особи. Она может принадлежать одному из четырех генотипов: или
 , или
 , или
 , или
 . Вероятность того, что родитель A передаст аллель
 сибсу C суть . В свою очередь, если особь C получила аллель , то она передаст ее особи E так же с вероятностью . В итоге особь E получит аллель
 от A через C с вероятностью
 . Вторую алелль особь E от A через D приобретет также с вероятность . Вероятность того, что интересующая нас особь E гомозиготна и принадлежит генотипу
 есть
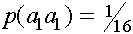 . Совершенно аналогичные рассуждения позволяют определить для особи E вероятности
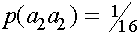 , ,
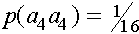 принадлежать соответствующему генотипу. Получаем коэффициент инбридинга
 , совпадающий с вероятностью того, что особь E гомозиготна и получила оба аллеля либо от прородителя A, либо B.
Существует простой метод, так называемый анализ путей, позволяющий определить коэффициент инбридинга для любого организма с известной родословной. На диаграмме, отражающей родословную рассматриваются все замкнутые пути, включающие в себя изучаемую особь, ее родителей и их общих предков. Для каждого i -ого цикла определяется коэффициент 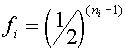 , где
 -число звеньев в цикле. Коэффициент инбридинга
 .

Поясним сказанное, вычислив коэффициент инбридинга для особи K, родословная которой изображена на диаграмме.
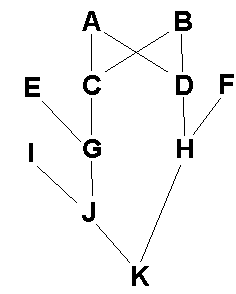
Согласно диаграмме A и B общие предки для родителей J и H особи K. Имеются два замкнутых пути K -J -G -C -A -D -H -K и K -J -G -C -B -D -H -K, каждый из которых состоит из 7 звеньев. Соответственно 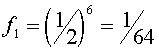 и
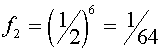 . Коэффициент инбридинга
 .
Напомним, что в результате инбридинга частоты гомозигот в популяции возрастают за счет гомозигот. В популяции с постоянным (не растущим) коэффициентом инбридинга  частота гомозигот будет составлять

 от частоты в случайно скрещивающейся популяции. Пусть частоты аллелей A и a суть p и q. Частоты генотипов в инбредной популяции с постоянным коффициентом инбридинга можно представить следующим образом:
Генотип Частота
AA 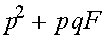 ,
Aa 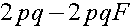 ,
aa 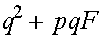 .
Частоты аллелей, а вместе с ними и генотипов сохраняются при переходе от поколения к поколению. При отсутствии имбридинга  частоты удовлетворяют закону Харди -Вайнберга.
Селекционеры стремятся вывести сорта растений и породы животных, отличающиеся максимальными показателями хозяйственно полезных признаков. При этом в качестве родителей используют наилучшие организмы, т.е. проводят искусственных отбор. Селекционеры также стараются получить как можно более однородные сорта и породы. Для этого применяют систематический инбридинг, повышающий гомозиготность. Однако, хорошо известно, что инбридинг обычно понижает приспособленность потомства. Это явление принято называть инбредной депрессией. Оно обусловлено повышением степени гомозиготности по вредным рецессивным аллелям.
Инбредной депрессии противопоставляют скрещивание между представителями независимых инбредных линий. Гибриды обычно обнаруживают заметно возросшую приспособленность - в плодовитости, жизнеспособности и т.д. При скрещивании между двумя инбредными линиями можно сохранить в потомстве гомозиготность по искусственно отобранным признакам, тогда как по вредным аллелям особи являются гетерозиготными.
Сцепление и кроссиговерГ.Мендель наблюдал независимое наследование семе признаков. Это происходило потому, что все семь соответствующих генов расположены в локусах разных негомологиных хромосом. Напомним, что у гороха в каждой клетке находится семь пар гологичных хромосом. Наблюдать независимое наследование дополнительно еще одного признака в принципе невозможно. Гены, расположенные в одной хромосоме, называются сцепленными. Рассмотрим два локуса, одной и той же хромосоме (такие же локусы присутствуют в гомологичной хромосоме). Обозначим аллели гена первого локуса через A и a, а другого -как B и b. В отличие от однолокусного случая, гаметы будем обозначать словами. Таких слов - четере: AB, Ab, aB, ab. Если бы каждая хромосома была неразрывным целым, то мысленно можно было бы объдинить два локуса в один и рассматривать однолокусную четерехаллельную популяцию. Законы наследования в такой популяции изучались выше. Однако, предсказания такой теории вступают в сильные противоречия с некоторыми экспериментальными данными.
Известнейший генетик Томас Морган проводил эксперименты с мухами - дрозофилами. Отслеживались два признака: окраска тела и длина крыльев. В результате экпериментов по скрещиванию сразу же была опровергнута гипотеза, что соответствующие локусы находятся в разных хромосомах (в этом случае признаки должны были бы наследоваться независимо, что не соответствует реальности). Пусть за окраску тела отвечает первый локус. Его аллели: A (доминантный) - коричневая окраска, a (рецессивный) -черная окраска. Длина крыльев определяется вторым локусом. Доминантный аллель B соответствует длинным крыльям, а рецессивный аллель b - коротким. При интерпретации опытов постараемся опираться на однолокусовую черырехаллельную модель. На первом этапе Т.Морган скрещивал черных длиннокрылых самок и коричневых самцов с короткими крыльями. Генотип самок -(aB)(aB), генотип самцов (Ab)(Ab). Результат скрещивания:
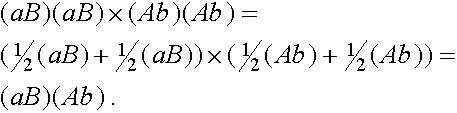
Особи этого генотипа имеют коричневую окраску и длинные крылья. На данном этапе предсказания теории полностью соответствовали результатам опыта. На втором этапе полученных самок Т.Морган скрещивал с черными самцами, имеющими короткие крылья. Они принадлежали генотипу (aa)(bb). Попытаемся предсказать результат скрещивания:
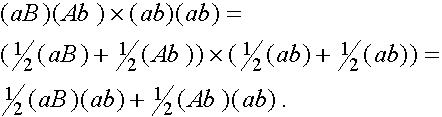
Таким образом, в результате описанной стратегии срещивания дожны появляться с вероятностью  особи двух генотипов (aB)(ab) и (Ab)(ab). Первые имеют черную окраску и длинные крылья, а вторые коричневую окраску и короткие крылья. Результат опыта оказался в противоречии с предсказаниями теории: появились мухи коричневые с длинными крыльями (8.5%) и черные мухи с короткими крыльями (8.5%). На 8.5% по сравнению с теорией уменьшилось число особей каждого из первых двух генотипов.
Была высказана гипотеза (она подтверждена), что в процессе мейоза (образавания половых клеток) гамологичные хромосомы могут обмениваться своими частями. Такой обмен аллелями между гомологичными хромосомами называется кросинговером. Его иллюстрирует рисунок.
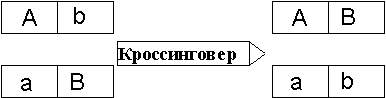
Обратим внимание на важное обтоятельство, которое легко понять, глядя на рисунок. Пусть