Математические модели в естествознании
Благодаря кроссинговеру сцепленные гены могут передаваться потомству в сочетаниях, отличных от тех, которые были у родителей. В частности на рисунке родительская особь генотипа (AB)(ab) в результате кроссинговера породила гаметы (Ab) и (aB). Без кроссинговера мейоз привел бы к появлению гамет (AB) и (ab).
Обратимся к уравнениям, описывающим эволюцию в популяции с двумя двухаллельными локусами при условии кроссинговера. Частоты гамет в текущям и последующем поколениях будем обозначать как  и
 . Так, например,
 -частота гамет, у которых в первом локусе находится аллель A, а во втором - аллель b. Частоты генотипов в текущем поколении связаны с частотами гамет этого же поколения (до мейоза). Приведем примеры. Частота гомозиготного генотипа (AB)(AB) суть
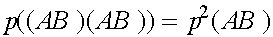 , а частота гетерозиготного генотипа (AB)(ab) - соответственно
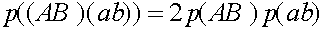 . Эти и все подобные формулы полностью соответствуют случаю одного полиаллельного локуса. Обозначим через m
и l
вероятности того, что при мейозе соответственно произошел или не произошел кроссинговер. Здесь, естественно, m
+l
=1. Выпишем уравнения для эволюции частот гамет:
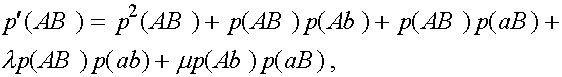
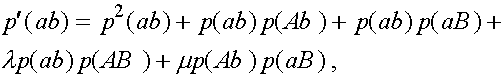
(3)
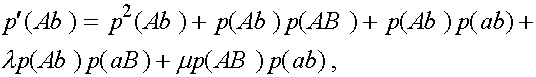
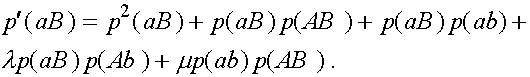
Дадим комментарии к правой части первой формулы (остальные формулы выписываются аналогично). Первое слагаемое - частота генотипа (AB)(AB). При мейозе каждая особь данного генотипа с единичной вероятность порождает гаметы (AB). Второе слагаемое - половинная частота генотипа (AB)(Ab). В силу сделанного выше замечания, несмотря на кроссиговер, каждая особь этого генотипа с вероятностью  при мейозе дает гаметы (AB) и (Ab) (нас в данном случае интересуют гаметы (AB)). Совершенно аналогично, отражает вклад генотипа (AB)(aB) в образование гамет (AB). Четвертое слагаемое выписывается из следующих соображений. При условии, что кроссинговер не произошел (вероятность l
), особь генотипа (AB)(ab) с вероятностью даст гамету (AB). Частота генотипа (AB)(ab) суть
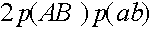 . Обратимся к последнему слагаемому. При условии кроссинговера (вероятность m
) особь генотипа (Ab)(aB) (частота
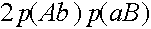 ) с вероятностью порождает гамету (AB) (см. рисунок выше). Осталось заметить, что кроссинговер ни в каком другом генотипе не может привести к появлению гаметы (AB).
Преобразуем формулы (3). Выкладки проведем на примере первой формулы. Подставляя  , получим
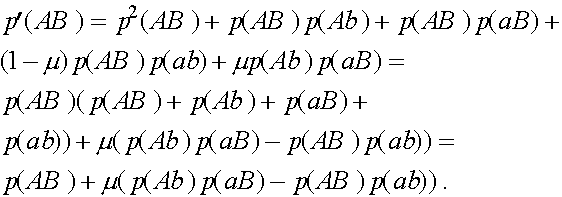
Здесь учтено, что 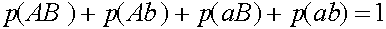 .
Введем обозначение 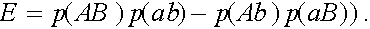
В результаты преобразований формулы (3) приобретают вид:
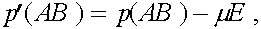
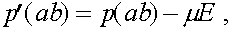 (4)
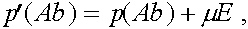
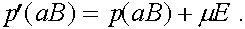
Величина  называется мерой неравновесности состояния (если
 , то частоты гамет постоянны). Рассмотрим эволюцию . В силу (4) имеем:
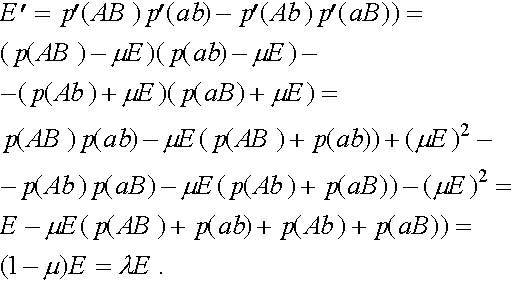
Итак
 . (5)
Проследим за эволюцией частот  ,
 ,
 ,
 (нижний индекс - номер поколения). В силу (4) и(5)
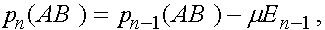 (6)
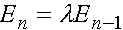 .
Это система так называемых разностных уравнений. Она решается следующим образом. Выписывается матрица правых частей уравнений:
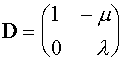 .
Находятся ее собственные значения  и
 . Матрица
 - диагональная, поэтому
 ,
 . Собственные векторы
 (нетривиальные решения систем
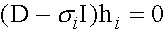 ) суть
 ,
 .
При вычислении  использовано равенство:
 . Система резностных уравнений (6) имеет два линейно независимые решения:
 и
 . Общим решением является их линейная комбинация:
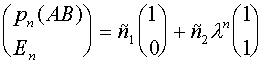 .
Константы  и
 определяются из начального условия (при
 ):
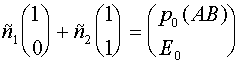 .
Получаем 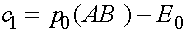 и
 . В результате получаем решение системы (6):
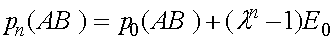 ,
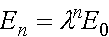 .
Совершенно аналогично исследуется изменение частот гамет (ab), (Ab), (aB):
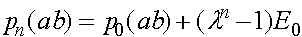 ,
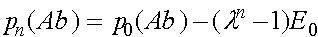 ,
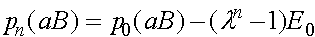 .
Из полученных формул следует, что при  (с ростом номера поколения)
 и
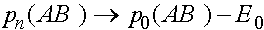 ,
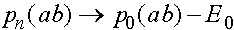 ,
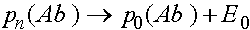 ,
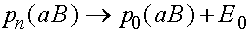 .
Тем самым, частоты гамет стремятся к состоянию равновесия, которое не достижимо за конечное число поколений. Частоты генотипов определяются через частоты гамет, а, следовательно, также стабилизируются. В отличии от случая, соответствующего закону Харди -Вайнберга, стабилизация в первом поколении не наступает.
Как уже говорилось, начальное состояние равновесно, т.е. частоты гамет в дальнейшем не меняются, если  , т.е.
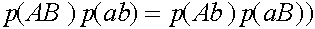 .
Исследуем условия равновесности. Рассмотрим частоты генов
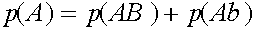 ,
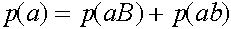 ,
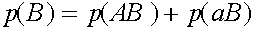 ,
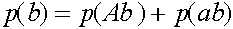 .
Легко видеть, что 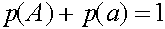 ,
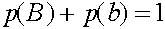 . Прямые вычисления показывают:
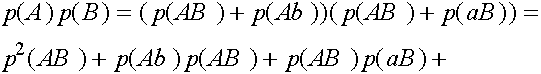
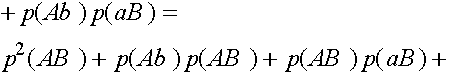
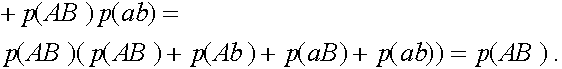
Таким образом, 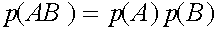 . Совершенно аналогично:
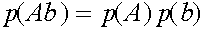 ,
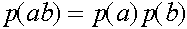 ,
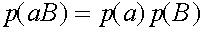 .
В равновесных состояниях частоты гамет являются произведениями частот соответствующих генов. Верно и обратное утверждение.
Формальный нейрон Мак-Каллока - ПиттсаМодель отражает единственный атрибут биологического нейрона -его способность генерировать импульсы “все, или нечего” в ответ на достаточно сильное воздействие. Нейрон Мак-Каллока - Питтса функционирует в дискретном времени. Он имеет  входов -синапсов и единственный выход. Значение выходного сигнала
 соответствует генерации спайка (состояние возбуждения). В состоянии покоя выходной сигнал
 . В момент времени
 выходной сигнал формируется в зависимости от сигналов
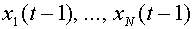 , поступивших на синапсы в момент времени
 . Последние также могут принимать значения ноль или единица. Если синаптический сигнал равен нулю, то говорят, что синапс находится в состоянии покоя. Единичное значение соответствует состоянию возбуждения синапса. Сигнал на синапс поступает либо от выхода другого нейроны, либо от сенсора -специального входа для внешних сигналов. Первоначально правила формирования выходного сигнала были введены авторами модели в виде ряда аксиом. Приведем две из них.
необходимо в момент времени  возбудить определенное, фиксированное число синапсов, которое не зависит ни от предыдущей истории, ни от состояния нейрона.
Нейрон имеет особые входы -тормозящие синапсы. Возбуждение любого из них в момент времени исключает возбуждение нейрона в момент времени
Первая аксиома отражает пороговые свойства нейрона, а вторая - подчеркивает особую роль торможения (на сетях “без запретов” нельзя реализовать произвольный алгоритм).
Впоследствии модель изменилась. Синаптические сигналы ( не обязательно бинарные) стали взвешивать и формировать суммарный входной сигнал 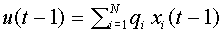 . Здесь
 -числа, которые называют синаптическими весами. Синапс называют возбудительным, если
 , и тормозным, если