Волновой генетический код
 21(
 22
-
11)
с учетом уровня нормировки
22+11=1
(4)
Нетрудно
показать, что
система (3) может
сводиться к
уравнению (при
выкладках
вторыми гармониками
~ exp(2i 21t)
пренебрегалось):
 22+
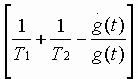
 22+
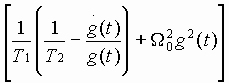
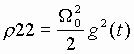

22
(0) =
22
= 0, (5)
где
 =Eo
 21/
 - частота Раби.
Заметим, что
амплитудная
модуляция поля
приводит не
только к модуляциям
частоы Раби,
но и к модуляции
“коэффициента
трения” осциллятора.
Ниже рассматривается случай T1=T2=T. Можно показать, что уравнение (5) допускает точное решение для произвольной функции g(t):
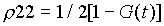 (6)
G(t)=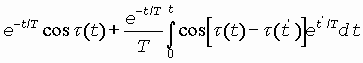

 (t’)dt’
(7)
Рассмотрим случай периодической модуляции амплитуды напряженности поля
g(t)=cos t
. (8)
Если
период модуляции
T =2
 /
 короче времени
релаксации
(T
 <
 22>=1/2

 (9)
и, соответственно, (4):
 11>=1/2
 ,
где
 -
функция Бесселя
нулевого порядка,
так что для
разности
населенностей
уровней 2 и 1 имеем
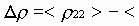

 =
 .
(10)
Из
(10) четко следует,
что в диапазонах
параметра
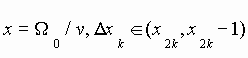 ,
где k=1,2,.. и
 -
корни функции
Бесселя, вероятность
заселения
уровня 2 превосходит
таковую для
уровня 1. Другими
словами, мы
имеем перевозбужденное
инвертированное
состояние
осциллятора,
что является
необходимым
условием для
создания условий
лазерной генерации
(
 ).
Ситуация здесь
аналогична
процессу раскачивания
маятника с
пульсирующей
точкой подвеса
(маятник Капицы,
классическое
рассмотрение).
Для больших времен, t>>T, функция G(t), входящая в соотношение (6), имеет вид:
G(t)=P(t)cos +
Q(t)sin,
P(t)=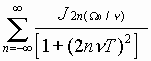
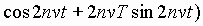
Q(t)=2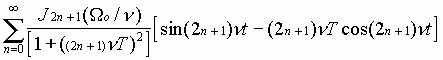 ,
(11)
где J - функция Бесселя соответствующего порядка.
Из
(11) следует важный
вывод: когерентный
механизм
взаимодействия
Фрелиховских
мод с резонансным
амплитудно-модулированным
полем обусловливает
незатухающие
колебания
диагональных
элементов
матрицы плотности
для времен t,
превосходящих
времена релаксации
системы, причем
частоты пульсаций
кратны частоте
амплитудной
модуляции
 .
Усредняя
(11) за период T,
получаем
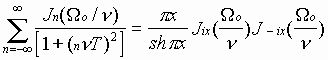 ,
(12)
где
x= -
функции Бесселя
мнимого порядка
(i - мнимая единица).
В частном случае,
когда период
модуляции
T
 короче
времени релаксации
T, x <<1,
 >=1/2
 ,
 >=1/2,
(13)
так что
 >
-
 >=
-
 .
(14)
В данном случае эффект инверсии не реализуется.
Рассмотрим случай, когда закон модуляции задается соотношением
g(t)=1+ .
(15)
По
аналогии с
предыдущим
для функции
G(t), входящей в
соотношение
(6), можно получить
(T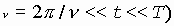 .
G(t)=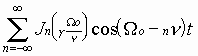 .
(16)
Из
(16) видно, что
спектр пульсаций
диагональных
матричных
элементов
 и
 включает,
кроме частоты
Раби, “стоксовые”
и “антистоксовые”
комбинационные
частоты

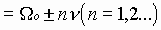 .
Допустим для
определенных
n выполнено
условие
 ,
т.е.
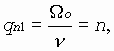 (17)
тогда,
как следует
из (16), постоянная
составляющая
для вероятностей
и
сдвигается.
Динамическому
состоянию
равновесия
при этом соответствуют
величины:
>=1/2 ,
 >=1/2,
(18)
так
что
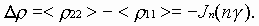
Эффект
инверсии ( реализуется
при условии
 .
(19)
Если
параметр глубины
модуляции
 лежит
в диапазонах,
где значения
функции Бесселя
 отрицательны,
то реализуется
режим перевозбуждения
системы (информационных
биомакромолекул
и надмолекулярных
структур).
Таким образом, высказана идея принципиальной возможности создания биолазеров на Фрелиховских модах in vitro, а также инициации таких процессов в живой клетке в дополнение (или коррекции) к известным естественным лазероподобным процессам в биосистемах. Показано, что в определенных условиях - в случае когерентного (резо-нансного) взаимодействия амплитудно-модулированного внешнего электромагнитного излучения с Фрелиховской модой - система информационных биоструктур может существовать в перевозбужденном состоянии, что является необходимой предпосылкой для создания знаконесущих биолазеров.
Необходимо отметить,что описанный выше механизм формирования биолазеров на основе молекул ДНК позволяет подойти к попытке реализации еще одной фундаментальной гипотезы Фрелиха о возможности перекачки энергии kТ внутриклеточной жидкости в энергию электрических колебаний в молекуле ДНК. В соответствии с этой гипотезой стохастические тепловые колебания kТ раствора могут резонансно взаимодействовать (в определенном интервале частот) с колебательными модами молекулы ДНК, и благодаря тому, что как молекула ДНК, так и молекулы белков представляют собой распределенные нелинейные колебательные структуры, часть энергии может группироваться в низкочастотных модах этих молекул. Иными словами, молекула ДНК в растворе может частично преобразовывать энергию колебаний kТ в энергию собственных мод. Заметим, что даже в рамках предложенного квазили-нейного подхода проблема перекачки тепловой энергии раствора может быть сведена к механизму затухания квантового осциллятора, который был предложен А.Пиппардом. C учетом этого в уравнение Шредингера вводится комплексный потенциал, интерпретирующий передачу энергии осциллятора большому числу мод расширяющегося сферического резонатора. Если размеры этого резонатора конечны, как в случае с живой клеткой, то возникнет резонансный обмен энергии между модами kТ раствора и электрическими модами молекулы ДНК. Эти рассуждения также говорят в пользу того, что и в водно-жидкокристаллическом электролите клеточно-тканевого пространства биосистемы генетические молекулы могут функционировать как биолазеры.
Надо указать на существенное обстоятельство относительно принципиальной возможности реализации возбуждения Фрелиховских мод “in vitro” по биохимическому пути, а именно за счет энергии гидролиза АТФ и других нуклеозид-трифосфатов, а также за счет других макроэргических соединений живой клетки. В данном случае мы будем искусственно повторять то, что эволюционно и (или) иным путем дано биосистемам как основная информационная и, может быть, энергетическая фигура. Эта часть наших исследований ставит определенные нравственные и этические проблемы применения биолазеров.
АНТЕННАЯ МОДЕЛЬ ФИЗИКО-МАТЕМАТИЧЕСКИЙ ФОРМАЛИЗМ [16]
Как уже неоднократно отмечалось, функционирование ряда биологических макромолекул (в частности, ферментов) и других биологических соединений во многом определяется процессами, происходящими в активных центрах, окруженных биополимерными цепочками, имеющими знаковую топологию. Исходя из такого представления о структуре информационных биомакромолекул, естественно предположить, что их взаимодействие с физическими полями внешних по отношению к биосистеме и внутренних (организменных) излучений приводит к возбуждению дипольно-активных колебаний мономеров, формирующих указанную цепочку, а те, в свою очередь, индуцируют колебания в активном центре. Иными словами, такая система будет работать как своеобразная антенна. Эти возбужденные колебания способны привести к переходу биомакромолекулы в другое конформационное (топологическое, знаковое) состояние.
Подобная концепция в принципиальном плане адекватна целому ряду функционально высокозначимых биомакромолекул, например, хлорофилла, гемоглобина, миоглобина и т. д. Эти макромолекулы объединяются двумя структурными качествами: 1) в их геометрическом центре расположен ион (в случае хлорофилла - ион магния, в случае гемоглобина - ион железа); 2) около иона симметрично расположены 4 пиррольных кольца (псевдоплоская структура).
Другими типами биополимеров, соответствующих антенной модели, могут быть cравнительно простые циклы типа валиномицина (переносчик ионов калия) и сложные надмолекулярные структуры хромосом, ДНК которых содержит высокоорганизованные ассоциаты таких металлов, как магний, кальций, никель, кобальт, медь, железо, цинк и др. При этом роль их неясна и сводится исследователями, в основном, к нейтрализации ОН-групп остатков фосфорной кислоты полинуклеотида. Представляется, что функции металлов в ДНК и РНК существенно более широкие и реализуются по линии знакового и (или) энергетического взаимодействия с эндогенными и экзогенными по отношению к биосистеме физическими полями. То же относится и к белкам, не содержащим порфириновый центр, но специфическим образом связывающим металлы. Например, таковыми можно считать сайт-специфические белки с доменами типа “цинковых пальцев”, участвующими в регуляции генов, подчас очень далеко отстоящих от этих управляющих белков. Атомы металлов ДНК и белков могут резонансно взаимодействовать по электромагнитным каналам в рамках понятий антенной модели. Еще раз обозначим понятие антенной модели.
Внешняя энергия (в частности, связанная с резонансным взаимодействием крайне высокочастотных электромагнитных излучений с белками) поступает на периферию, т. е. на ансамбль субъединиц (не обязательно идентичных по структуре). В результате активной “беседы”, предопределенной биохимическими связями, между периферийными акцепторами (получившими закодированную энергию) и центром-ассоциатом (в данном случае ионом металла гемсодержащих белков), последний получает энергию (информацию), что и вызывает биологическое действие. Степень реакционной способности биомакромолекул существенно зависит от уровня возбуждения центральных субъединиц. Рассмотрим в деталях потенциальные механизмы волновых взаимодействий физических полей и активных центров информационных биомакромолекул в рамках предлагаемой нами антенной модели.
В качестве простейшей модели для иллюстрации антенного эффекта рассмотрим двумерную замкнутую (циклическую) цепочку мономеров. В центре цикла расположен активный центр, связанный с мономерами цепочки диполь-дипольным взаимодействием.
Обозначим
координатные
смещения мономеров
через
 ,
а смещение
активного
центра через
 .
Для потенциальной
функции имеем:
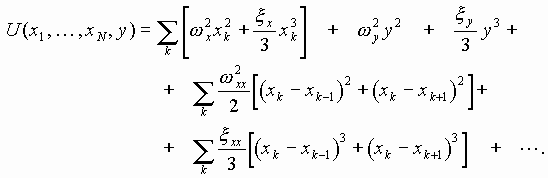 (1)
Первые два члена в (1) соответствуют колебаниям мономеров (второй член учитывает ангармонизм); последние два члена отвечают за связи между мономерами, Остальные члены отвечают за связи между мономерами и активным центром.
Уравнения движения запишем в виде:
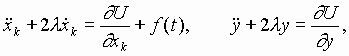 (2)
где
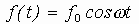 -
внешняя монохроматическая
сила, действующая
только на мономеры,
 -
коэффициент
затухания,
введенный
феноменологически
(простоты ради
принят одинаковым
и для мономеров,
и для активного
центра).
С учетом (1), система уравнений (2) приобретает вид:
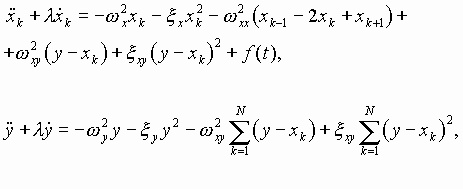 (3)
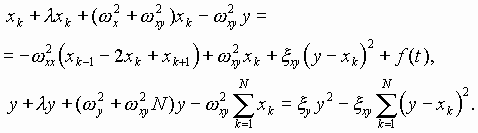 (4)
Введем общую координату для ансамбля мономеров
 .
(5)
тогда система уравнений (4) в линейном приближении приобретает вид:
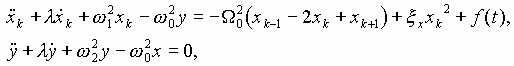 (6)
где:
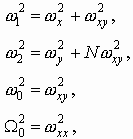
 -
число мономеров.
С
учетом (5) имеем
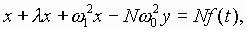 (7.1)
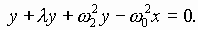 (7.2)
Из
(7.2) следует
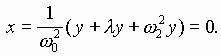 (8)
Подстановка (8) в (7.1) дает
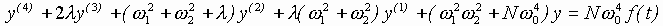 .
(9)
Соответствующее
характеристическое
уравнение имеет
вид (после
подстановки
 в
однородное
уравнение):
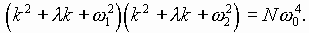 (10)
Обозначив
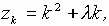 имеем
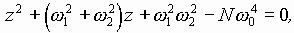
так что
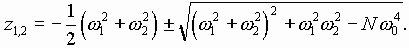 (11)
В дальнейшем предполагается выполнение неравенств:
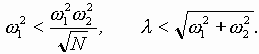 (12)
Первое условие соответствует случаю слабой связи между мономерами и активным центром, второе - малому затуханию мономерных осцилляторов.
Для собственных значений имеем
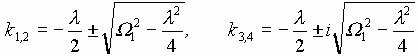 ,
(13)
где введены коллективные частоты:
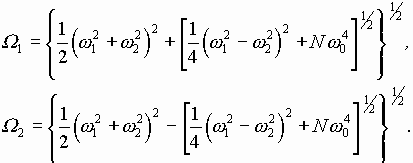 (14)
Нас
интересуют
вынужденные
колебания
(внешняя сила
 ):
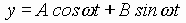 .
(15)
Подстановка
(15) в (9) и приравнивание
соответствующих
коэффициентов
при
 и
 дают
систему алгебраических
уравнений:
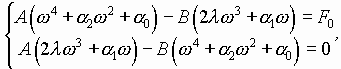
где:
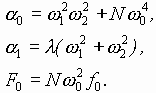
В
результате
получаем
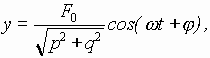
где
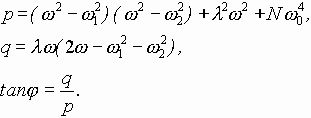
После несложных, но громоздких преобразований для вынужденных колебаний активного центра получаем:
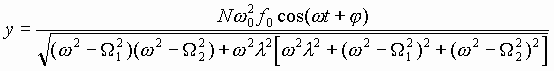 .
(16)
Из
(16) видно, что
наибольшая
амплитуда
вынужденных
колебаний
активного
центра достигается
в условиях
коллективного
резонанса: либо
 ,
либо
 .
В любом из этих случаев для амплитуды вынужденных колебаний имеем:
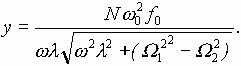 (17)
Из (17) следует, что наибольший эффект резонансной раскачки активного центра достигается при большем числе периферийных субъединиц “антенны”, при более высоком значении коэффициента связи активного центра с мономерами, при наименьшем коэффициенте затухания и при наименьшем дисбалансе коллективных мод.
Нетрудно определить и “хореографию” (динамику вынужденных колебаний) отдельных мономерных единиц. В соответствии с (6) уравнение для k -го мономера запишем в виде:
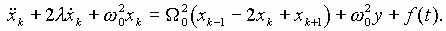 (18)
Вводя коллективные координаты
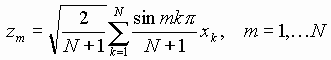
и применяя метод линейной алгебры, получаем для вынужденных колебаний мономеров:
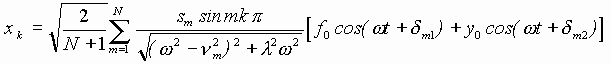 ,
(19)
где:
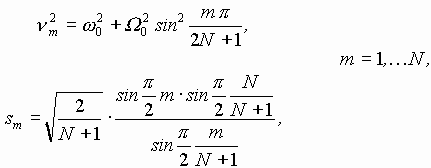
 -
определяется
из (16)
Таким
образом, в рамках
антенной модели
наибольший
эффект воздействия
внешнего
монохроматического
поля
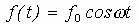 ре-ализуется
в условиях
коллективного
резонанса:
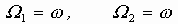 .
Повторяя рассуждения раздела 2, можно сделать также следующие выводы:
1) При реализации амплитудной модуляции внешнего сигнала имеют место дополнительные возможности резонансного воздействия на биомакромолекулы на частотах:
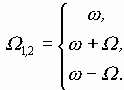
2)
Учет нелинейности
при квадратичной
связи для
монохроматического
сигнала привносит
дополнительный
резонанс на
второй гармонике

3) Учет нелинейности при амплитудной модуляции определяет еще ряд резонансных возможностей:
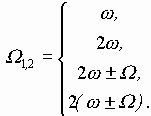
Таким образом, при действии резонансного электромагнитного поля на биомакромолекулы с активным центром, содержащим атомы металлов, существенную роль играют коллективные волновые эффекты. В этом случае свойства самого излучения предопределяют широкие возможности регуляторного влияния на динамику биомакромолекул в целом и, следовательно, на биопроцессы, в которых они принимают участие, тем самым прямо или косвенно реализуя управляющие и (или) дезорганизующие сигналы.
КОНВЕРСИЯ ЭПИГЕНОСИГНАЛОВ В ЭЛЕКТРОМАГНИТНЫХ СОЛИТОННЫХ СТРУКТУРАХ, ИХ ТРАНСПОЗИЦИЯ В ГЕНОМ БИОСИСТЕМ-АКЦЕПТОРОВ
Детально методы и эксперименты по дистантной трансляции и биологической активности электромагнитных солитонов, синтезированных на основе явления возврата Ферми-Паста-Улама (ФПУ) и промодулированных эпигеносигналами, приведены в работе автора [25]. Здесь же отметим принципиальные позиции, разграничивающие прежние представления о работе генов как чисто вещественных образований и наших представлений о знаковых волновых излучениях (“волновых генах”) хромосомного континуума.
Реальные и достоверные эксперименты в области волновой генетики первым начал проводить Дзян Каньджэн. Итоговые работы его известны [Дзян Каньджэн. 1993. Биоэлектромагнитное поле - материальный носитель биогенетической информации. Аура-Z. № 3. с.42-54. Патент №1828665 “Способ изменения наследственных признаков биологического объекта и устройство для направленной передачи биологической информации”. заявка № 3434801. приоритет изобретения 30.12.1981г., зарегистрировано 13.10.1992г.]. Прибор Дзян Каньджэна, дистантно (десятки сантиметров) передающий “волновые гены” от донора к реципиенту, использует собственные излучения биосистем-доноров, причем, как считает автор, только в СВЧ-дипазоне электромагнитных полей. Авторское теоретическое обоснование эффектов, полученных с помощью этой аппаратуры, откровенно слабо, а точнее, просто неверно. Однако результаты убедительны. Это “волновые” гибриды пшеницы и кукурузы, земляного ореха и подсолнуха, огурца и дыни, утки и курицы, козы и кролика. Полученные гибридами признаки передаются по наследству. Блестящий эмпирик