Волновой генетический код
Вслед за этими исследованиями мы, уже своими методами, подтвердили принципиальную возможность дистантной трансляции и акцепции эпигенетических управляющих сигналов in vitro-in vivo в форме особого вида электромагнитного поля. Это еще раз подтвердило идеи А.Г. Гурвича, А.А. Любищева и В.Н. Беклемишева, но на современном уровне. Стало ясно, что “волновые гены” могут существовать, в частности, как одна из форм явления возврата ФПУ, что хорошо коррелирует с нашими данными по ФПУ-возврату на уровне нелинейной динамики ДНК in vitro. Именно это фундаментальное явление и легло в основу конструкции генератора ФПУ, приближенно моделирующего знаковые электродинамику и акустику ДНК in vivo и потому способного “считывать” и ретранслировать управляющие метаболизмом биосистем солитонные структуры с хромосомного континуума биосистем-доноров и резонансно вводить их в геном биосистем-акцепторов.
В связи с принципильной важностью феномена моделирования ФПУ-процессов в геноме высших биосистем при помощи особых радиоэлектронных устройств (ФПУ-генераторов) имеет смысл остановиться несколько подробнее на феномене ФПУ-возврата. Это явление было обнаружено в 1949 г. как результат компьютерного исследования динамики колебаний в цепочках нелинейно связанных осцилляторов. Оказалось, что против всякого ожидания энергия первоначального возмущения крайних осцилляторов в таких цепочках не термолизовалась, а распределившись по высшим гармоникам, затем вновь собиралась в спектр первоначального возмущения. При увеличении числа осцилляторов в цепочке картина возврата энергии неизменно сохранялась. Эта проблема получила название возврат Ферма-Паста-Улама по именам Э.Ферми, Д.Паста и З.Улама, которые первыми исследовали эту задачу. В дальнейшем возврат ФПУ был экспериментально обнаружен в длинных электрических линиях с нелинейными элементами в плазме, а также в динамике волн на глубокой воде. Замечательным свойством возврата ФПУ оказалось наличие “памяти” в его спектре к начальным условиям его активных мод.
Результаты исследований в области изучения возврата ФПУ позволили теоретически рассмотреть молекулу ДНК в виде электрического резонатора ФПУ. В этой модели динамика волны плотности электронов, распространяющейся вдоль сахаро-фосфатных цепей молекулы ДНК, рассматривалась в рамках нелинейного уравнения Шредингера в форме, предложенной Юэном и Лэйком для описания динамики солитонных волн на глубокой воде. При этом осцилляции плотности электронов в структурах нуклеотидов понимали как возмущающие точечные источники, расположенные на одинаковых расстояниях вдоль сахаро-фосфатных цепочек ДНК, интерпретируемых как длинная электрическая линия.
В дальнейшем эта модель была развита А. А. Березиным совместно с автором [25]. В частности, были рассмотрены электрические поля (E', E") обеих цепочек ДНК, где E' - средняя амплитуда напряженности электрического поля за один пространственный период стоячих волн в первой цепи ДНК, а E" - средняя амплитуда напряженности электрического поля за один временной период стоячих волн во второй цепи. Если принять, что колебания E' и E" генерируются молекулой ДНК в окружающее пространство, тогда вне молекулы ДНК поля E' и E" образуют сферические фронты. При этом в силу представления стоячих волн в молекуле ДНК в виде двух противоположно направленных бегущих фронтов возмущений, от источника (молекулы ДНК) будет расходиться сферическая волна E', а к источнику будет сходиться сферическая волна E", поскольку волны от молекулы излучаются в нелинейную среду - внутриклеточную жидкость. Динамика этих волн может быть описана в сферических координатах. Для E" частное решение будет выглядеть аналогично. Было получено выражение, представляющее собой интенсивность электрической волны на сфере определенной толщины вокруг молекулы ДНК, своего рода “сферическая голограмма”, существующая в электролите клеточно-тканевого пространства в сферическом слое. Предложенная модель указывает на возможность существования вокруг молекулы ДНК в составе хромосом сферических акустико-электромагнитных солитонов (бри-зеров), которые интегрально отображают структуру хромосомного континуума и могут двигаться за пределы клеточных ядер или совершать колебательные движения относительно некоего положения равновесия и которые содержат статико-динамические квазиголографические (в общем случае дифракционные) решетки с эпигенознаковой образно-семан-тической нагрузкой. Такие решетки отображают текущее и (или) относительно постоянное пространственно-временное состояние организма в каждой области многомерной структуры высших биосистем, где в данный момент находится бризер. Наличие тепловых возмущений (kT) молекулы ДНК, а также возможность существования фуранозных колец нуклеотидов в виде двух конформаций, приводят к усложнению модели и необходимости введения в нее фазовых флуктуаций электронной плотности.
Однако, учитывая, что спектр ФПУ может служить преобразователем стохастических колебаний в детерминированные, стохастическая компонента динамики колебаний электронной плотности в молекуле ДНК является, вероятно, ее атрибутом.
ГЕНЕРАТОР ПАКЕТОВ УЕДИНЕННЫХ ВОЛН (СОЛИТОНОВ) В ФОРМЕ ВОЗВРАТА ФЕРМИ-ПАСТА-УЛАМА
Данная теоретическая модель нелинейной знаковой акусто-электродинамики ДНК легла в основу создания семейства радиоэлектронных устройств - генераторов пакетов уединеных волн в форме возврата Ферми-Паста-Улама (ФПУ-генераторов), предназначенных для генерации электромагнитных волн (солитонов), обладающих характерной пространственно-временной структурой возврата ФПУ, которое выражается в периодическом переходе колебательной структуры от упорядоченного состояния к хаотическому и обратно. При этом в упорядоченном состоянии первоначальная форма волнового пакета и его пространственно-временной спектр полностью повторяются. Важной особенностью ФПУ-генераторов является пространственно-временная структура его поля, которая является относительно простой физической моделью колебательной структуры молекулы ДНК. Это свойство позволяет использовать генератор в экспериментах по исследованию собственных колебаний в препаратах ДНК и по информационному взаимодействию биологических систем, о которых говорилось выше. Первые модели таких генераторов были созданы А. А. Березиным и соавторами (1988, 1989 г. г. ), а затем в 1991г. были принципиально дополнены П. П. Гаряевым и Г. Г. Комиссаровым за счет интеграции в их схемы кодирующего акустического ввода.
Принципиальная схема генератора содержит ФПУ-резонатор в виде двух длинных линий с подключенными к ним нелинейными элементами (туннельные диоды). Напряжение смещения туннельных диодов задается стабилизаторами на транзисторах и стабилитроне. Выбор рабочей точки туннельных диодов и способ их подключения к ФПУ-резонатору обеспечивают форму и спектр колебаний генератора, которые соответствуют нормальным колебаниям одномерной решетки слабо связанных нелинейных (ангармонических) осцилляторов с периодическими граничными условиями, при которых наблюдается явление возврата ФПУ. Для модуляции поля генератора внешними акустическими сигналами может быть использован угольный микрофон. Генератор питается от двух аккумуляторов типа ЦНК 0, 45-I-У2.
С помощью ФПУ-генератора и эмбрионов-доноров удалось непермиссивно дистантно (20 см - 2, 0 м) осуществить эмбриональную индукцию нейральных и мезодермальных производных в ткани эктодермы ранней гаструлы шпорцевой лягушки. Были получены результаты и по восстановлению нативной структуры у аберрантных радиационно поврежденных хромосом пшеницы и ячменя [25,29]. Это показывает реальность существования и моделирования знаковых электромагнитных полей геноволнового уровня, управляющих стратегическим метаболизмом биосистем, их наследственностью, и подтверждает близкие результаты, полученные Дзян Каньджэном.
ЕДИНСТВО ФРАКТАЛЬНОЙ СТРУКТУРЫ ДНК-"ТЕКСТОВ" И ТЕКСТОВ НА ЕСТЕСТВЕННЫХ ЯЗЫКАХ
Существует и другая семантическая ниша знаковых процессов в наследственном аппарате высших биосистем, связанная с его квази-речевыми характеристиками, а также с генетической атрибутикой словообразований в естественных человеческих языках. Ранее получены доказательства, что развитие языков и человеческой речи подчиняется законам формальной генетики. По сути, “тексты” ДНК (квазиречь) и письменность людей, их разговор (истинная речь) выполняют одинаковые управленческие, регуляторные функции, но в разных фрактально-сцепленных масштабированиях. ДНК генетически функционирует на клеточно-тканевом уровне, а человеческая речь, как макрогенетическая структура, используется на уровне общественного суперорганизма. Нам удалось несколько отойти от предшествующей метафоричности использования понятий лингвистики применительно к ДНК, когда произвольно используют термины “слово”, “текст”, “пунктуация”, “грамматика”, интуитивно пытаясь понять иные измерения генома. Такому отходу способствовало применение теории фракталей и метода перекодировок к последовательностям ДНК и структуре текстов людей. Выяснилось, что ДНК и человеческая речь (тексты) обладают стратегически близкой фрактальной структурой в геометрическом смысле. Вероятно, это каким-то образом коррелирует с фрактальной структурой солитонного акустического и электромагнитного ФПУ-поля, генерируемого хромосомным аппаратом высших биосистем. Возможно, именно по этой причине нам удалось зарегистрировать управленческие эффекты на геномах растений, вызываемые с помощью ФПУ-трансформированной человеческой речи, которая резонансно взаимодействует с хромосомной ДНК in vivo [25,29].
Этот результат, осмысленный нами с позиций семиотико-волновой составляющей генетического кода, имеет существенное методологическое значение и для анализа таких суперзнаковых объектов, как тексты ДНК, и для генома в целом. Открываются принципиально новые смысловые ареалы хромосомного аппарата. Однако биологии и гено-лингвистике предстоит пройти еще большой путь, прежде чем картина знаковых рядов ДНК станет относительно ясной и понимаемой. Вводимый нами способ мышления относительно функций генома позволяет сопоставлять различные естественные последовательности ДНК и РНК с оценкой меры их сходства и различия, а также степени относительной сложности их знаковой структуры. И кроме того, что более важно, появляется метод сопоставления смысловых конструкций человеческой речи и кодирующих последовательностей ДНК. Если мы правы в своих логических и экспериментальных построениях, то в общем плане видны новые измерения в понимании мышления и сознания через их отображения в знаковых (смысловых) рядах на разных уровнях организации живой материи - на уровне человеческой речи (высшая форма сознания) и квазиречи генетических молекул (квази-сознание генома). Это хорошо соответствует математико-лингвистической модели Хомского, постулирующей общие принципы, которые лежат в основе любого языка и которые объединяются в “универсальную грамматику”. Такая “универсальная грамматика”, по Хомскому, является врожденной, т. е имеет генетические детерминанты. Это чрезвычайно важное обстоятельство, которое еще раз фокусирует мысль на супергенетическом родстве знаковых структур ДНК и речевых образований человека. В какой-то мере мы подтвердили указанное положение, показав родство фракталей ДНК и человеческой речи. Хомский, вероятно, прав в том, что глубинные синтаксические конструкции, составляющие основу языка, передаются по наследству от поколения к поколению, обеспечивая каждому индивидууму возможность овладеть языком своих предков. То, что ребенок легко учится любому языку, объясняется как раз тем, что в своей основе грамматики всех языков совпадают. Суть человеческого языка инвариантна для всех людей. Можно думать, что эта инвариантность распространяется глубже, достигая макромолекулярных смысловых (“речевых”) структур хромосом. И этому есть определенные теоретико-экспериментальные подтверждения, полученные нами [25,29] и выводящие на существенно значимые методологические подходы мягкого регуляторного вхождения в неизвестные ранее семиотические пласты генетического аппарата высших биосистем. Но в этом же заключена и грозная опасность стратегических семиотико-волновых искажений знакополевого окружения Земли. Идеи волновой (и “речевой”) генетики находятся в фазе активного становления и поэтому необходима система жестко определенных запретов определенных экспериментов в этой области знания, подобная существующей в генной инженерии, например, по клонированию высших организмов.
Независимое подтверждение правильности гипотезы существования квази-вербального или, что одно и то же, образного уровня кодовых функций ДНК (в пределе хромосомного континуума биосистемы) может дать выход из ограниченного, а иногда неверного, функционального поля триплетного генетического кода, не объясняющего ни синтез белковых “текстов”, ни то, как в геноме зашифрована пространственно-временная структура организма. Конечная цель предлагаемого анализа выделение знаковых единиц различных уровней и понимание их семантики в функциональном пространстве ДНК- белок, которое, по крайней мере для ферментов, чрезвычайно гетерогенно (активный центр, сайты узнаваний, архитектоника водородно-гидрофобных сил самоорганизации пептидной цепи). Многоязычный метаболический “разговор” между информационными биополимерами клетки и их функционирование как результат обмена знаковыми биосигналами предполагают два взаимно коррелированных уровня этого обмена - вещественный и волновой. Вещественный хорошо изучен (матричное копирование ДНК-РНК-белки, взаимодействие антиген-антитело, самосборка клеточных структур), а тесно связанный с ним волновой уровень практически не изучен официальной наукой. И ситуация здесь непроста. Электромагнитные и акустические излучения белков, нуклеиновых кислот, мембран и цитоскелета хорошо известны. Представляется, что этот уровень информационных контактов клеточно-тканевого пространства выводит метаболические процессы в полевое измерение со своей “языковой” спецификой и регуляцией.
Рассматриваемые биоинформационные потоки, сцепленные с обменом веществ и энергии, не ограничиваются делением знаковых рядов на вещество и поле, но многократно умножаются фрактальностью этих рядов. Например, в акустико-электромагнитной компоненте сигнальных функций ДНК наблюдается фрактальность солитонного поля, формально описываемого уравнениями в рамках явления возврата Ферми-Паста-Улама. Это еще более усложняет семантический анализ белково-нуклеиновых и иных информационных контактов биоструктур. Можно полагать, что в живых клетках существует иерархия вещественно-волновых знаковых структур, где условную градацию “буква (фонема) - морфема - слово - предложение...” задает фрактальность этих структур. И то, что в одном масштабе является “предложением”, в другом, более крупном, может быть лишь “словом” и т. д. Другая сложность связана с понятием “рамки считывания”. Сдвиг на одну букву (или эквивалентное этому небольшое изменение фазы, поляризации, частоты физических полей в пространстве-времени биосистемы) может полностью поменять смысл читаемого текста (воспринимаемого образа), не говоря уже о том, что сами тексты, к примеру, в одних и тех же последовательностях ДНК могут быть записаны разными языками. Более того, нет запрета на понимание “текстов” жидкокристаллических хромосомных ДНК, как читаемых в трех- или n-мерном пространстве, когда “буквы слов” выстраиваются не только в одну линию и в одном измерении, но “читаются” вдоль и поперек, вверх и вниз и так далее. В таком процессе поочередно создается и уничтожается бесконечный континуум анизотропных “нитей текстов”, идущих во всех направлениях динамичного интерфазного хромосомного континуума всего пространства биосистемы. Предлагаемая логика неизбежна, если мы хотим понять сущность феномена жизни. Сказанное не следует рассматривать как предтечу пересмотра только принятой модели триплетного генетического кода. Она, эта модель, удобна,но только как исходная позиция, когда дешифрован (неточно и не до конца) первичный уровень кодонов иРНК, уровень вещественно-матричных геносигналов, составляющих 1 - 5% от всей массы геномной ДНК. Оставшаяся большая часть ДНК, существующая в понимании большинства генетиков в качестве "мусорной", несет, вероятно, стратегическую информацию о биосистеме в форме потенциальных и действительных волновых сигналов солитонной, голографической и иной образно-знаковой, в том числе и рече-подобной структуры (подробно см. выше главу “Пересмотр модели генетического кода”).
Вероятно, в прямой связи со всеми рассмотренными “аномальными” свойствами генома высших биосистем стоит феномен особого рода, требующий пристального внимания. Это проблема происхождения жизни, и в частности на Земле. Обсуждается она давно. Предположений много. Мы придерживаемся гипотезы панспермии, но не в том варианте, что на Землю были занесены некие споры-родоначальники всех жизненных форм. Вероятно, процесс естественной эволюции абиогенно возникшего “первичного бульона” из органических молекул - предшественников РНК, ДНК, белков и других существенных компонентов биосистем был сочетан с актом введения экзобиологической информации в первые нуклеиновые кислоты, она была артефактом. И эта информация была рече-подобной. “В начале было слово...”. И эти слова были фрактальны, условно начиная с дуплетно-триплетного кода ДНК-РНК, на первых этапах являющегося простейшим языком с четырех буквенной азбукой. Далее произошла трансляция в 20-буквенную азбуку белков и в более высокие языки в духе обсуждавшихся идей. Вообще гипотеза артефакта первичного языка ДНК широко обсуждается, начиная с пионерской работы В. И. Щербака, показавшего искусственность (привнесенность извне) коллективных симметрий генетического кода, вероятность эволюционного происхождения которых близка к нулю. Можно солидаризироваться с такой позицией не только по причине ее красоты и изящного способа доказательств, где в качестве реперных единиц теоретического анализа используются такие параметры, как нуклонные соотношения в аминокислотах и вырожденность генетического кода, но и потому, что она хорошо соответствует нашему мышлению. Однако, введем поправку. Поскольку на самом деле генетический код, то есть код биосинтеза белков, существенно отличается от принятого в начале 60-х г. хх века (см. выше), то и концепция артефакта кода также нуждается в уточнении. Можно предсказать в истинном (фрактальногетеромультиплетном) коде наличие и других знаковых математических образований, фрактально увеличенных по сравнению с теми, что открыл В.И. Щербак.
Развивая эту мысль и ранее выдвинутые нами идеи, скажем, что было бы наивным упрощением считать “языки” и “письменность” (“речь”) ДНК полным аналогом вербальных построений человека. Точнее будет полагать, что функции ДНК основаны прежде всего на ее метаязыке, являющимся грамматикой генома. Здесь чрезвычайно полезен анализ метаязыков А.Соломоником. Математика - тоже метаязык, он же и свод правил построения ее текстов. В отличие от обычной речи, в которой фразу с определенной мыслью можно сконструировать десятками разных способов, в математике ее вербальные (знаковые) ряды генерируются с помощью малого количества жестких правил. И они, правила, позволяют в автоматическом режиме получить предсказательный результат, как в нашем случае с антенной моделью, “предугадывающей” характер резонансных взаимодействий физических полей с информационными биомакромолекулами. На этом примере видно, как в конечном пункте математических метаязыковых (грамматически ориентированных) преобразований получается результат в форме физико-математического образа потенциального поведения важнейших компонентов биосистемы в ее полевом окружении и внутренней наполненности волновыми процессами. Хромосомы, возможно, также оперируют метаязыками для создания “идеальной” (физико-химико-математической) модели биосистемы как практически недостижимого прообраза реального организма. И такая модель будет более информативна по сравнению, например, с голографической моделью, и будет дополнять последнюю.
Если ДНК, хромосомы организмов Земли действительно являются одновременно донорами и акцепторами не только собственных волновых команд, но и неких внешних (возможно, экзобиологических) регуляторных волновых влияний, что было показано нами ранее, то новый искусственный, создаваемый людьми, электромагнитный семиотический канал вхождения в ноосферу и генофонд планеты Земля требует сверхвнимания в отношении уровня разумности и целесообразности наших, по сути неконтролируемых, супергенетических манипуляций. В этом случае мы будем входить в конкуренцию с вероятным экзобиологическим контролем. Полезно ли это и нужно ли? Сейчас ясного ответа нет. Возможно, мы вошли в бифуркационную вилку выбора стратегии эволюции человечества - или идти дальше по техногенному пути, или учиться мудрости у собственного тела, в котором сосредоточена мудрость Творца.
В качестве иллюстрации предложенного нами метода фрактального представления естественных и генетических текстов приведены матрицы плотности для текста на английском языке (руководство по программированию) и “текста” гена казеина (Cazein). Этот метод дает принципиально иную возможность количественного и качественного сравнения естественных и генотекстов. Аналогичный результат можно получить по- иному, и также новым методом, как это показано на графиках гистограмм сходства и различия для фланков и интронов большой группы генов. Таким же путем получена гистограмма сравнения естественных текстов для монографии автора “Волновой геном” и рассказов Ф.Абрамова [Неопубликованные результаты совместных исследований в соавторстве с М.Ю. Масловым (Математический институт РАН)].
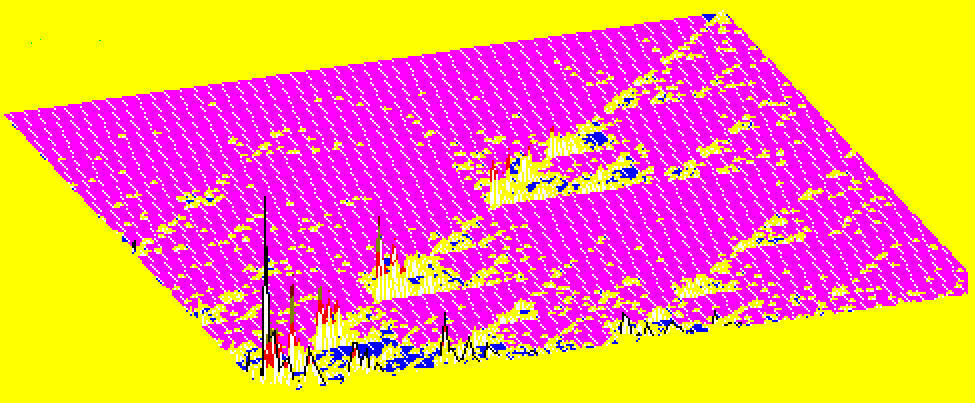
Матрица плотности хаотически-игрового представления нуклеотидной последовательности (ген) в алфавите (A,T,G,C), кодирующей первичную структуру казеина (белок молока).
Рис. 11
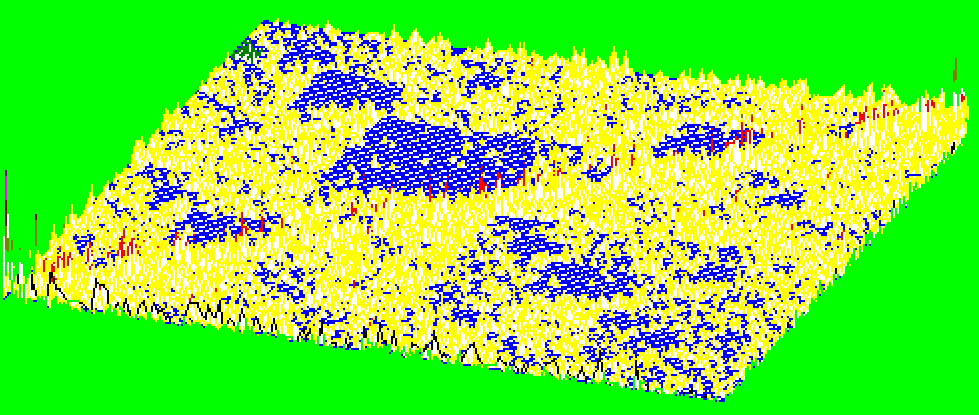
Матрица плотности хаотически-игрового представления текста на английском языке (руководство по компьютерному программированию). Рассматривалась структура появления в тексте четырёх частей речи. Левый ближний угол соответствует слову “the”, правый ближний - слову “in”, левый дальний - “on”, правый дальний - ”of”.
Рис. 12
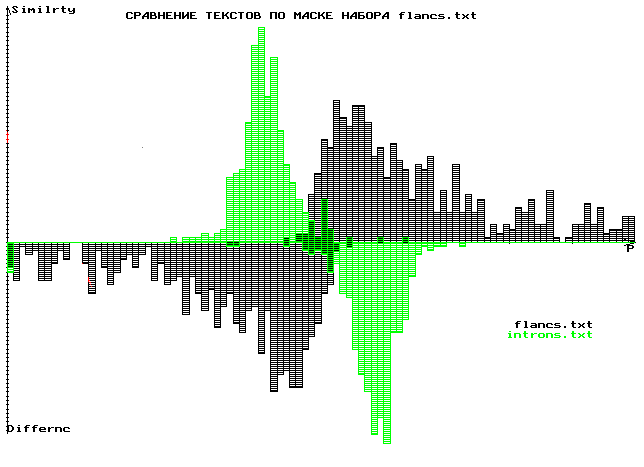
Сравнение фланков с интронами
Рис. 13
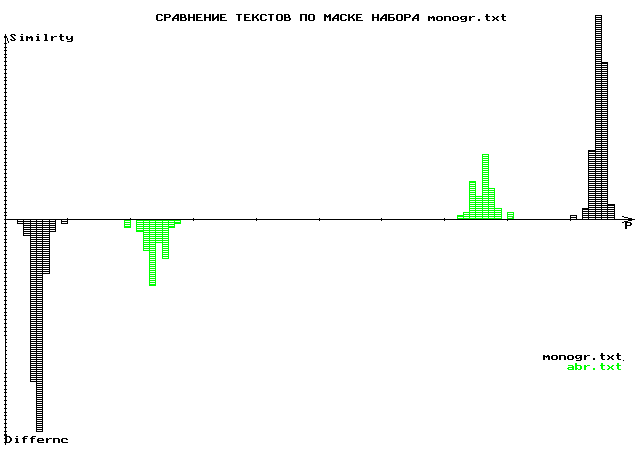
Сравнение монографий:Гаряев П.П. Волновой геном. М.,1994.
и Абрамов Ф. Были небыли. Рассказы. М., 1993.
Рис. 14
О ВОЗМОЖНОСТИ СОЗДАНИЯ БИОКОМПЬЮТЕРА НА ГЕНЕТИЧЕСКИХ СТРУКТУРАХ
В международном компьютерном еженедельнике “Сomputer World” (№ 5 от 3 октября 1995 г.) в рубрике “Подробности” была опубликована подборка статей, посвященная работам по созданию биокомпьютера на главной генетической молекуле - на ДНК. Томас Хоффман в статье “Болотная электроника...” описывает первые робкие попытки использования информационных биомакромолекул - некоторых белков (бактерио-родопсин, родопсин) в качестве субстратов записи-считывания информации как аналогов оптической дисковой памяти. Без сомнений, это интересное оригинальное направление, однако в данном случае ничего принципиально нового предложено не было, поскольку неважно откуда взято вещество-субстрат записи-считывания информации, на котором получают спектральные выжигания типа двоичного кода или с помощью лазеров записывают трехмерные изображения предметов в форме голограмм. Такое вещество может иметь абиогенное происхождение или, как в случае с родопсинами, извлекаться из биомембран солончаковых бактерий. В связи с этим, учитывая наши исследования, было бы логичным рассматривать молекулы ДНК как неразрывное единство Вещества и Поля также и в аспекте их участия как основной рабочей фигуры в искусственных биокомпьютерах. Это было бы полезно в развитии вычислительной техники и может привести к полной смене ее элементной базы в ряду: аналоговый-цифровой-“образный” или смысловой компьютер на ДНК.
Весной 1995 г. Леонард М. Адлеман, профессор вычислительных наук из Университета Южной Калифорнии, описал в журнале “Science” алгоритм использования ДНК для решения одной из версий “задачи коммивояжера”. Потребовалась всего неделя для получения ответа, в то время как традиционным компьютерам понадобилось бы несколько лет. При этом было использовано фундаментальное явление, свойственное молекулам ДНК - способность к так называемым комплементарным взаимоузнаваниям. Это явление заключается в том, что любые фрагменты каждой из двух цепочек ДНК находят в растворе (или в составе хромосом живой клетки) только собственные, в некотором смысле зеркальные, половинки и образуют нормальную двойную спираль. Успешность и быстрота автоматических поисков половинками ДНК друг друга как акта самоорганизации (самосборки) и обеспечили высокую скорость перебора вариантов в пределах “задачи коммивояжера”. Причины быстрых и точных взаимоузнаваний половинок ДНК до недавнего времени были неизвестны. А это необычайно важно для реального создания ДНК-компьютера, и об этом речь пойдет ниже.
Путь, который выбрал Адлеман, используя ДНК, не то чтобы неверен, скорее, он похож на попытки понять, как, например, происходит процесс мышления у Иванова, Петрова или Сидорова на основе нашего знания о том, что они любят вкусно поесть. Правильное и эффективное использование ДНК, как основного информационного элемента будущего биокомпьютера, немыслимо без понимания истинных функций генетических молекул в биосистемах. Возвращаясь к предыдущим главам, хромосомный аппарат, как система записывающая, сохраняющая, изменяющая и транслирующая информацию, может рассматриваться одновременно на уровнях вещества и достаточно хорошо изученных физических полей, которыми, как носителями генетической и общерегуляторной информации, оперирует континуум генетических молекул (ДНК,РНК). Континуум этот является основным компонентом совокупности хромосом, являющейся, по сути, биокомпьютером. Уровни вещества и поля, на которых хромосомный биокомпьютер функционирует, неразрывны и функционально дополняют друг друга. Здесь реализуются неизвестные ранее виды памяти (солитонная, голографическая, фантомная) и при этом молекулы ДНК могут работать как биолазеры и одновременно как среда записи лазерного сигнала. Кроме того, мы обнаружили, что ДНК способна излучать широкополосное сверхслабое электромагнитное поле, которое нам удалось усилить в тысячи раз. Впрочем, ДНК в этом плане является частным случаем, поскольку зафиксированное нами явление свойственно, вероятно, всем веществам [42], но хромосомы используют этот феномен, наверное, в высшей степени эффективно как один из волновых каналов информационных и (или) энергетических коммуникаций. Молекулы ДНК, как континуум любой биосистемы, способны к формированию прообразов биоструктур и организма в целом как “волновых копий” или “матриц” и сравнению построенного организма с ними как с реперами. В этом плане механизм быстрого и точного взаимоузнавания цепочек (половинок) ДНК, механизм, которым воспользовался Адлеман для решения “задачи коммивояжера”, - лишь один из способов самоорганизации биосистем. Взаимоузнавание, в частности, происходит потому, что в молекулах ДНК зарождаются особые сверхустойчивые акустико-электромагнитные волны (так называемые солитоны), некоторые разновидности которых можно трактовать в рамках открытого в 1949г. “явления возврата Ферми-Паста-Улама” (ФПУ). Такие солитоны ДНК обладают двумя связанными типами памяти - собственно памятью, свойственной явлению ФПУ-возврата, т.е. способностью помнить начальные моды возбуждений и периодически к ним “возвращаться”. Другая память ДНК-континуума в биосистеме - квази-голографическая или фрактальная. Она связана с фундаментальным свойством биосистем - восстанавливать целое из своей части. Это свойство фудаментально и хорошо известно (черенкование растений, регенерация хвоста у ящериц, регенерация целого организма из яицеклетки). Высшая форма такой памяти - ассоциативная память коры головного мозга, т. е. нейронов. Бесперспективно рассуждать о ДНК-компьютере, даже решив с помощью молекул ДНК “задачу коммивояжера”, если не учитывать новую логику в понимании знаковых, кодирующих биофункций ДНК. Другая сторона дела состоит в соотнесении этой логики с многочисленными исследованиями по нейрокомпьтерам и попытками разобраться в “компьютерной” работе мозга без понимания кодирующих функций нервного импульса.
Принято считать, что нервный импульс прост, что он является всего лишь волной деполяризации, и поэтому шифровка информации здесь происходит только по частотному механизму. Расчеты показывают, однако, что частотные модуляции недостаточны для кодирования. А.А.Березиным проведено крупное исследование, из которого следует, что нервные импульсы - это все те же солитоны в рамках явления ФПУ-возврата, при этом, самое главное, такие солитоны отображают в своей структуре РНК-”тексты”, а следовательно, и ДНК В развитии этой идеи нами выдвинуто предположение о знаковой смысловой связи солитонов на хромосомном уровне и солитонов нервных импульсов. Это свидетельствует в пользу связи сознания и его отображения - слова с основной информационной фигурой биосистем - молекулами ДНК с их новыми, неизвестными ранее, типами памяти. Солитоны ДНК способны после “прочитывания ими генотекстов” покидать пределы ДНК в форме особых электромагнитных полей с тем, чтобы узнавать нужные участки других молекул ДНК и формировать целостные новые “тексты”, необходимые в данный момент для выполнения биофункций, в том числе и путем передачи информации в нервные импульсы. Что касается термина “тексты ДНК”, который раньше употреблялся для удобства и был взят взаймы у лингвистов для метафорического употребления, то оказывается, эта текстовая структура ДНК действительно сродни человеческой речи. Наши математико-лингвистические исследования [14,25, см. также предыдущие главы] показали, что такой ключевой параметр, как фрактальность, един для ДНК и человеческой речи. Это коррелирует с ранними работами в этой области
Используя эти теоретические разработки и собственные данные по физико-химии ДНК, нам удалось экспериментально доказать возможность свертки генетической информации в форме солитонных волновых пакетов, описываемых физико-математическим формализмом явления возврата Ферми-Паста-Улама (ФПУ). Такие волновые пакеты с искусственно введенной в них биоинформацией, продуцируемые соответствующими ФПУ-радиоэлектронными устройствами, способны входить в резонансный информационный контакт с генетическим аппаратом животных, растений и, вероятно, человека с последующим резким и направляемым изменением их обмена веществ. Оказалось, что вещество наследственности - ДНК - является генератором ФПУ-солитонных акустических и электромагнитных полей. Именно поэтому ФПУ-генераторы способны вводить информацию в хромосомы по электромагнитным резонансным механизмам. Эффективность генераторов на порядки возрастает, если практически использовать феномен математической общности фрактальной структуры ДНК-”текстов” и человеческой речи. Грамматика генетических текстов является, вероятно, частным случаем универсальных грамматик всех языков людей. Поэтому и реализуются физико-смысловые резонансы солитонных структур ДНК и искусственных ФПУ-солитонных полей, как аналогов естественных ФПУ-хромосомных полей.
Вводя определенные кодовые вербальные команды через генератор ФПУ в генетический аппарат радиационно поврежденных семян растений, удалось достоверно уменьшить число хромосомных аберраций, т.е фактически блокировать поражающее действие рентгеновского облучения. Более того, оказалось, что возможна превентивная защита генома растений от жесткого рентгеновского излучения с помощью адекватных волновых команд. Контрольные эксперименты с хаотическими вербальными построениями (командами), введенными через ФПУ-устройства в геном биосистем, показали, что такие команды никак не влияют на целостность хромосом.
Эти эффекты предсказаны и проверены на основании использования математических компьютерных моделей, имитирующих “чтение” солитонами на ДНК генотекстов и ретрансляцию этих текстов в другие клетки и ткани.
Другие наши физико-математические модели и эксперименты обосновывают так называемый “антенный эффект” при возбуждении электромагнитными полями выделенных коллективных мод макромолекул ДНК. Это прямо связано с экспериментами по так называемому двухфотонной накачке геноструктур с последующим лазерным излучением ДНК [18] и также согласуется с нашими результатами по взаимодействию гелей ДНК с импульсным излучением инфракрасного лазера [25].
Вновь вернемся к компьютеру на ДНК. Ясно, что при его разработке необходимо использовать не только и не столько результаты эксперимента Адлемана. Чтобы реализовать свои возможности, ДНК должна находиться в привычной среде - в водном растворе или в жидкокристаллическом состоянии. Но это лишь начало. Другие возможности ДНК или хромосом могут быть выявлены в условиях, приближенных к тем, которые имеются в живой клетке. В пределе компьютер на ДНК - это и есть живая клетка, то есть надо создать искусственный организм, а это произойдет не скоро. Сейчас мы можем делать только какие-то приближения к состоянию ДНК в клетке, но и это немало. Можно перечислить то, что реально выполнимо уже сейчас. Прежде всего необходимо начать практическое использование новых типов памяти геноструктур и для этого пытаться конструировать ячейки памяти, работающие на явлении ФПУ-резонансов и (или) на способности записывать голограммы. Такая память будет на многие порядки по объему и быстродействию превосходить память существующих магнитных, оптических дисков и голографических систем. Вторая принципиальная возможность связана с этими типами памяти, но многократно усиливается способностью хромосом быть лазеро-активной средой. Препараты хромосом выступают в таком варианте и как ячейка памяти, и как лазеры, считывающие собственную (а также наведенную) голографическую и ФПУ-память. И, наконец, последняя из достижимых в настоящее время - использование квази-речевых характеристик ДНК. Можно создавать такие ДНК-лазеры, которые будут высвечивать и “озвучивать” как естественные генотексты, так и искусственные (синтезированные) знаковые последовательности полинуклеотидов, имитирующие естественные генопрограммы. Однако это весьма опасный путь и необходима система запретов на искусственные волновые гены. Такой способ работы с ДНК-компьютерами означает вхождение в новые семиотические ареалы генома человека, вообще всей биосферы, ареалы, которые Природа (или Бог) использовала для создания человека. Мысль вполне реалистичная, если учесть теоретические работы по коллективной симметрии генетического кода, проводимые школой Эйгена в Институте Макса Планка. Ее исследования показывают, что ключевая часть информации, записанная и записываемая как квазиречь в хромосомах всех организмов нашей