Нарушение экспрессии D-глюкуронил С5-эпимеразы как возможная причина изменения структуры протеогликанов в опухоли молочной железы человека
Реакции модификации полимерной цепи, вероятно, колокализуются в определенных участках аппарата Гольджи. Ферменты могут формировать супрамолекулярные комплексы, координирующие реакции модификации. Структура этих комплексов может играть роль в регуляции тонкой структуры цепи.
Структура ГС более значительно различается между разными типами клеток, чем между коровыми белками, экспрессируемыми в одной клетке.
Этот факт свидетельствует о том, что каждый тип клеток может экспрессировать уникальный набор ферментов и регуляторных факторов [10, 22].
Подробно биосинтез ГС и Ге описан вобзоре [10].
Деградация ГС происходит в лизосомах и состоит из нескольких этапов (см. рис.7).
1.12 Обмен протеогликанов
Клетки секретируют протеогликаны в межклнеточное пространство, также часть мембранных ПГ отщепляется от клеточной поверхности протеазами, которые расщепляют коровый белок по опрелеленным сайтам.
В то же время значительные количества ПГ поглощаются клетками путем эндоцитоза (рис.7).
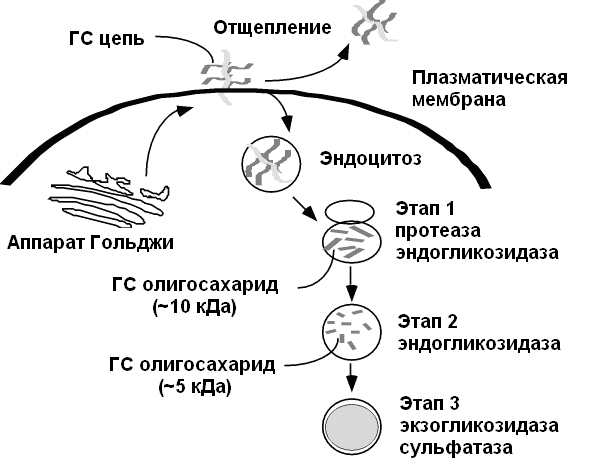
Рис.7. Обмен протеогликанов [23].
После эндоцитоза происходит постепенная деградация ПГ в лизосомах. Поглощенные клеткой ПГ сначала подвергаются действию гепараназ, хондроитиназ, кератназ или гиалуронидаз, расщепляющих ГАГ-цепи по ограниченному числу сайтов. Затем набор экзогликозидаз и сульфатаз завершает деградацию полученных на первой стадии фрагментов [23].
1.13 Локализация и функции протеогликанов
Протеогликаны представляют собой гетерогенный класс макромолекул, отличающихся друг от друга по молекулярному весу, составу, тонкой структуре ГАГ и функциям.
Существующее огромное структурное разнообразие ПГ объясняется несколькими факторами. Во-первых, коровый белок обычно несет несколько ГАГ-акцепторных сайтов, не все из которых одинаково используются. Во-вторых, может варьировать длина ГАГ-цепей. Цепи ГАГ могут также различаться по распределению сульфатированных остатков сахаров [21, 24].
Благодаря высокому отрицательному заряду, наличию сульфатных и ацетильных групп на ГАГ-цепях, реакционных групп коровых белков, ПГ вступают во взаимодействие с различными молекулами (таблица 10).
Таблица 10. Примеры белков, взаимодействующих с ГАГ
| Взаимодействия клетки с матриксом | Коагуляция/Фибринолиз | Липолиз | Воспаление/Рост |
| Ламинин | антитромбин III | липопротеин - липаза | FGF |
| Фибронектин | кофактор гепарина II | печеночная липаза | рецепторы |
| Тромбоспондин | тромбин | апоE | HGF |
| Коллаген I типа | ингибитор С-белка | LDL | VEGF |
| Коллаген III типа | tPA и PAI-1 | IL-8/MIP-1β | |
| Коллаген V типа | TGF-β | ||
| Витронектин | L - и P-селектины | ||
| Тенаскин | супероксиддисмутаза |
Большинство белков связывается с ГС, которые являются наиболее химически гетерогенным классом ГАГ. ГС взаимодействуют с белками специфическими участками ГАГ с определенным паттерном сульфатирования остатков сахаров [21]. Эти взаимодействия имеют глубокий физиологический эффект. Примером может служить введение в кровяное русло гепарина, приводящее к быстрому антикоагуляционному эффекту, благодаря связыванию и активации антитромбина.
Связывание ГАГ с лигандами может приводить к (1) иммобилизации белков в месте их продукции, (2) регулированию ферментативной активности, (3) присоединению к сигнальному рецептору, (4) защите лиганда от деградации, (5) резервированию лигандов [25, 26].
Протеогликаны найдены во всех исследованных тканях многоклеточных беспозвоночных и позвоночных животных.
Протеогликаны известны в основном как компоненты внеклеточного матрикса, включая хрящ, базальную мембрану и соединительную ткань. Они также широко представлены на клеточной поверхности (мембранные ПГ). А также ПГ могут запасаться внутри клетки в секреторных гранулах.
Протеогликаны внеклеточного матрикса в основном содержат ДС/ХС цепи ГАГ [27], тогда как ПГ на поверхности клеток в основном представлены ГСПГ [28].
Все эпителиальные ткани экспрессируют протеогликаны клеточной поверхности, преимущественно глипиканы (ГС) и синдеканы (ГС/ХС) [29].
По локализации протеогликаны клеточной поверхности могут быть трансмембранными белками (синдеканы), могут быть связаны с липидами плазматической мембраны через фосфатидилинозитол (глипиканы) или секретироваться в базальную мембрану (перлекан, агрин). Коровый белок синдекана имеет протяженный трансмембранный домен и короткий (34-38 аминокислотных остатков) С-концевой цитоплазматический домен. Коровый белок глипикана имеет глобулярную структуру, стабилизированную дисульфидными связями, и заякорен в плазматической мембране через фосфатидилинозитол. Доказательства, что мембранные ПГ могут ферментативно высвобождаться из мембран, пока нет. Однако есть предположение, что такое высвобождение имеет место in vivo и осуществляется фосфоинозитол-специфичной фосфолипазой С. Базальные мембраны тканей млекопитающих содержат перлекан и агрин. Перлекан присутствует в большинстве базальных мембран, а также в хряще, в то время как агрин является компонентом базальных мембран в мышцах, нервномышечных соединениях, центральной нервной системе, легких и почках. Оба протеогликана являются крупными мультидоменными молекулами, несущими цепи гепарансульфатов ближе к N-концу корового белка [30].
Протеогликаны обнаружены также в ядрах, где, как установлено в ряде случаев, связаны с транскрипционно активной частью хроматина [31, 32].
Протеогликаны внеклеточного матрикса формируют его структуру за счет взаимодействий с различными внеклеточными макромолекулами. Во внеклеточном матриксе ПГ взаимодействуют с ламинином, фибронектином [33], коллагеном I [34]. Известно, что декорин связывается с коллагеном I, II [35], IX [36], причем как в эмбриональных тканях, так и в тканях взрослого человека [36]. Фибромодулин, так же как и декорин, связывается с коллагеном I и II и влияет на фибриллогенез коллагена [25, 37], тогда как бигликан коллаген не связывает, но его большое количество было обнаружено во внеклеточном матриксе мезенхимных эмбриональных клеток [36].
Показано, что аггрекан в суставных хондроцитах быка образует комплекс с гиалуроновой кислотой и связующим белком (рис.1) [38], кроме того, подобный комплекс может образовывать и другой ПГ - версикан [39]. Показано, что молекула версикана из культуры клеток ACHN взаимодействует с хемокинами [40], L - селектином [41], Р-селектином, рецептором CD44, играющим важную роль в процессах воспаления, аутоиммунном ответе, прогрессии опухолей. Связь образуется посредством взаимодействия ХС-цепи версикана с углеводсодержащим доменом L-, P-селектина, CD44 [42].
Протеогликаны поверхности клеток представляют собой рецепторы для различных компонентов внеклеточного матрикса, регуляторных макромолекул, факторов роста и играют ключевую роль в информационной связи между клеткой и внеклеточным матриксом.
На поверхности кератиноцитов обнаружен и идентифицирован эпикан - гепарансульфат протеогликан [43]; после секвенирования последовательности его корового белка было обнаружено, что он является протеогликановой (ХС) формой рецептора CD44 [44]. Показано, что это альтернативно сплайсированная форма CD44, содержащая дополнительный экзон [45].
Клетки с запасными гранулами накапливают протеогликаны наряду с другими секреторными продуктами. Эти ПГ обычно содержат высоко сульфатированные формы ХС. Исключением являются тучные клетки соединительной ткани, содержащие в секреторных гранулах преимущественно гепарин. Предполагается, что протеогликаны в секреторных гранулах способствуют удалению веществ из последних и регулируют доступность положительно заряженных компонентов, таких как протеазы и биогенные амины [46].
Показано, что протеогликаны могут связывать факторы роста и модулировать их активность [1].
Декорин, относящийся к классу дерматансульфат протеогликанов, взаимодействует с рецептором эпидермального фактора роста и запускает сигнальный каскад реакций, который приводит к торможению деления клеток [47]. Бетагликан - протеогликан, содержащий цепи ХС и ГС, - взаимодействует с трансформирующим фактором роста TGF-b [48].
Гепарансульфат протеогликаны (например, синдекан) связывают различные факторы роста, включая фактор роста фибробластов - FGF-a, FGF-b (рис.8), гранулоцитомакрофаг колониестимулирующий фактор - GM-CSF, взаимодействуют с интерлейкином - 3 и интерфероном-g [1, 27], усиливают рост и дифференцировку клетки, взаимодействуя с FGF-b [49], показан предположительный механизм связывания рецептора FGF-b с ГС [50].
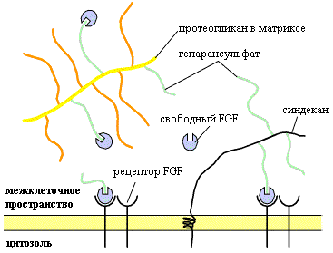
Рис.8. Взаимодействие протеогликанов с факторами роста
Таким образом, протеогликаны, помимо выполнения структурной функции, участвуют в регуляции таких фундаментальных клеточных процессов, как морфогенез, дифференцировка и клеточная пролиферация.
1.14 Состав протеогликанов в трансформированных клетках
Наличие множества связующих доменов в сложной структуре протеогликанов дает им возможность специфично взаимодействовать со множеством разнообразных регуляторных молекул.
Протеогликаны связывают в единую структуру различные компоненты внеклеточного матрикса, такие как гиалуроновая кислота, коллаген, ламинин, фибронектин; опосредуют связывание клеток с ВКМ; накапливают на своей поверхности (резервируют) факторы роста; презентируют факторы роста клеточным рецепторам; могут выступать в роли факторов клеточной адгезии, стимулируя организацию актиновых филаментов цитоскелета [51].
Из всего вышеперечисленного можно сделать вывод, что протеогликаны играют важную роль в регуляции процесса клеточной пролиферации, и нарушения в экспрессии и/или посттрансляционной модификации этих молекул могут служить одной из причин злокачественного перерождения тканей.
Показано, что в окружающей опухоль строме происходят значительные изменения в содержании протеогликанов. Предполагается, что эти изменения могут поддерживать рост опухоли, ее прогрессию и инвазию.
Уровень содержания декорина, лейцин-богатого протеогликана, участвующего в регуляции пролиферации клеток и сборки внеклеточного матрикса, значительно повышен в опухолевой строме. В то же время в опухолевых клетках экспрессия декорина значительно снижена или вообще не детектируется (см. п.1.14.1.).
При малигнизации наблюдается уменьшение уровня сульфатирования гепарансульфатов и увеличение экспрессии гиалуроновой кислоты. На поздних стадиях развития опухоли высокий уровень этого анионного полимера способствует разрыхлению окружающего матрикса, тем самым облегчая инвазию опухолевых клеток [52].
CD44 - основной рецептор для гиалуроновой кислоты на клеточной поверхности, и сам относится к классу ХСПГ. На гиалуронат-связывающую активность CD44 оказывают влияние N - и O-гликозилирование данного белка, присоединение к нему ГАГ-цепи, а также экспрессия различных изоформ CD44. Изменения в экспрессии CD44 (в том числе изменения гликоформ и изоформ) наблюдаются во многих видах злокачественных опухолей. В некоторых случаях данные изменения прямым образом коррелируют с метастатическим потенциалом [53].
Опухолевые клетки могут выделять полипептидные факторы, которые изменяют тип протеогликанов, продуцируемых хозяйской мезенхимой. Так, нормальные фибробласты, будучи помещенными в культуральную среду, на которой ранее культивировались клетки рака прямой кишки человека, начинают продуцировать необычно большое количество хондроитинсульфатов. Изменение метаболизма протеогликанов в нормальных мезенхимных клетках может являться одним из механизмов, с помощью кторого опухолевые клетки меняют окружающую их среду [54].
В опухолевых клетках изменяется количественный и качественный состав протеогликанов.
Показано, что в клетках практически всех исследованных опухолевых тканей происходит увеличение содержания протеогликанов по сравнению с нормальной тканью: в опухолевых клетках карциномы желудка происходит увеличение содержания ПГ по сравнению с нормальной тканью в два раза [55], в карциноме поджелудочной железы в 4 раза [56], в карциноме прямой кишки - в 2 раза [57].
В опухолевых клетках происходит снижение сульфатирования ГАГ: в клетках карциномы желудка в 10 раз увеличивается содержание несульфатированных дисахаридных единиц, однако происходит увеличение сульфатирования ХС и ДС цепей по 6-положению в 4 раза [55]. В клетках аденокарциномы кишечника увеличивается число несульфатированных единиц в 3 раза, в 3 раза уменьшается количество 4-сульфатированных единиц, увеличивается в 5 раз количество дисахаридных единиц, сульфатированных по 6-положению [58].
Для многих опухолей показано изменение соотношения ДС и ХС. В карциноме желудка увеличивается содержание ХС по сравнению с нормой в 4 раза [55], в карциноме поджелудочной железы содержание ХС увеличивается в 22 раза [56], в клетках карциномы гортани - в 5 раз [59], в аденокарциноме кишечника - в 11 раз [58]. Для опухоли прямой кишки показано, что содержание хондроитинсульфатов увеличивается с 27% до 70% [57], в карциноме молочной железы содержание ХС увеличивается на 32,2 % [60].
Наряду с увеличением содержания хондроитинсульфатов происходит снижение содержания дерматансульфатов, характерных для покоящихся тканей.
Для опухоли прямой кишки показано, что содержание дерматансульфатов падает с 73% до 30% [57], в карциноме молочной железы содержание ДС снижается на 18,5 % [60].
Показано, что изменяется структура ПГ в опухолевых клетках - в лейомиоме количество остатков L-идуроновой кислоты уменьшается по сравнению с нормой с 55% до 45% [61].
1.14.1 Декорин
Декорин относится к классу дерматансульфат протеогликанов и является членом семейства маленьких лейцин-богатых протеогликанов.
К коровому белку декорина ковалентно присединена одна цепь ДС или ХС.
Декорин известен как секретируемый протеогликан, экспрессируемый широким кругом тканей мезенхимального происхождения, включая опухолевую строму, но не трансформированными клетками.
Декорин участвует в регуляции таких клеточных функций, как пролиферация, адгезия и миграция.
Декорин способен связываться с компонентами внеклеточного матрикса - фибронектином, тромбоспондином и несколькими типами коллагена, регулируя фибриллогенез последнего. Коровый белок декорина взаимодействует с TGF- и является ингибитором этого цитокина. Декорин также может напрямую тормозить клеточную пролиферацию [62].
Показано, что декорин участвует в целом ряде механизмов, регулирующих пролиферацию клеток:
взаимодействует с рецептором эпидермального фактора роста [63] (EGFR) и запускает сигнальный каскад, приводящий к увеличению экспрессии белка р21, что приводит к супрессии циклина, подавлению активности циклин-зависимых киназ [64] и торможению клеточного деления [65];
ингибирует биологическую активность фактора роста TGF- [66]. TGF- может влиять на рост опухоли, опосредовать устойчивость к лекарствам, усиливать ангиогенез в опухоли [67]. Декорин присоединяется к связывающему домену TGF-, предотвращая его связывание с рецептором, что приводит к торможению клеточного деления [68];
подавляет экспрессию и биосинтез эндотелиального фактора роста сосудов (VEGF), что приводит к супрессии ангиогенеза в опухолевой ткани [69];
вызывает функциональную инактивацию онкогенного белка ErbB2, ингибируя тем самым рост клеток и стимулируя их дифференцировку [68];
влияет на жизнеспособность клеток через Akt/протеинкиназа В-зависимый и - независимый механизмы, снижая апоптоз эндотелиальных клеток [70].
Для декорина доказана антимитотическая активность: добавление рекомбинантного декорина в культуру опухолевых клеток ингибировало их рост in vitro [71], экспрессия декорина de novo в культуре опухолевых клеток приводила к их возвращению к нормальному фенотипу [72]. Аденовирусная доставка декорина в растущую экспериментальную опухоль приводила к значительному ингибированию роста опухоли [73].
Целью описанных выше экспериментов являлось введение в опухолевую ткань недостающего декорина в той или иной форме (рекомбинантного белка либо генноинженерных конструкций).
Однако вопрос о причине снижения содержания декорина в трансформированных клетках до сих пор не поднимался.
1.14.2 D-глюкуронил С5-эпимераза
Известно, что ключевым ферментом биосинтеза дерматансульфат протеогликанов (в том числе и декорина) является фермент D-глюкуронил С5-эпимераза [74]. Этот фермент проводит эпимеризацию глюкуроновой кислоты в идуроновую (рис.6) с образованием функционально активного декорина. Причем в экспериментах in vitro было показано, что этот процесс может быть обратимым [75], однако, после полной модификации ГАГ цепи обратная реакция невозможна [76].
Показана субстратная специфичность для D-глюкуронил С5-эпимеразы, выделенной из культуры клеток фибробластов - дерматан и хондроитин являются хорошими субстратами для этого фермента, тогда как их О-сульфатированные формы практически не подвергаются модификации [77]. Вероятно, эпимеризация уроновой кислоты в идуроновую происходит до О-сульфатирования ГАГ, и О-сульфатированные ГАГ не являются субстратом для D-глюкуронил С5-эпимеразы [78].
Известно, что для работы D-глюкуронил С5-эпимеразы мыши необходимы N-ацетильные группы на глюкозамине и определенное расположение N-сульфатных групп. Кроме того, существует прямая зависимость работы фермента от размера субстрата [79].
Процесс эпимеризации остатков глюкуроновой кислоты в идуроновую кислоту зависит от структуры корового белка [80].
Биосинтез протеогликанов изучен достаточно хорошо, большинство ферментов их биосинтеза клонированы. D-глюкуронил С5-эпимераза является единственным ферментом биосинтеза протеогликанов человека, который до сих пор не клонирован [17].
В настоящее время клонированы и охарактеризованы гены D-глюкуронил С5-эпимеразы быка [81] и мыши [82] - единственный ген D-глюкуронил С5-эпимеразы мыши находится в 9 хромосоме. Показано, что мышиная D-глюкуронил С5-эпимераза приблизительно одинаково экспрессируется в различных тканях: сердце, мозге, легких, печени, мышцах, почках. Исключением является селезенка, в которой экспрессия D-глюкуронил С5-эпимеразы понижена [82].
Показано, что разрушение гена, кодирующего D-глюкуронил С5-эпимеразу у мыши, приводило к гибели эмбриона (гетерозиготы погибали в течение года, гомозиготы по мутантному генотипу погибали сразу после рождения). У эмбрионов были обнаружены дефекты развития почек, легких, неправильное формирование скелета. В других жизненно важных органах и системах (мозге, печени, желудочно-кишечном тракте, коже) изменений обнаружено не было. Оказалось, что присутствие идуроновой кислоты необходимо для нормального развития почек, легких, скелета [83]. Также показано, что наличие ГС, содержащих остатки идуроновой кислоты необходимо для нормального развития различных типов нейронов [84].
Отсутствие публикаций по данным вопросам не позволяет сказать, есть ли какая-либо ткане - или видоспецифичность в экспрессии D-глюкуронил С5-эпимеразы у человека и одинаковы ли экспрессия/активность этого фермента в нормальных и опухолевых тканях, существует ли связь между изменением состава ПГ и изменением экспрессии/активности D-глюкуронил С5-эпимеразы.
Регуляторная роль протеогликанов изучалась в лаборатории Структуры генома ИЦиГ СО РАН в течение ряда лет. Исследовались протеогликаны из различных типов клеток, был охарактеризован их состав и структурные особенности. В работах В.И. Рыковой и
Г.М. Роничевской с соавторами была показана антимитотическая активность ПГ, выделенных из препаратов суммарной клеточной РНК [85] и их влияние на синтез ДНК в клетке [31]. Изучался также состав протеогликанов в ядрах нормальных и трансформированных клеток [32]. Было показано, что при злокачественной трансформации в клетках снижается содержание дерматансульфат протеогликанов и возрастает содержание хондроитинсульфат протеогликанов - не полностью модифицированных предшественников ДСПГ [32]. Данные эксперименты велись на животных.
Поскольку ключевым ферментом биосинтеза дерматансульфатов в клетке является D - глюкуронил С5-эпимераза [74], то нашей группой было выдвинуто предположение, что причиной недостаточного синтеза дерматансульфат протеогликанов в клетках является пониженная экспрессия/активность фермента D-глюкуронил С5-эпимеразы.
В настоящее время в лаборатории Молекулярных механизмов канцерогенеза Института Молекулярной Биологии и Биофизики СО РАМН совместно с лабораторией Структуры генома ИЦиГ СОРАН ведется изучение взаимосвязи между уровнем экспрессии/активности D-глюкуронил С5-эпимеразы и составом протеогликанов в нормальной и опухолевой ткани молочной железы человека.
В рамках данного исследования в лаборатории Молекулярных механизмов канцерогенеза ведется работа по определению уровня экспрессии гена D-глюкуронил С5-эпимеразы в нормальной и опухолевой ткани молочной железы человека методами мультиплексной ПЦР и ПЦР в реальном времени.
Целью данной дипломной работы является изучение взаимосвязи состава протеогликанов в нормальной и опухолевой ткани молочной железы человека с экспрессией белковой молекулы D-глюкуронил С5-эпимеразы.
В соответствии с этой целью нами были поставлены следующие задачи:
Сравнить состав протеогликанов в контрольной и опухолевой ткани молочной железы человека;
Провести количественную оценку суммарных протеогликанов в контрольной и опухолевой ткани молочной железы человека;
Определить экспрессию дерматансульфат протеогликана декорина в контрольной опухолевой ткани молочной железы человека;
Определить экспрессию белковой молекулы D-глюкуронил С5-эпимеразы в тех же клинических образцах.
Глава 2. Материалы и методы
2.1 Материалы
В работе использовались следующие материалы и реактивы:
трис, агароза - “ICN” (США);
хлорид магния, ацетат натрия - “Merck” (Германия);
персульфат аммония, SDS, акриламид, реактив Брэдфорда Quick Start Bradford Dye Reagent, набор стандартных концентраций бычьего сывороточного альбумина Quick Start Bovine Serum Albumin Standard Set, маркер “Калейдоскоп” - “BioRad" (США);
набор ECL Western Blotting Analysis System - “Amersham Biosciences" (Великобритания);
ингибиторный коктейль Protease Inhibitor Coctail Tablets - “Roche Diagnostics" (Германия);
ЭДТА, бромфеноловый синий, кумасси G250, рибонуклеаза А (РНКаза А),
N,N’-метиленбисакриламид - “Serva” (Германия);
набор реактивов Рентген-2: проявитель рентгеновских материалов типа РМ-1 и РФ-3, фиксаж нейтральный - химзавод им.Л.Я. Карпова (Менделеевск, Татарстан);
глицин, твин-20, PBS Tablets - “Helicon” (Россия, Москва);
N-лаурилсаркозин (натриевая соль), IGEPAL CA-630 - “SIGMA” (США);
алциановый голубой - “Loba-Chemie” (Австрия);
альбумин лиофилизированный из человеческой сыворотки, TEMED - “ Reanal ” (Венгрия);
буфер для нанесения проб NuPage SDS Sample Buffer (x4) - “Invitrogen" (CША).
Специфические ферменты деградации ГАГ:
хондроитиназа АС (хондроитин АС лиаза), ЕС 4.2.2.5, из Flavobacterium heparinum,
хондроитиназа АВС (хондроитин АВС лиаза), ЕС 4.2.2.4, из Proteus vulgaris - “SIGMA” (США).
Стандарты ГАГ:
гепарин - “Richter” (Венгрия);
хондроитинсульфат А (натриевая соль) из хряща кита,
хондроитинсульфат В (натриевая соль) из кожи свиньи,
хондроитинсульфат С (натриевая соль) из хряща акулы - “SIGMA” (США).
Антитела:
D-глюкуронил С5-эпимераза человека: кроличья поликлональная сыворотка - “GenScript Corp” (США);
коровый белок декорина человека: мышиные моноклональные антитела IgG1 - “R&D Systems”;
вторичные антитела, меченые пероксидазой хрена - “Amersham Biosciences" (Великобритания).
Этиловый спирт, ацетат калия, ацетат бария, нитрит натрия, фенол, хлороформ, хлорид натрия, уксусная, серная, соляная, хлорная, фосфорная кислоты, глицерин, бутанол-1, диметилсульфоксид - отечественного производства категории ХЧ или ОСЧ.
диализные трубки Servapor, диаметр 7 мм - “Serva” (Германия);
рентгеновская плнека CL-XPosure Film - “Perbio”;
ацетатная пленка (ацетатцеллюлоза) - отечественного производства;
нитроцеллюлозная мембрана - “Schleicher&Schuell" (Германия).
Приборы:
источник питания постоянного тока Б5-50;
спектрофотометры SPEKOL 21 и Eppendorf Bio Photometer;
центрифуги Eppendorf Centrifuge 5414 и 5415С;
качающаяся платформа Mini Rocker MR-1, центрифуга Фуга/Вортекс микро-спин FV-2400 - “BioSan" (Латвия);
электроприбор контактный сварочный бытовой “Молния-3”;
микротермостат модель 205 (Кольцово);
трансблоттер Semi-dri Transfer Unit, TE 70 - “Amersham Biosciences" (США).
2.1.1 Операционный материал
В работе использовали опухолевую и окружающую нормальную ткань молочной железы человека, удаленную в ходе хирургического вмешательства. Операционный материал получали в 1 Городской клинической больнице, забор образцов проводили под контролем главного онколога г. Новосибирска д. м. н., проф. Сидорова С. В.
Экспериментальный материал состоял из 2 образцов: опухолевая ткань и нормальная ткань молочной железы человека.
2.1.2 Антитела
В работе использовали фирменные антитела:
к D-глюкуронил С5-эпимеразе человека - поликлональная кроличья сыворотка (антигенная последовательность pos602-615: VKRWKSYLKGSRAKC - С-конец белка);
к коровому белку декорина человека - моноклональные мышиные антитела класса IgG1, клон 115402 (500 мкг/мл).
2.2 Методы
2.2.1 Выделение протеогликанов
Протеогликаны выделяли методом, разработанным в лаборатории структуры генома к. б. н. Рыковой В.И.
Замороженный кусочек ткани (100 - 1000 мг) растирали в жидком азоте. Затем добавляли буфер (10 мM Трис-HCl, 5 мM ЭДТА, pH 8), из расчета 1 мл буфера на 100 мг ткани. Буфер приливали порциями по 1-2 мл прямо в жидкий азот. Ледяной порошок тщательно растирали. Полученный гомогенат переносили в стеклянную пробирку. К гомогенату ткани добавляли 35% N-лаурилсаркозин, из расчета 10 мкл 35% N-лаурилсаркозина на 100 мг ткани. Инкубировали 1 час при комнатной температуре для растворения клеточных мембран. Гомогенат разносили по 1 мл в пробирки Eppendorf (1.5 мл) и добавляли по 0.5 мл фенола (насыщенного водой) в каждую пробирку, тщательно встряхивали. Центрифугировали 10 мин. при 10 тыс. об. /мин. Получалось 3 фракции: верхняя - водная (нуклеиновые кислоты, ПГ и нейтральные сахара), средняя (интерфаза) - плотный слой белка, нижняя - фенольная. Отбирали верхнюю водную фракцию и переносили ее в чистые пробирки. Повторяли депротеинизацию: добавляли к водной фракции по 0.25 мл фенола и хлороформа. Центрифугировали 10 мин. при 10 тыс. об. /мин. Отбирали верхнюю водную фракцию, добавляли к ней концентрированную хлорную кислоту до 0.5 М конечной концентрации кислоты (для осаждения нуклеиновых кислот). Инкубировали на холоду 20 мин. (погружали пробирки в лед). Осадок отделяли центрифугированием (5 мин. при 10 тыс. об. /мин.). Кислый супернатант отделяли от осадка (в супернатанте - ПГ). Избавлялись от хлорной кислоты диализом: сначала против воды (2 ч.), затем против 50 мM ацетата натрия (40 мин.). Концентрировали раствор ПГ бутанолом-1 до объема 50-100 мкл: приливали максимально возможное количество бутанола в пробирку, встряхивали, центрифугировали (1 мин. при 10 тыс. об. /мин.). Бутанол отнимает 10% воды (от своего объема). Сливали бутанол. Повторяли процедуру несколько раз - до тех пор, пока не получали требуемый объем раствора. В сконцентрированный раствор добавляли 2-3 объема 96% этилового спирта (перегнанного) для осаждения ПГ. Пробирки тщательно встряхивали и оставляли на ночь в морозильной камере (-20оС). Центрифугировали (10 мин. при 10 тыс. об. /мин.). Сливали спирт, осадок еще раз промывали этанолом (200-400 мкл). Центрифугировали 5 мин. при 10 тыс. об. /мин. Спирт сливали, осадок высушивали на воздухе.
Осадок растворяли в 20-40 мкл буфера (10 мM Трис-HCl, 5 мM ЭДТА, pH 8) или воды. Это готовый рабочий раствор ПГ.
2.2.2 Очистка препаратов протеогликанов от примесей нуклеиновых кислот
2.2.2.1 Обработка препаратов протеогликанов щелочью
Пробы ПГ (из контрольной и опухолевой ткани) инкубировали с 0.5 N гидроксидом натрия в соотношении 1: 1 при 37оС в течение 1 ч. По окончании реакции пробы нейтрализовали 0.5 N уксусной кислотой.
2.2.2.2 Обработка препаратов протеогликанов нуклеазами
К 10 мкл раствора ПГ добавляли 1 мкл ДНКазы (1 е. а. /мкл), 2 мкл 10х буфера для ДНКазы и 2 мкл РНКазы (0.6 е. а. /мкл). Инкубировали при 37оС в течение 3 ч.
2.2.3 Идентификация протеогликанов
2.2.3.1 Обработка препаратов протеогликанов специфическими ферментами
Пробы ПГ обрабатывали хондроитиназой АС (0.1 е. а. /мкл) и хондроитиназой АВС (0.1 е. а. /мкл), гидролизующими соответственно хондроитинсульфаты А и С и хондроитинсульфаты А, С и В (дерматансульфаты). Ферменты добавляли к пробам в соотношении 1:
1. Инкубацию проводили в течение 17-20 ч. при 37оС. Результаты обработки ферментами анализировали с помощью гель - электрофореза (см. п.2.2.6.1.). В качестве контроля использовали необработанные пробы ПГ.
2.2.3.2 Обработка препаратов протеогликанов азотистой кислотой
Азотистая кислота избирательно расщепляет углеводные цепи гепарансульфата, не затрагивая гликозаминогликаны других типов, что позволяет обнаружить его присутствие в препарате.
Азотистую кислоту получали в реакционной смеси:
5% NaNO2 + 33% СH3СООН = HNO2
Пробы ПГ инкубировали с 5% нитритом натрия и 33% уксусной кислотой в соотношении 1: 1: 1 при комнатной температуре в течение 40 мин., затем результаты анализировали с помощью гель - электрофореза (см. п.2.2.6.1.). Контролем служили соответствующие необработанные пробы ПГ и гепарин (10 мкг/мкл), обработанный азотистой кислотой (1: 2: 2).
2.2.4 Аналитические методы
2.2.4.1 Количественный анализ гликозаминогликанов с алциановым голубым
Содержание ГАГ в препаратах определяли на полосках ацетатцеллюлозной пленки (L. J. Hronowski, T. P. Anastassiades // Anal. Bioch. 1988.174. № 2, 501-511).
Пленку предварительно вымачивали в буфере 0.1М ацетат бария, рН 3, удаляли излишки буфера с помощью фильтровальной бумаги и подсушивали на воздухе. На подготовленную пленку наносили пробы (по 2 мкл) и опускали на 30 мин. в краситель - 0.2% алциановый голубой (АlBl8GS), 30 мМ хлорид магния, 0.1% уксусная кислота, 10% этанол, рН 3. После окрашивания полоски промывали аналогичным раствором, не содержащим АlBl8GS, переносили на фильтровальную бумагу и высушивали на воздухе. Окрашенные пятна гликозаминогликанов и неокрашенные участки пленки такого же размера (для контроля) вырезали и помещали в пробирки. В каждую пробирку добавляли по 2 мл диметилсульфоксида, содержащего 0.5% (V/V) концентрированную серную кислоту и инкубировали в течение 30 мин. при 37оС. Затем измеряли оптическое поглощение растворов при 677 нм против раствора диметилсульфоксида, содержащего 0.5% серную кислоту. Вычитали показания контроля.
Содержание гликозаминогликанов определяли по калибровочной кривой, построенной при измерении Д677 растворов ГАГ известной концентрации.
Измерения проводили на спектрофотометре SPECOL 21.
2.2.4.2 Определение концентрации белка по Брэдфорду
Определяли концентрацию суммарного белка в гомогенате ткани по Брэдфорду
(Скоупс Р. Методы очистки белков. М.: Мир, 1985, стр.342).
Готовили краситель: 10 мг кумасси ярко синего G 250 растворяли при энергичном перемешивании в 5 мл 95% этилового спирта и смешивали этот раствор с 10 мл 85% фосфорной кислоты. Смесь разбавляли водой до 100 мл и фильтровали для удаления нерастворившегося красителя (раствор устойчив 1-2 недели).
На реакцию брали пробу и краситель в соотношении 1: 1, инкубировали 20 мин. при комнатной температуре. Затем измеряли оптическое поглощение растворов при 595 нм против раствора краситель + вода (1:
1). Содержание белка определяли по калибровочной кривой, построенной при измерении Д595 растворов альбумина известной концентрации.
Позднее в работе стали использовать фирменный реактив Брэдфорда Quick Start Bradford Dye Reagent и набор стандартных концентраций бычьего сывороточного альбумина Quick Start Bovine Serum Albumin Standard Set (BioRad).
Измерения проводили на спектрофотометре SPECOL 21.
2.2.4.3 Определение концентрации нуклеиновых кислот
Осажденные хлорной кислотой нуклеиновые кислоты (см. п.2.2.1.) гидролизовали щелочью: к осадкам приливали по 50 мкл 0.5 N гидроксид натрия и инкубировали при комнатной температуре в течение 17-20 ч. По окончании реакции пробы нейтрализовали 0.5 N уксусной кислотой. Содержание нуклеиновых кислот определяли по поглощению раствора при 260 нм против раствора 0.5 N ацетата натрия.
Измерения проводили на спектрофотометре Eppendorf Bio Photometer.
2.2.5 Вестерн-блот
Готовили гомогенат ткани: контрольную и опухолевую ткань молочной железы человека растирали в ступке с жидким азотом в буфере 50 мМ Трис-НСl, рН 7.5; 150 мМ NaCl; 1% IGEPAL; 1 таблетка ингибиторного коктейля Protease Inhibitor Coctail Tablets (Roche Diagnostics) на 10 мл буфера. Буфер добавляли из расчета 0.5 мл буфера на 100 мг ткани.
Проводили электрофоретическое разделение белков методом 2.2.6.2.
После проведения электрофореза гель вынимали, срезали концентрирующий гель, другие ненужные участки и левый верхний угол геля. Затем гель на 5 мин. заливали буфером для переноса (47.9 мМ Трис, 38.6 мМ глицин, 0.0385% SDS, 20% этанол). Вырезали нитроцеллюлозную мембрану (на 4-6 мм шире и длиннее геля) и 8 таких же по размеру листков фильтровальной бумаги. У мембраны также срезали левый верхний угол. Мембрану и фильтровальную бумагу тщательно смачивали буфером для переноса. Готовили сэндвич в последовательности: 4 листка фильтровальной бумаги, мембрана, гель, 4 листка фильтровальной бумаги. Закладывая сэндвич, следили, чтобы не образовывалось воздушных пузырей между его