Нарушение экспрессии D-глюкуронил С5-эпимеразы как возможная причина изменения структуры протеогликанов в опухоли молочной железы человека
После переноса мембрану помещали (вверх стороной, на которую шел перенос) в ванночку с буфером для блокировки (5 % сухое обезжиренное молоко в PBS, 0.1 % твин-20). Качали 1 час на качающейся платформе. Запаивали мембрану в пленку с 7 мл раствора первичных антител (моноклональных АТ или поликлональной сыворотки) в буфере для блокировки. Первичные антитела разводили в соотношении 1: 1000. Качали 2 часа. Затем отмывали мембрану, качая в течение 5 мин. в ванночке с буфером для отмывки (PBS, 0.1 % твин-20). Процедуру повторяли трижды, каждый раз заливали свежий отмывочный раствор. Запаивали мембрану с 7 мл раствора соответствующих вторичных антител (меченных пероксидазой хрена) в буфере для блокировки. Вторичные антитела разводили в соотношении 1: 1000. Качали 1 час. Отмывали мембрану так же, как после гибридизации с первичными АТ.
Для проявления вестерна использовали набор реактивов ECL Western Blotting Analysis System (Amersham Biosciences). Все нижеперечисленные действия выполняли в темной комнате.
Мембрану вынимали из отмывочного раствора и помещали (вверх стороной, на которую шел перенос) на пленку Saran Wrap. Смешивали по 1 мл растворов 1 и 2 из ECL-набора. Смесью равномерно заливали мембрану и выдерживали 1 мин. Быстро сливали проявочный раствор, мембрану заворачивали в пленку Saran Wrap, помещали в кассету и сверху накладывали рентгеновскую пленку, экспонировали 1мин. и 3 мин. Затем рентгеновскую пленку погружали в раствор проявителя на 3 мин., промывали водой и погружали в раствор закрепителя на 3 мин. Пленку снова промывали водой и высушивали.
2.2.6 Электрофорез
2.2.6.1 Горизонтальный электрофорез в агарозном геле
Фракционирование ПГ проводили методом горизонтального гель-электрофореза в пластинах 1% агарозного геля толщиной 1 мм, 9х5см. Электрофорез вели в различных буферных системах (с целью выбрать, в каком буфере происходит наилучшее разделение ПГ на фракции): 50 мМ ацетат бария, рН 5 (электрофорез вели в течение 40 мин.); ТАЕ, рН 8 (7 мин.); 50 мМ ацетат бария, рН 8 (50 мин.) при напряжении 2.2 В/см2. Электрофорез проводили на холоду (камеру для электрофореза ставили в емкость со льдом). Перед нанесением на гель пробы смешивали в соотношении 10: 1 с 50% глицерином, содержащим 0.1 % бромфеноловый синий (буфер для нанесения). В качестве стандарта использовали смесь ГАГ: гепарин (1 мкг/мкл) + хондроитинсульфат В (1 мкг/мкл) + хондроитинсульфаты А и С (1 мкг/мкл). После электрофореза гель окрашивали 0.1% толуидиновым синим в 1% уксусной кислоте (для одновременной визуализации ПГ и нуклеиновых кислот: ПГ окрашиваются в фиолетовый цвет, нуклеиновые кислоты - в синий).
Гель отмывали от избытка красителя в 1% уксусной кислоте до прозрачного фона и высушивали на лавсановой пленке или предметном стекле.
2.2.6.2 Вертикальный электрофорез белков в полиакриламидном геле по Лэммли
Разделение белков, для последующего проведения вестерн-блота проводили методом ступенчатого электрофореза (по Лэммли).
Концентрирующий гель: 4% SDS-ПААГ. Гель полимеризовали в буфере 0.0625 М Трис-НСl, рН 6.8.
Разделяющий гель: 8% SDS-ПААГ. Гель полимеризовали в буфере 0.375 М Трис-НСl, рН 8.9.
Пробы перед нанесением кипятили в течение 5 мин. при 95оС в фирменном буфере для нанесения NuPage SDS Sample Buffer (Invitrogen). В карман наносили по 20 мкг белка. Концентрацию белка в гомогенате определяли по Брэдфорду (см. п.2.2.4.2.)
Электрофорез проводили в буфере 0.025 М Трис, 0.192 М глицин, 0.04 М SDS, рН 8.3 при напряжении 2 В/см2 в течении 4 - 4.5 часов.
Глава 3. Результаты и обсуждение
3.1 Выделение протеогликанов
Нашей первой задачей была отработка метода выделения протеогликанов из микроколичеств (100-1000 мг) клинического материала.
Объектом исследования являлась опухолевая и окружающая нормальная ткань молочной железы человека.
Окружающая опухоль ткань в нашем исследовании являлась контрольной.
Однако не исключено, что она могла подвергнуться предопухолевым изменениям (воспаление, мастопатия).
В процессе работы в методику выделения ПГ (см. п.2.2.1.), разработанную в нашей лаборатории, нами были внесены некоторые изменения.
От диализа растворов ПГ против воды отказались, как от излишней процедуры, когда было замечено, что при концентрировании проб бутанолом кислота уходит во фракцию бутанола, и pH раствора ПГ при этом становится нейтральным.
Диализ растворов против 50 мM ацетата натрия заменили добавлением ацетата натрия до конечной 50 мM концентрации в рабочий раствор ПГ. Данные изменения позволили значительно упростить и ускорить процедуру выделения ПГ.
Мы выяснили, что данным методом из имеющихся у нас образцов ткани выделяется достаточное для визуализации гель-электрофорезом количество ПГ (рис.9).
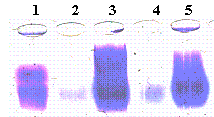
Рис.9. Электрофореграмма протеогликанов
1 - стандартная смесь ГАГ
2 - пациент № 70, контрольная ткань
3 - пациент № 70, опухолевая ткань
4 - пациент № 72, контрольная ткань
5 - пациент № 72, опухолевая ткань
В различных буферных системах качество и четкость разделения ПГ на фракции может варьировать. Нам необходимо было подобрать буферную систему, в которой происходит наилучшее разделение фракций ПГ.
3.2 Отработка условий проведения электрофореза протеогликанов в агарозном геле
Выделенные образцы протеогликанов разделяли электрофорезом в различных буферных системах и сравнивали по подвижности со стандартами ГАГ (рис.10).
В буфере ТАЕ электрофорез проходит очень быстро (7 мин.), стандарты и пробы не успевают разделиться. Наилучшее разделение ПГ на фракции происходило в буфере 50 мM ацетат бария, pH 5. В последующих экспериментах мы будем использовать именно этот буфер.
Таким образом, нами была отработана методика проведения гель-электрофореза протеогликанов, подобран оптимальный буфер для электрофореза.
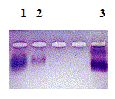
А. электрофорез проводили в буфере 50 мM ацетат бария, pH 8, 40мин.
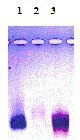
В. электрофорез проводили в буфере TAE, pH 8, 7мин.
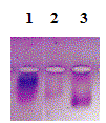
С. электрофорез проводили в буфере 50 мM ацетат бария, pH 5, 50мин.
Рис.10. Электрофореграмма ПГ, в различных буферных системах
1 - пациент № 40, лимфоузел
2 - пациент № 41, доброкачественная
опухоль молочной железы
3 - стандартная смесь ГАГ
3.3 Очистка препаратов протеогликанов от примесей нуклеиновых кислот
Известно, что в выделяемых препаратах ПГ часто присутствуют примеси нуклеиновых кислот (преимущественно РНК), которые мешают идентификации ПГ (окрашиваются теми же красителями, обладают сходной с ПГ подвижностью).
Примесь нуклеиновых кислот удаляли обработкой растворов протеогликанов щелочью или нуклеазами.
3.3.1 Обработка препаратов протеогликанов щелочью
При щелочной обработке препаратов протеогликанов (см. п.2.2.2.1.) происходит не только удаление примесей РНК, но и отделение ГАГ-цепей от белкового кора ПГ, и в этом случае с помощью гель-электрофореза (рис.11) мы анализируем только состав ГАГ в препарате.
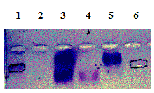
Рис.11. Препараты протеогликанов до и после обработки щелочью
1 - пациент № 45, контрольная ткань
2 - пациент № 45, контрольная ткань + NaOH
3 - пациент № 45, опухолевая ткань
4 - пациент № 45, опухолевая ткань + NaOH
5 - пациент № 40, ткань лимфоузла
6 - пациент № 40, ткань лимфоузла + NaOH
После обработки препаратов ПГ щелочью стало ясно, что в них присутствовала значительная примесь нуклеиновых кислот, и дополнительная очистка препаратов необходима.
Однако после щелочной обработки происходит нарушение целостности молекул протеогликанов.
3.3.2 Обработка препаратов протеогликанов нуклеазами
Очистка препаратов протеогликанов от примесей нуклеиновых кислот с помощью ДНКазы и РНКазы имеет значительное преимущество перед щелочным гидролизом проб, так как при этом не затрагивается структура протеогликанов.
Препараты протеогликанов, выделенных из нормальной и опухолевой ткани молочной железы человека, обрабатывали нуклеазами (см. п.2.2.2.2.). Результаты обработки анализировали с помощью гель-электрофореза (рис.12).
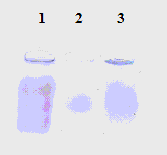
А.
1 - стандартная смесь ГАГ, 2 - контрольная ткань, 3 - опухолевая ткань
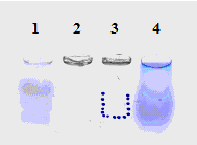
В.
1 - стандартная смесь ГАГ, 2 - контрольная ткань, 3 - опухолевая ткань,
4 - РНК из печени крысы
Рис.12. Препараты протеогликанов до (А) и после (В) обработки нуклеазами
Из приведенных на рис.12 электрофореграмм видно, что после обработки проб ПГ нуклеазами, удаляется значительная примесь нуклеиновых кислот, присутствовавшая в неочищенных препаратах.
Таким образом, нами подобран метод очистки ПГ от примесей нуклеиновых кислот, состоящий в обработке препаратов ПГ нуклеазами.
3.4 Сравнение состава протеогликанов в контрольной и опухолевой ткани молочной железы человека
Протеогликаны, выделенные из контрольной и опухолевой ткани молочной железы, разделяли методом электрофореза и сравнивали по электрофоретической подвижности со стандартами ГАГ (рис.13).
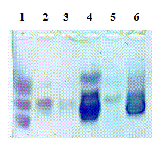
Рис.13. Протеогликаны контрольной и опухолевой ткани молочной железы человека
1 - стандартная смесь ГАГ
2 - пациент № 53, контрольная ткань
3 - пациент № 58, контрольная ткань
4 - пациент № 58, опухолевая ткань
5 - пациент № 59, контрольная ткань
6 - пациент № 59, опухолевая ткань
Как видно из рисунка 13, в опухолевой ткани происходит увеличение содержания суммарных протеогликанов, а также появляется значительная фракция ПГ, соответствующая по электрофоретической подвижности хондроитинсульфатам А и С, отсутствующим в контрольной ткани.
В опухолевой ткани пациентов, прошедших предоперационное лечение, такой тенденции не наблюдалось (рис.14). Возможно, в результате лечения содержание ПГ в опухолевой ткани меняется и становится более близким к норме. Однако данный факт требует дополнительного изучения.
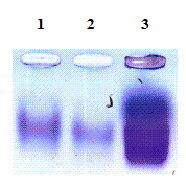
Рис.14. Протеогликаны из ткани пациента, прошедшего предоперационное лечение
Пациент № 67
1 - контрольная ткань
2 - опухолевая ткань
3 - стандартная смесь ГАГ
Таким образом, можно сделать вывод, что в опухолевой ткани происходит увеличение содержания суммарных протеогликанов, и появляется значительная фракция ПГ, соответствующая по электрофоретической подвижности хондроитинсульфатам А и С, отсутствующим в контрольной ткани. У пациентов, прошедших предоперационное лечение, такой тенденции не наблюдается.
Чтобы подтвердить факт увеличения содержания суммарных протеогликанов в опухолевой ткани молочной железы человека по сравнению с контрольной тканью, необходимо провести количественную оценку ПГ.
3.5 Количественная оценка протеогликанов
Количественный анализ ГАГ в пробах проводили по методу 2.2.4.1 Каждое измерение выполняли в трех повторах, полученные результаты усредняли. Нормировали количество гликозаминогликанов на грамм взятой на исследование ткани (таблица 11).
Таблица 11. Оценка содержания гликозаминогликанов в клинических образцах в пересчете на массу ткани
| Пациент | Суммарное количество ГАГ в ткани, мкг | Масса ткани, г | ГАГ, мкг/г ткани | ГАГопухоль/ ГАГконтроль | |
63 |
контроль | 1.5 | 0.34 | 4.5 | 2.1 |
| опухоль | 4.5 | 0.48 | 9.3 | ||
64 |
контроль | 1.2 | 0.46 | 2.6 | 4.9 |
| опухоль | 3.6 | 0.29 | 12.6 | ||
70 |
контроль | 5.6 | 0.46 | 12 | 6 |
| опухоль | 74 | 1.03 | 72 | ||
72 |
контроль | 4 | 0.7 | 5.5 | 4.2 |
| опухоль | 34 | 1.47 | 23 | ||
96 |
контроль | 0.5 | 0.34 | 1.6 | 9.3 |
| опухоль | 4.7 | 0.32 | 14.5 | ||
112 |
контроль | 1.6 | 0.51 | 3.2 | 1.2 |
| опухоль | 1.4 | 0.4 | 3.6 | ||
115 |
контроль | 1.6 | 0.54 | 2.9 | 5 |
| опухоль | 4.2 | 0.29 | 14.4 | ||
116 |
контроль | 3.8 | 0.66 | 5.8 | 1.4 |
| опухоль | 2.3 | 0.3 | 7.8 | ||
Таким образом, в опухолевой ткани молочной железы человека происходит увеличение содержания ГАГ по сравнению с контрольной тканью.
Однако пересчет количества ГАГ на массу ткани в данном случае может оказаться не точным из-за разного содержания жира в контрольной и опухолевой ткани. Поэтому мы также нормировали количество ГАГ на другой параметр: на содержание нуклеиновых кислот или белка в пробе.
Концентрацию нуклеиновых кислот в пробах определяли по методике 2.2.4.3.
Параллельно определяли содержание ГАГ в тех же образцах (таблица 12).
Таблица 12. Оценка содержания гликозаминогликанов в клинических образцах в пересчете на количество суммарных нуклеиновых кислот
| Пациент | Суммарное количество ГАГ в ткани, мкг | Суммарное количество НК в ткани, мкг | ГАГ/НК |
ГАГопухоль/ГАГконтроль |
|
63 |
Контроль | 1.5 | 151 | 1.01x10⁻² | 1.7 |
| Опухоль | 4.5 | 257 | 1.74 x10⁻² | ||
64 |
Контроль | 1.2 | 138 | 8.5 x10⁻³ | 0.6 |
| Опухоль | 3.6 | 680 | 5.4x10⁻³ | ||
96 |
Контроль | 0.5 | 582 | 9х10-4 | 5.6 |
| Опухоль | 4.7 | 892 | 5х10-3 | ||
112 |
Контроль | 1.6 | 337 | 4.7 x10⁻³ | 1.1 |
| Опухоль | 1.4 | 271 | 5.3 x10⁻³ | ||
115 |
Контроль | 1.6 | 156 | 10-2 | 0.8 |
| Опухоль | 4.2 | 509 | 8.2 x10⁻³ | ||
116 |
Контроль | 3.8 | 151 | 2.5 x10⁻² | 2.4 |
| Опухоль | 2.3 | 38 | 6.2 x10⁻² | ||
Из данных, приведенных в таблице 12, видно, что при пересчете количества ГАГ в пробе на количество суммарных нуклеиновых кислот в ней также происходит увеличение содержания ГАГ в опухолевой ткани по сравнению с контрольной. Однако это увеличение не столь значительное, как при нормировании содержания ГАГ в пробах на массу ткани. Возможно, причина этого состоит в том, что в опухолевой ткани происходит увеличение содержания нуклеиновых кислот. Поэтому мы дополнительно нормировали количество ГАГ в ткани на количество белка в ней (таблица 13).
Концентрацию белка в ткани определяли по Брэдфорду (см. п.2.2.4.2.)
Таблица 13. Оценка содержания гликозаминогликанов в клинических образцах в пересчете на количество суммарного белка
| Пациент | Масса ткани, взятой на выделение ГАГ, г | Масса ткани, взятой на выделение белка, г | ГАГ, мкг/г ткани | Белок, мкг/г ткани, x104 | ГАГ/Белок, x10-4 | ГАГопухоль/ГАГконтроль | |
| 63 | Контроль | 0,34 | 0,55 | 4,6 | 1.0 | 4.6 |
0.4 |
| Опухоль | 0,48 | 0,12 | 9,3 | 6.0 | 1.6 | ||
| 112 | Контроль | 0,51 | 0,11 | 3,2 | 1.7 | 1.8 |
0.7 |
| Опухоль | 0,4 | 0,06 | 3,6 | 2.8 | 1.3 | ||
| 115 | Контроль | 0,54 | 0,1 | 2,9 | 2.4 | 1.2 |
4.1 |
| Опухоль | 0,29 | 0,12 | 14,4 | 2.9 | 4.9 | ||
| 116 | Контроль | 0,66 | 0,07 | 5,8 | 1.6 | 3.7 |
1.3 |
| Опухоль | 0,3 | 0,04 | 7,8 | 1.6 | 4.8 | ||
Согласно полученным данным, у пациентов 63 и 112 происходит снижение содержания ГАГ в опухолевой ткани молочной железы по сравнению с контрольной тканью. В то же время у пациенов 115 и 116 содержание ГАГ в опухолевой ткани повышено (в 4.1 и 1.3 раза, соответственно). Возможно, такие различия связаны с индивидуальными особенностями пациентов, их клиническими диагнозами. Данный факт требует дальнейшего изучения.
Таким образом, полученные нами данные подтверждают факт увеличения содержания ГАГ (и протеогликанов) в опухолевой ткани молочной железы человека по сравнению с контрольной тканью (в пересчете на массу ткани - в среднем в 4.3 раза, в пересчете на количество суммарных нуклеиновых кислот в пробе - в среднем в 2 раза).
Для того чтобы определить, за счет каких именно классов протеогликанов происходит данное увеличение, нами была проведена идентификация фракций протеогликанов, выделенных из нормальной и опухолевой ткани молочной железы человека.
3.6 Идентификация фракций протеогликанов
Идентификацию фракций протеогликанов проводили с помощью специфических ферментов деградации ГАГ, а также с помощью азотистой кислоты.
3.6.1 Обработка препаратов протеогликанов специфическими ферментами
Пробы ПГ обрабатывали специфическими ферментами деградации ГАГ (см. п.2.2.3.1.): хондроитиназой АС, которая гидролизует хондроитинсульфаты А и С, и хондроитиназой АВС, гидролизующей хондроитинсульфаты А, В (ДС) и С (рис.15).
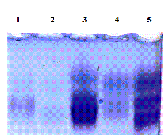
Рис.15. Препараты протеогликанов до и после обработки специфическими ферментами
А. Пациент № 58
1 - контрольная ткань
2 - контрольная ткань + хондроитиназа АС
3 - опухолевая ткань
4 - опухолевая ткань + хондроитиназа АС
5 - стандартная смесь ГАГ
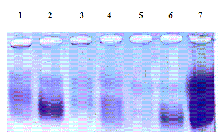
В. Пациент № 54
1 - контрольная ткань
2 - опухолевая ткань
3 - контрольная ткань + хондроитиназа АС
4 - контрольная ткань + хондроитиназа АВС
5 - опухолевая ткань + хондроитиназа АС
6 - опухолевая ткань + хондроитиназа АВС
7 - стандартная смесь ГАГ
Обработка хондроитиназой АС удаляла основную массу ГАГ из препарата ПГ опухолевой ткани, что позволяет сделать вывод о появлении в опухолевой ткани хондроитинсульфатов А и С. Также после обработки проб протеогликанов опухолевой ткани хондроитиназой АС значительно уменьшалась и фракция, соответствующая по электрофоретической подвижности дерматансульфатам. Этот факт может говорить о том, что фракция дерматансульфатов в опухолевой ткани претерпевает изменения, которые, однако, не сказываются на ее электрофоретической подвижности. Возможно, в ней снижается степень модификации D-глюкуроновой кислоты в L-идуроновую.
3.6.2 Обработка препаратов протеогликанов азотистой кислотой
Для того чтобы идентифицировать присутствие гепарансульфатов, пробы ПГ обрабатывали азотистой кислотой (см. п.2.2.3.2.), результаты обработки анализировали с помощью гель-электрофореза (рис.16).
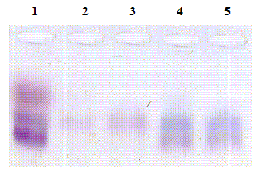
Рис.16. Препараты протеогликанов до и после обработки азотистой кислотой
А. Пациент № 51
1 - стандартная смесь ГАГ
2 - контрольная ткань
3 - контрольная ткань + HNO2
4 - опухолевая ткань
5 - опухолевая ткань + HNO2
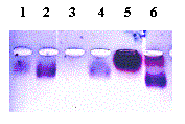
В. Пациент № 45
1 - контрольная ткань
2 - опухолевая ткань
3 - контрольная ткань + HNO2
4 - опухолевая ткань + HNO2
5 - гепарин + HNO2
6 - стандартная смесь ГАГ
Обработка препаратов протеогликанов азотистой кислотой, избирательно разрушающей гепарансульфаты, не приводила к исчезновению нижней фракции, появляющейся в образцах ПГ, выделенных из опухолевой ткани, что позволяет дополнительно подтвердить, что она представляет собой хондроитинсульфат. После обработки азотистой кислотой препарата ПГ контрольной ткани в нем исчезала верхняя фракция, что подтверждает ее принадлежность к гепарансульфатам.
Таким образом, нами была проведена идентификация фракций протеогликанов, выделенных из контрольной и опухолевой ткани молочной железы человека. Было показано, что увеличение содержания протеогликанов в опухолевой ткани происходит за счет появления в ней значительного количества хондроитинсульфатов А и С, отсутствующих в контрольной ткани.
Согласно предварительным данным, полученным после ферментативной обработки проб ПГ, в опухолевой ткани изменениям подвергается также фракция дерматансульфат протеогликанов (поскольку фермент хондроитиназа АС начинает деградировать данную фракцию).
Для проверки данного факта нами была поставлена задача, определить экспрессию декорина (как основного представителя дерматансульфат протеогликанов в тканях млекопитающих) в контрольной и опухолевой ткани молочной железы человека.
3.7 Определение экспрессии декорина в контрольной и опухолевой ткани молочной железы человека
Наличие декорина в образцах ткани определяли методом вестерн-блота (см. п.2.2.5.) с использованием моноклональных мышиных антител к коровому белку данного протеогликана.
Проявление вестерна осуществляли с помощью ECL-набора (рис.17).
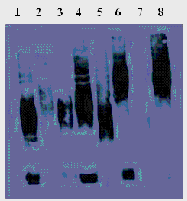
Рис.17. Вестерн-блот с антителами к коровому белку декорина
1, 2 - пациент №111, контроль, опухоль
3, 4 - пациент №112, контроль, опухоль
5, 6 - пациент №117, контроль, опухоль
7, 8 - пациент №124, контроль, опухоль
Данная картина вестерна типична для протеогликанов. Хотя антителами окрашивается коровый белок, но он движется в составе единой массивной молекулы протеогликана (с углеводными цепями ГАГ). Вследствие этого четкого деления полос не происходит. Такое деление возможно лишь после удаления углеводной части протеогликана.
Согласно полученным данным, декорин присутствует как в контрольной, так и в опухолевой ткани молочной железы человека. Однако электрофоретическая подвижность декорина в опухолевой ткани значительно изменена. Это может быть обусловлено изменением структуры или количества углеводных цепей ДС, присутствующих на коровом белке декорина.
Поскольку ранее мы показали, что в опухолевой ткани молочной железы человека фракция, соответствующая по электрофоретической подвижности дерматансульфатам, деградируется ферментом хондроитиназой АС, то возможно, изменение углеводной части декорина связано с замещением ДС-цепей на ХС-цепи. Известно, что в ходе биосинтеза дерматансульфат протеогликанов (и декорина, в частности) на коровом белке вначале синтезируются цепи хондроитинсульфатов, которые затем превращаются в дерматансульфаты под действием фермента D-глюкуронил С5-эпимеразы.
Возможно, в опухолевой ткани происходит нарушение или потеря активности данного фермента, в результате чего на коровом белке декорина и других ДСПГ присутствуют незрелые цепи ХС.
Для изучения данного вопроса требуется определение уровня экспрессии D-глюкуронил С5-эпимеразы в контрольной и опухолевой ткани молочной железы человека.
3.8 Определение экспрессии белковой молекулы D-глюкуронил С5-эпимеразы в контрольной и опухолевой ткани молочной железы человека
Ранее нашей группой методами мультиплексной ПЦР и ПЦР в реальном времени было показано, что в опухолевой ткани молочной железы человека происходит снижение экспрессии D-глюкуронил С5-эпимеразы по сравнению с контрольной тканью и нарушение структуры мРНК-транскрипта.
Нашей задачей было определение наличия белковой молекулы эпимеразы в тех же клинических образцах.
Присутствие молекулы D-глюкуронил С5 - эпимеразы в ткани определяли методом вестерн-блота с использованием поликлональной кроличьей сыворотки. Проявление вестерна осуществляли с помощью ECL-набора (рис.18).
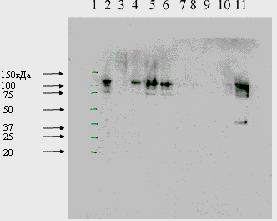
Рис.18. Вестерн-блот с антителами к
D-глюкуронил С5-эпимеразе
1 - маркер “Калейдоскоп”
2, 3 - пациент №111 контроль, опухоль
4, 5 - пациент №112 контроль, опухоль
6, 7 - пациент №113 контроль, опухоль
8, 9 - пациент №114 контроль, опухоль
10, 11 - пациент №117 контроль, опухоль
Нами были исследованы образцы ткани 20 пациентов, и было показано, что в опухолевой ткани молочной железы человека происходят изменения в структуре D-глюкуронил С5-эпимеразы.
У части пациентов в опухолевой ткани данный белок не детектировался, а в контрольной ткани присутствовали дополнительных укороченные фрагменты эпимеразы (100, 75, 40 кДа). У других пациентов экспрессия эпимеразы детектировалась как в контрольной, так и в опухолевой ткани, однако в опухолевой ткани также присутствовали укороченные фрагменты белка. Возможно, такие различия связаны с клиническими диагнозами пациентов.
Таким образом, в опухолевой ткани молочной железы человека происходят изменения в экспрессии белковой молекулы D-глюкуронил С5-эпимеразы, что подтверждает наше предположение о возможном участии данного фермента в изменении структуры цепей ГАГ при опухолевом перерождении.
Заключение
Таким образом, в ходе проделанной работы нами был отработан метод выделения протеогликанов из микроколичеств клинического материала контрольной и опухолевой ткани молочной железы человека и проведен сравнительный анализ содержания ГАГ в нормальной и опухолевой ткани. Данный анализ показал, что в опухолевой ткани молочной железы человека происходит увеличение содержания суммарных протеоглликанов в среднем в 4.3 раза, при пересчете на массу ткани, и в среднем в 2 раза, при пересчете на количество нуклеиновых кислот в ткани, по сравнению с контрольной тканью.
Был подобран оптимальный буфер для проведения электрофоретического разделения ПГ. Проведена очистка препаратов протеогликанов от примесей нуклеиновых кислот.
Была проведена идентификация фракций протеогликанов, выделенных из контрольной и опухолевой ткани молочной железы 26 пациентов. Было обнаружено, что увеличение содержания ПГ в опухолевой ткани происходит за счет появления в ней значительной фракции хондроитинсульфатов А и С, отсутствующих в контрольной ткани. Также в опухолевой ткани изменена фракция дерматансульфатов, поскольку она частично деградируется ферментом хондроитиназой АС.
Факт изменения структуры углеводных частей ДСПГ в опухолевой ткани молочной железы человека был дополнительно подтвержден после определения экспрессии декорина (как наиболее характерного представителя дерматансульфат протеогликанов в тканях млекопитающих) в клинических образцах методом вестерн-блота. Данным методом было показано, что в опухолевой ткани молочной железы человека меняется электрофореточеская подвижность декорина, что может свидетельствовать о нарушении структуры его ГАГ-цепей.
Параллельное определение экспрессии D-глюкуронил С5-эпимеразы (фермента, ответственного за созревание ДС-цепей) методом вестерн-блота в тех же образцах ткани показало, что в опухолевой ткани молочной железы человека изменена структура данного фермента, или же его экспрессия не детектируется.
Полученные данные служат подтверждением выдвинутой нами гепотезы о возможной роли D-глюкуронил С5-эпимеразы в изменении состава протеогликанов в опухолевой ткани молочной железы человека.
Задачей следующих экспериментов является продолжение набора данных по экспрессии декорина, а также другого представителя ДСПГ - бигликана, и D-глюкуронил С5-эпимеразы в контрольной и опухолевой ткани молочной железы человека методом вестерн-блота. Также планируется провести определение содержания и локализации данных протеогликанов и D-глюкуронил С5-эпимеразы в тех же образцах ткани методом иммуногистохимии.
ВЫВОДЫ:
1. В опухолевой ткани молочной железы человека происходит увеличение содержания суммарных протеогликанов по сравнению с контрольной тканью в среднем в 4.3 раза, при пересчете на массу ткани, или в среднем в 2 раза при пересчете на количество нуклеиновых кислот в ткани.
2. Увеличение содержания протеогликанов в опухолевой ткани молочной железы человека происходит за счет появления хондроитинсульфат протеогликанов А и С, отсутствующих в контрольной ткани.
3. В опухолевой ткани молочной железы человека изменена структура ГАГ-цепей дерматансульфат протеогликанов. Данная фракция чувствительна к ферменту хондроитиназе АС. Также в опухолевой ткани изменена электрофоретическая подвижность дерматансульфат протеогликана декорина по сравнению с контрольной тканью.
4. В опухолевой ткани молочной железы человека происходит нарушение структуры белковой молекулы D-глюкуронил С5-эпимеразы или полное исчезновение экспрессии данного фермента.
Список литературы
1. Selleck S. B. Overgrowth syndromes and the regulation of signaling complexes by proteoglycans // Am. J. Hum. Genet. 1999. V 64. P.372-377.
2. Rodйn L., Koerner T., Olson C. and Schwartz N. B. Mechanisms of chain initiation in the biosynthesis of connective tissue polysaccharides // Fed. Proc. 1985. V.44. P.373-380.
3. Fraser J. R. E., Laurent T. C.