Сравнительный анализ структуры наследственной компоненты подверженности к бронхиальной астме и туберкулезу по генам ферментов метаболизма ксенобиотиков
Ген CYP17 кодирует фермент цитохром Р450С17a, который выполняет две различные функции в биосинтезе стероидов, что обусловливает его изучение как гена кандидата восприимчивости к эндокринзависимым опухолям. Тем не менее, были получены довольно противоречивые результаты при исследовании пациентов с раком яичников и полиморфизма Т-С в промоторном регионе CYP17 гена в различных популяциях [Spurdle et al., 2000]. Что еще раз подтверждает популяционную вариабельность полиморфизма генов биотрансформации, и, следовательно, различный вклад генов системы метаболизма у разных индивидуумов в процессы онкогенеза.
Ген CYP1A1 человека был клонирован и секвенирован в 1986 году и локализован на хромосоме 15. Полиморфизм в 3’-некодирующем регионе гена, обусловленный заменой цитозина на тимидин, узнаваемый MspI эндонуклеазой рестрикции был впервые идентифицирован у японцев. Различные исследования показали ассоциацию данного полиморфизма и риском развития РЛ в европеоидной популяции [Shields et al. 1993; Alexandrie et al., 1994; Sugimura et al., 1994]. Эти результаты сходны с данными, полученными в аналогичной работе по изучению злокачественного новообразования в легких для японской популяции [Xu et al., 1996].
Употребление алкоголя в больших дозах рассматривается как один из факторов, способствующих развитию различных заболеваний печени. Так, отмечен высокий риск развития гепатоцеллюлярной карциномы (ГЦК) у японцев, злоупотребляющих алкоголем. Причем, наблюдалась повышенная частота С2 аллеля гена CYP2E1, связанного с высокой транскрипционной и ферментативной активностью, что также позволяет говорить о повышенном риске к ГЦК у индивидуумов, злоупотребляющих алкоголем [Munaka et al., 2003].
Развитие алкогольного поражения печени (АПП) на фоне алкогольной интоксикации всего организма является следствием несостоятельности ферментативной системы биотрансформации ксенобиотиков, участвующей в метаболизме этанола. Метаболизм этанола происходит в печени, где метаболизируется порядка 98% попавшего в организм алкоголя по НАДФ-зависимому пути с помощью алкогольдегидрогеназы и ацетилдегидрогеназы, локализованных преимущественно в цитоплазме клеток печени. Существует и другой путь окисления этанола с помощью микросомальной этанолокисляющей системы при участии ферментов семейства цитохрома Р450. Шангареева З.А. и др. показали, что для пациентов, страдающих АПП характерно повышение частот мутантных аллелей генов CYP2E1, CYP1A1, mEPHX, GSTT1 и GSTM1, приводящее к увеличению рисковой значимости гетерозиготных генотипов генов CYP2E1 (OR=7,37), CYP1A1 (OR=2,87), mEPHX (OR=2,45) [Шангареева и др., 2003].
Начало или обострение псориаза, обусловленного Т-клеточным механизмом заболевания кожи с аутоиммуным характером заболевания, зачастую вызывается применением b-блокаторов и противомалярийных лекарственных препаратов. Предполагается, что метаболическая эффективность, обусловленная различными вариантами аллелей генов системы ферментов биотрансформации, может привести к накоплению ксенобиотиков или их реактивных метаболитов в органах-мишенях, а в дальнейшем неоантигены или неизвестные пептиды могут вызвать агрессивную реакцию со стороны Т-клеток. В этом контексте, было проведено исследование полиморфизма гена CYP2C19 у пациентов с псориазом. В ходе исследования было показано, что для гетерозиготных носителей по гену CYP2C19 (*1А и *2А) характерно более позднее развитие псориаза, в то время как эти же генотипы показали протективную роль для развития артрита, связанного с псориазом [Richter-Hintz et al., 2003].
Цитохромы P450 ответственны приблизительно за 75% метаболизма лекарственных препаратов и различных химических агентов. Человек имеет 59 активных генов, и 6 из них кодируют важные для лекарственного метаболизма ферменты. Приблизительно 40% цитохром P450-зависимого лекарственного метаболизма катализируются полиморфными ферментами, и такие «лекарство→P450» взаимодействия часто рассматриваются в отношении побочных действий лекарственных препаратов [Ingelman-Sundberg, 2004].
Экспрессия цитохрома P450 и связанная с ней биотрансформация изменяется при различных инфекционных заболеваниях. Следовательно, при развитии воспаления и инфекции в организме нарушена способность метаболизма печени и других органов, контролирующих действие лекарств. Содержание цитохрома Р450 и монооксигеназные активности в тканях этих органов снижаются при развитии бактериальных и вирусных инфекций, иммунизации различными антигенами, в условиях фармакологической иммуностимуляции, что опосредовано цитокинами. Депримирующее воздействие на цитохром Р450-зависимые монооксигеназы обнаружено у IFNa, IFNb, IFNg, IL-1 и TNF, IL-6, IL-11, IL-2. Цитокины угнетают транскрипцию генов и накопление мРНК различных изоформ цитохрома Р450 в клетках, возможно и посттранскрипционное угнетение синтеза белка некоторых изоформ [Renton, 2004]. Благодаря цитокиновой модуляции процессов монооксигенирования на цитохроме Р450, реализуется адаптация механизмов биотрансформации низкомолекулярных ксенобиотиков в условиях активации иммунной системы. Это обеспечивает, с одной стороны, защиту от последствий возможной неконтролируемой активации потенциально опасной для организма ферментной системы и снижение риска нарушения оксидантного равновесия, с другой - сохранение оптимального уровня и неогенез необходимых для адекватного "ответа" организма низкомолекулярных липофильных сигнальных молекул. Угнетение фармакометаболизирующей функции печени и изменение фармакодинамики и токсичности лекарственных препаратов необходимо учитывать при проведении терапии препаратами рекомбинантных цитокинов. В этом случае необходимо отметить, что ингибирование метаболизма различными препаратами также как влияние на концентрацию и/или число различных цитокинов в воспаленных тканях, может вызывать положительные эффекты у пациентов с различными заболеваниями, что позволит говорить о новых терапевтических возможностях лекарственных средств [Сибиряк, 2003].
Разнообразие элементов многокомпонентной и многоэтапной системы метаболизма имеет важное значение для фармакогенетики в плане разработки индивидуального подхода к лечению пациента. C помощью предупреждения индивидуального ответа на лекарственный препарат становится возможным повышение эффективности лечения и устранения нежелательных эффектов от медикаментозной терапии [Баранов и др., 2000].
Заключая обзор в целом, необходимо отметить, что изучение естественной изменчивости генов ферментов биотрансформации ксенобиотиков у больных и членов их семей, а также установление их вклада в патогенез распространенных заболеваний, таких как БА и ТБ, стало задачей настоящего исследования. А понимание основных механизмов, участвующих в патогенезе заболеваний, поможет понять не только причины возникновения болезней, но и научиться бороться с ними.
ГЛАВА 2. МАТЕРИАЛ И МЕТОДЫ ИССЛЕДОВАНИЯ
2.1. Характеристика обследованных групп населения
В рамках проведенного исследования был проанализирован полиморфизм генов биотрансформации ксенобиотиков и уточнена их функциональная значимость в отношении БА и ТБ легких у русских жителей г. Томска.
Выборки были сформированы для данного исследования на основе ДНК-банка лаборатории популяционной генетики НИИ медицинской генетики ТНЦ СО РАМН, созданного сотрудниками этой лаборатории.
Контрольная группа.
В качестве контрольной группы использовалась выборка, принадлежащая в настоящее время банку ДНК лаборатории популяционной генетики НИИ медицинской генетики ТНЦ СО РАМН. Выборку в количестве 140 человек (средний возраст ±S.D. 64,3±18,0) частично составили индивиды не родственные между собой и не имеющие по результатам клинического обследования бронхолегочной патологии. Среди индивидов контрольной группы было 80 женщин (средний возраст ±S.D. 65,8±17,8) и 60 мужчин (средний возраст ±S.D. 63,5±18,1).
2.1.1. Характеристика группы больных туберкулезом
Материал для исследования больных ТБ был собран на базе Областной Томской Клинической туберкулезной больницы, Детского легочно-туберкулезного отделения Железнодорожной больницы, Областной детской туберкулезной больницы, а также Областном противотуберкулезном диспансере, туберкулезного отделения Областной психиатрической больницы. Сбор материала и клиническое обследование больных осуществлялось при участии сотрудников кафедры фтизиатрии Сибирского государственного медицинского университета (заведующий – член–корр. РАМН, профессор Стрелис А.К.). Основным критерием отбора в группу пациентов были два условия – отсутствие родственных связей между индивидами и этническая принадлежность.
Общая выборка больных туберкулезом легких.
Выборку составили 304 индивида, средний возраст ±S.D. которых был 30,6±15,4, из них 99 женщин, средний возраст ±S.D. которых составил 26,3±14,6 года и 205 мужчин средний возраст ±S.D. – 32,8±15,4 лет. Диагноз туберкулеза легких устанавливался на основании данных микроскопии мокроты с обязательным рентгенологическим исследованием легких для определения формы заболевания и распространенности специфического процесса (общепринятые методы). Противотуберкулезную терапию больные получали по 1-ой категории, согласно рекомендациям ВОЗ (табл. 4).
Таблица 4
Режимы лечения больных с распространенным деструктивным туберкулезом легких по протоколам ВОЗ
|
Масса тела до начала лечения, кг |
Начальная фаза: 2 месяца | Фаза продолжения | |||
| 4 месяца | |||||
|
Иониазид+ Рифампицин, таблетка 100мг+150мг 150мг+300мг |
Пиразинамид, таблетка 500 мг |
Этамбутол, таблетка 400мг |
Стрептомицин, порошок для инъекций, 1г основания во флаконе |
Иониазид+ Рифампицин, таблетка 100мг+150мг 150мг+300мг |
|
| 33-50 |
3 табл. (100мг+150мг) ежедневно |
3 табл. ежедневно |
2 табл. ежедневно |
750 мг ежедневно |
3 таблетки ежедневно |
|
50 и более |
2 таблетки (150 мг+ 300мг) ежедневно |
4 табл. ежедневно |
3 табл. ежедневно |
1 г ежедневно |
4 таблетки ежедневно |
Семейная выборка больных туберкулезом легких.
Семейная выборка была зарегистрирована по пробандам – больным туберкулезом, находившихся на лечении в противотуберкулезных учреждениях г. Томска в период с 2000 по 2004 г.. Всего было обследовано 42 семьи (109 человек), в том числе 25, зарегистрированных по пробандам – детям в возрасте от 1 года до 15 лет (средний возраст ±S.D. составил 7,7±3,9). Семнадцать семей было выбрано по взрослым пробандам в возрасте от 17 до 48 лет (29,4±12,3 лет). В составе «пробанд/пробанды-мать-отец» исследовано 19 семей, в неполном составе, когда отсутствовал материал одного из родителей – 16 семей.
Группу пробандов – детей составили 10 мальчиков (7,2±2,9 лет) и 15 девочек (7,9±4,5 лет). Средний возраст пробандов – детей разного пола достоверно не различался (р>0,05). Среди взрослых пробандов было 7 женщин (19,8±7,9 лет) и 10 мужчин (23,9±9,1 лет). Всем пробандам был поставлен диагноз туберкулеза.
2.1.2. Характеристика группы больных атопической бронхиальной астмой
Исследованная семейная выборка была зарегистрирована по пробандам – больным БА, находившихся под наблюдением в клинико-профилактических учреждениях г. Томска в 1997-2000 г.. Клиническое обследование и диагностику провели сотрудники кафедры факультетской педиатрии с курсом детских болезней (заведующий – д.м.н., профессор Огородова Л.М.) Сибирского государственного медицинского университета, областного детского центра клинической иммунологии и аллергологии (Областная детская больница, г. Томск, главный врач – Сальников В.А.).
Семейная выборка больных БА.
Всего обследовано 76 семей (213 человек), 61 семья из которых была набрана в составе трех человек «пробанд-мать-отец» и 15 семей – в составе двух человек, т.е. «пробанд-мать/или отец». В исследуемой выборке были 72 индивида, зарегистрированные по пробандам-детям в возрасте от 1,7 до 15 лет (средний возраст ±S.D.составил 8,5±3,5). Восемь семей было выбрано по взрослым пробандам в возрасте от 24 до 42,5 лет (34,4±7,2 лет).
Основную часть пробандов-детей составили мальчики (n=47), девочек примерно в два раза меньше (n=25). Средний возраст пробандов-детей разного пола достоверно не различался (8,4±3,5 лет у мальчиков и 8,6±3,5 лет у девочек; р>0,05). Среди взрослых пробандов было семь женщин (34,4±7,2 лет). Всем пробандам был поставлен диагноз «атопическая бронхиальная астма».
Выборка больных БА.
Выборку больных БА составили 134 индивида (21,9±18,8 лет), из них 59 - женщины в возрасте от 2 до 79 лет (24,7±18,5 лет) и 75 – мужчины в возрасте от 1,7 до 68 лет (19,7±18,9 лет). Среди больных БА 78 индивидов – дети в возрасте от 1,7 до 15 лет (8,8±3,7 лет), из которых 28 девочек в возрасте от 2 до 15 лет (8,8±3,9 лет) и 50 мальчиков в возрасте от 1,7 до 14,8 лет (8,6±3,5 лет). Кроме того, среди индивидов общей выборки больных БА было 56 взрослых (40,3±15,6 лет), из которых 31 женщина в возрасте от 19 до 79 лет (39,0±13,9 лет) и 25 мужчин от 19 до 68 лет (41,9±17,5 лет). Между группами мальчиков и девочек, а также мужчин и женщин не показано различий по возрастному критерию (р>0,05). Всем пациентам был выставлен диагноз «атопическая бронхиальная астма».
2.2. Характеристика методов исследования
2.2.1. Клинико-лабораторные методы
Пробанды, а также их родственники первой степени родства, согласившиеся на проведение исследования, были обследованы для верификации диагноза БА и симптомов атопии. Обследование включало сбор семейного анамнеза и многочисленные клинические тесты: в данной работе были использованы результаты только спирометрических, аллергологических и иммунологических анализов.
Диагноз «бронхиальная астма» верифицировали на основании критериев ВОЗ: наличие характерного для заболевания анамнеза, типичных клинических симптомов астмы, атопии (атопический анамнез, положительные скарификационные аллергопробы (САП), уровень общего сывороточного IgE более 100 МЕ/мл) [Бронхиальная астма. Глобальная стратегия, 1996]. В случае невозможности доказать наличие атопии, выставляли диагноз неатопической БА. Степень тяжести заболевания устанавливали согласно критериям проекта GINA (2002 г.) и Национальной программы лечения и профилактики БА у детей (1997 г.).
Аллергологическое обследование включало сбор аллергоанамнеза и проведение САП на пищевые, ингаляционные, эпидермальные, растительные и грибковые аллергены с использованием стандартных наборов согласно рекомендациям производителей («Биомед», Москва; «Immuno Tek», Испания).
Измерение уровня общих сывороточных антител класса E проводили с помощью твердофазного иммуноферментного анализа с использованием стандартных наборов согласно рекомендациям производителей («Протеиновый контур», Санкт-Петербург; «Veda Lab», Франция). Уровень общего сывороточного IgE пересчитывали на международные единицы на миллилитр (МЕ/мл; 1 МЕ =2,42 нг/мл).
Исследование функции внешнего дыхания (ФВД) осуществляли по стандартной методике (анализ кривой «поток-объем» и показателей спирометрии) на установке «Master Lab Pro» («Эрих Йегер», Германия) [Quanjer et al. 1993].
Для определения степени реактивности бронхов проводили провокационный тест с метахолином. Диапазон концентраций растворов метахолина составили 0,25-32 или 64 мг/мл. Результаты выражали как концентрация метахолина, вызывающая не менее чем 20% падение объема форсированного выдоха (РС20), вычисленная методом линейной интерполяции по общепринятой формуле [Sterk et al., 1993]. Диагностически значимой в отношении БА считали РС20 не менее 20 мг/мл – это состояние рассматривали как наличие бронхиальной гиперреактивности (BHR).
В отношении больных ТБ был проведен полный клинико – эпидемиологический анализ с учетом возраста начала заболевания, социального статуса, вредных привычек (курение, злоупотребление алкоголем, употребление наркотиков), сопутствующей патологией, наличия контакта с туберкулезным больным, а также данные о ТБ в роду. Анализу подвергались выраженность клинических проявлений (жалобы, объективный статус больного), результаты лабораторных и инструментальных методов исследования (микроскопия и посев мокроты на МБТ, чувствительность к противотуберкулезным препаратам, рентгенологическое исследование легких) на момент начала заболевания, а также через 2 месяца лечения.
Определение количества эритроцитов, концентрации гемоглобина, общего числа лейкоцитов и их отдельных морфологических форм, величину СОЭ, уровень печеночных проб (билирубина, аланинаминотрансферазы и аспартатаминтрансферазы) исследовали общепринятыми методами [Меньшиков, 1987].
2.2.2. Молекулярно-генетические методы
В ходе выполнения работы было исследовано 6 полиморфных вариантов генов цитохромов Р450 (CYP2C19, CYP2E1) и глутатионовых S-трансфераз (GSTT1, GSTM1 и GSTP1) (табл. 4).
Для генотипирования индивидов по указанным полиморфизмам использовали образцы тотальной ДНК из банка НИИ медицинской генетики (семейная выборка больных БА и контрольная выборка) и ДНК, выделенную из цельной венозной крови (семейная выборка больных ТБ) по стандартной неэнзиматической методике [Маниатис и др., 1984; Lahiri et al., 1992]. Выделенную ДНК замораживали и хранили при температуре -20°С до проведения эксперимента.
Генотипирование осуществляли с помощью полимеразной цепной реакции (ПЦР), используя структуру праймеров и параметры температурных циклов, описанных в литературе (табл. 5). Смесь для ПЦР содержала 0,5-2,0 мкл специфической пары праймеров с концентрацией 1 о.е./мл, 1,2-1,8 мкл 10ґ буфера для амплификации с концентрацией MgCl2 0,5-2,0 mM, 0,5-1,0 е.а. Taq ДНК-полимеразы («Сибэнзим», «Медиген», Новосибирск) и 100-200 нг геномной ДНК. Смесь помещали в 0,5 мл пробирки типа «Эппендорф», наслаивали сверху минеральное масло для предотвращения испарения и амплифицировали в автоматических минициклерах «MJ Rеsearch» (США) и «ЦиклоТемп 105» (Россия-Австрия).
Программа амплификации включала предварительную денатурацию при 94°С в течение 5 минут, с последующими 30-35 циклами отжига при температуре 60°С (1мин.), элонгации цепи при 72°С (40 сек.) и денатурации при 94°С (40 сек.). Программу завершала финальная элонгация при 72°С в течение 3 минут. Амплификат подвергали гидролизу соответствующей рестриктазой (табл.4) при оптимальной для фермента температуре на протяжении 12-24 ч. Рестрикционная смесь включала 5-7 мкл амплификата, 1,0-1,2 мкл 10ґ буфера для рестрикции, поставляемого фирмой – производителем («Сибэнзим», Новосибирск), и 1-5 единиц активности фермента (в зависимости от эффективности его работы). Продукты рестрикции фракционировали 20-30 минут в 3% агарозном геле при напряжении 120 В. Фрагменты ДНК окрашивали бромистым этидием и визуализировали в ультрафиолетовом свете с применением компьютерной видеосъемки на приборе «UV-VIS Imager-II» (США).
Таблица 5
Характеристики исследованных полиморфных вариантов генов системы биотрансформации ксенобиотиков
| Ген | Локализация | Полиморфизм | Структура праймеров |
Фермент реакции |
Литературный источник |
| СYP2C19 |
10q24.1-24.3 Экзон 5 |
681G>A |
5’-aat-tac-aac-cag-agc-ttg-gc 5’-tat-cac-ttt-cca-taa-aag-caa-g |
SmaI | De Morais et al., 1994 |
| CYP2E1 |
10q24.3-qter 5’-фланкирующий регион |
1293G>C |
5’-cca-gtc-gag-tct-aca-ttg-tca 5’-ttc-att-ctg-tct-tct-aac-tgg |
PstI | Salama et al., 1999 |
| 10q24.3-qter Интрон 6 | 7632T>A |
5’-ctg-ctg-cta-atg-gtc-act-tg 5’-gga-gtt-caa-gac-cag-cct-ac |
DraI | Lin et al., 1998 | |
| GSTM1 | 1p13.3 | Делеция |
5’-tgc-ttc-acg-tgt-tat-gga-ggt-tc 5’-gtt-ggg-ctc-aaa-tat-acg-gtg-g |
- | Spurdle et al., 2001 |
| GSTT1 | 22q11.23 | Делеция |
5’-ggt-cat-tct-gaa-ggc-caa-gg 5’-ttt-gtg-gac-tgc-tga-gga-cg |
- | |
| GSTP1 |
11q13 Экзон 5 |
313A>G |
5’- gta-gtt-tgc-cca-agg-tca-ag 5’- agc-cac-ctg-agg-ggt-aag |
BsoMAI |
Ishii et al., 1999 |
2.2.3. Статистические методы анализа
Распределение генотипов по исследованным полиморфным локусам проверяли на соответствие равновесию Харди-Вайнберга (РХВ) с помощью точного теста Фишера [Вейр, 1995].
Ожидаемую гетерозиготность полиморфизма генов цитохромов Р450 (CYP2C19 и CYP2E1) и глутатионовых S-трансфераз (GSTT1, GSTM1 и GSTP1) рассчитывали по опубликованным методикам [Животовский, 1984]. Относительное отклонение ожидаемой гетерозиготности от наблюдаемой (D) рассчитывали по формуле:
D=(hobs–hexp)/hexp,
где hobs и hexp – ожидаемая и наблюдаемая гетерозиготность соответственно.
Для анализа ассоциации маркеров исследуемых генов с туберкулезом и бронхиальной астмой, а также с качественными патогенетически важными признаками заболеваний, сравнивали частоты аллелей и генотипов в группах больных и здоровых индивидов, используя критерий χ2 с поправкой Йетса на непрерывность, а также с применением двустороннего точного критерия Фишера.
Об ассоциации разных генотипов (или их комбинаций) с заболеваниями судили по величине отношения шансов (odds ratio (OR)) [Pearce, 1993], величины, показывающей, во сколько раз выше вероятность заболеть для индивида с определенным генотипом (или комбинацией генотипов):
OR= (A/B)/(C/D), где
А – число (процент) людей с данным генотипом (комбинацией генотипов) в группе больных;
С - число (процент) людей с данным генотипом (комбинацией генотипов) в группе здоровых;
В – число (процент) индивидов, не имеющих данного генотипа (комбинации генотипов) в группе больных;
D - число (процент) индивидов, не имеющих данного генотипа (комбинации генотипов) в группе здоровых.
Значения OR>1 указывают на возможную положительную ассоциацию с заболеванием. Обсуждение величин OR проводили при уровне значимости не более 5%.
При анализе семейного материала для поиска ассоциаций с генетическими маркерами был использован тест на неравновесие по сцеплению – Transmission/Disequilibrium Test (TDT):
TDT= (b-c)2/(b+c)2,
где b и c – число наследуемых аллелей от гетерозиготных родителей [Spielman, 1993]. TDT рассматривает вероятности передачи маркерного аллеля от гетерозиготного родителя больному потомку и отклонение этой вероятности от 0,5 может появиться только тогда, когда есть сцепление между маркерным локусом и локусом, контролирующим болезнь [Аксенович, 2001]. Этот тест имеет ряд существенных преимуществ: помимо того, что обладает высокой статистической мощью, к тому же устойчив к эффектам популяционной структуры (подразделенность, гетерогенность, примесь и т.д.), практически безотносителен к типу наследования.
При статистически значимых отклонениях распределения количественных признаков от нормального (по данным теста Шапиро-Уилки), сравнение проводили с помощью непараметрических критериев Манна-Уитни и Краскела-Уоллиса.
Для сравнения средних значений признаков до и после лечения применяли тест Уилкоксона [Гланц, 1998].
Для оценки параметров распределения, включая средние значения, стандартные отклонения использовали стандартный набор статистических процедур [Лакин, 1990]. Усреднение статистически значимых коэффициентов корреляции проводили с помощью z-преобразования Р. Фишера, после проверки на значимость различий полученных коэффициентов корреляции [Лильин и др., 1984].
Все расчеты проводили с использованием пакета прикладных программ “STATISTIСA for Widows 6.0” и в программе “Microsoft Excel 97”.
ГЛАВА 3. РЕЗУЛЬТАТЫ И ОБСУЖДЕНИЕ
3.1. Полиморфизм генов глутатионовых S-трансфераз (GSTT1, GSTM1, GSTP1) и цитохромов Р450 (CYP2E1, CYP2C19) у жителей г. Томска
Для реализации поставленных задач в рамках данного исследования проведен анализ полиморфизма генов биотрансформации ксенобиотиков I и II фазы метаболизма в отношении риска развития БА и ТБ, а также для значимых при заболеваниях качественных и количественных признаков.
В подавляющем большинстве случаев совместное функционирование обеих фаз метаболизма обеспечивает обезвреживание десятков тысяч ксенобиотиков всех химических классов. Предположительно, эта система возникла или эволюционировала в результате адаптации к техногенному загрязнению среды. Однако, учитывая, что загрязнение среды стало серьезным только в конце XX века, а также, что система метаболизма играет важную роль в перекисном окислении липидов и в биотрансформации многих эндогенных веществ, например, холестерина, витамина D, простагландинов и лейкотриенов, желчных кислот, токоферолов, стероидов и т.д. [Waxman, Azaroff, 1992], можно предположить, что ферменты биотрансформации первоначально функционировали как система метаболизма эндогенных веществ, а с изменяющимися условиями окружающей среды стали участвовать в метаболизме ксенобиотиков вследствие их широкой субстратной специфичности.
Одной из важных особенностей ферментативной системы метаболизма являются достаточно выраженные этнические различия. Это один из фактов, который необходимо учитывать при анализе связи полиморфизма генов с развитием заболевания, так как восприимчивость к патологии индивида одной популяции, определяющаяся сочетанием, как правило, распространенных вариантов генов, значительно различается с таковой в других популяционных группах. Поэтому, прежде чем анализировать данные гены в отношении риска возникновения болезни, следует рассмотреть популяционные особенности исследуемой группы здоровых индивидов г. Томска по данным локусам.
В ходе выполнения работы было исследовано 6 полиморфных вариантов генов цитохромов Р450 - CYP2C19 (681G>A) и CYP2E1 (7632T>A; 1293G>C) и глутатионовых S-трансфераз – GSTT1 (делеция), GSTM1 (делеция) и GSTP1 (313A>G).
Для изученных полиморфных вариантов генов GSTP1 (313A>G) и цитохромов Р450 - CYP2E1 (7632T>A; 1293G>C), CYP2C19 (681G>A) в контрольной выборке распределение генотипов соответствовало ожидаемым при равновесии Харди-Вайнберга (табл. 6). Для полиморфизма 313А>G гена GSTP1 отмечена незначительная гетерогенность между наблюдаемыми и ожидаемыми значениями генотипов за счет недостатка гетерозигот.
Осуществить проверку распределения генотипов по генам GSTT1 и GSTM1 на соответствие ожидаемым при равновесии Харди-Вайнберга невозможно, поскольку не устанавливалось гетерозиготного носительства.
Частоты встречаемости аллелей и генотипов изучаемых локусов в исследованной выборке здоровых жителей г. Томска оказались близки к значениям таковых в других европеоидных популяциях (рис. 2; табл. 6, 7). У жителей г. Томска частота «нулевого» генотипа для генов GSTT1 и GSTM1 составила 23,7% (n=32) и 54,8% (n=74), соответственно. Сходная ситуация описана для GSTT1 и GSTM1 описана для жителей г. Новосибирска [Ляхович и др., 2000; Вавилин и др., 2002]. Полученные частоты как для генов GSTT1 и GSTM1, так и для остальных полиморфных вариантов генов системы метаболизма, изучаемых в настоящей работе близки к значениям таковых в других европеоидных популяциях.
Таблица 6
Распределение генотипов по маркерам генов ферментов метаболизма ксенобиотиков у здоровых индивидов г. Томска
| Ген |
Полимор- физм |
Генотип | N.O. | N.E. | Частота аллеля |
c2 (d.f.=1) |
hobs hexp |
D |
| GSTP1 | 313A>G |
AA AG GG |
58 45 16 |
54,46 52,09 12,46 |
G=32,4 |
1,97 |
0,3782 0,4377 |
-0,136 |
| CYP2C19 | 681G>A |
*1/*1 *1/*2 *2/*2 |
90 26 0 |
91,46 23,09 1,46 |
CYP2C19*2=11,2 |
1,32 |
0,2241 0,1990 |
-0,126 |
| CYP2E1 | 7632T>A |
ТТ ТА АА |
106 20 2 |
105,13 21,75 1,13 |
A=9,4 | 0,45 |
0,1562 0,1699 |
-0,081 |
| CYP2E1 | 1293G>C |
C1C1 C1C2 C2C2 |
113 9 0 |
113,17 8,67 0,17 |
C2=3,7 | 0,04 |
0,0738 0,0710 |
-0,038 |
Примечание. N.O. и N.E. – наблюдаемая и ожидаемая численность генотипов; критерий c2 использован для оценки соответствия наблюдаемого распределения генотипов ожидаемому при равновесии Харди-Вайнберга; d.f. – число степеней свободы; hobs и hexp – наблюдаемая и ожидаемая гетерозиготность, соответственно; D –относительное отклонение наблюдаемой гетерозиготности от ожидаемой.
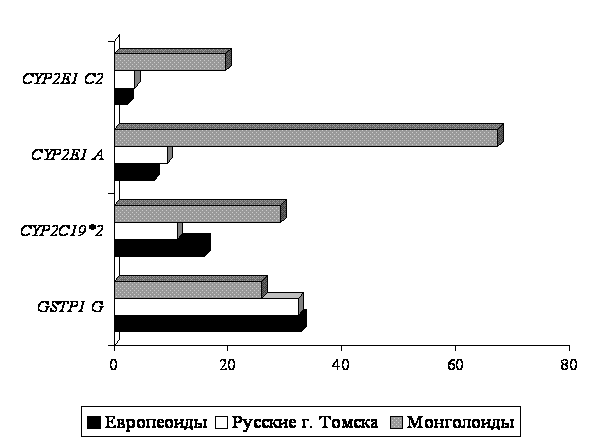
Рис. 2. Частоты аллелей полиморфных вариантов генов GSTP1, CYP2E1 и CYP2C19 у жителей г. Томска (собственные данные) и в различных этнических группах (по: Brockmoller et al., 1996; Morita et al., 1997; Farker et al., 1998; Lin et al., 1998; Ishii et al., 1999; Miller et al., 2002; Yang et al., 2004).
Таблица 7
Частоты «нулевых» генотипов генов глутатионовых S-трансфераз в некоторых этнических группах
| Ген | Этническая принадлежность | Частота «нулевого» генотипа, % | Литературный источник |
| GSTT1 | Европеоиды США, n=152 | 17,1 | Crump et al., 2000 |
| Корейцы, n=220 | 45,9 | Kim et al., 2000 | |
| GSTM1 | Европеоиды CША, n=927 | 54,0 | Miller et al., 2002 |
| Корейцы, n=220 | 44,1 | Kim et al., 2000 |
Учитывая функциональную значимость системы метаболизма ксенобиотиков, многие работы по изучению полиморфизма генов соответствующих ферментов в первую очередь направлены на изучение эффективности лекарственной терапии различных заболеваний и связанными с ней проявлениями побочных эффектов. Другим аспектом интереса к этой системе является то, что в некоторых случаях можно оценить вклад в развитие заболевания полиморфизмов генов, отвечающих за взаимодействие организма человека с факторами окружающей среды. Кроме того, ферменты системы биотрансформации ксенобиотиков активно задействованы в метаболизме различных эндогенных веществ, в том числе и медиаторов воспаления. Поэтому можно предполагать, что наличие генетически обусловленных индивидуальных особенностей функционирования этой системы способствует развитию патологий. Глутатионовым S-трансферазам и цитохромам Р450 придают важное значение в формировании подверженности к заболеваниям, триггерами которых выступают неблагоприятные факторы внешней среды, например, онкологическая патология, инфекционные и аллергические заболевания и др. Из исследуемых генов наиболее изученными в отношении БА и ТБ являются гены глутатионовых S-трансфераз, причем касательно ТБ работы направлены в основном на изучение гепатотоксичности от применяемых для лечения заболевания препаратов, а не на поиск участия генов в развитии и патогенезе болезни.
В целом, результаты анализа частот аллелей и генотипов генов GSTT1, GSTM1, GSTP1, CYP2E1 и CYP2C19 у жителей г. Томска показывают значения близкие для европеоидных популяций, что закономерно, так как этническая принадлежность была одним из основных критериев отбора для исследования.
3.2. Оценка роли полиморфизма генов ферментов метаболизма ксенобиотиков в развитии бронхиальной астмы и туберкулеза
3.2.1. Ассоциация полиморфных вариантов генов GSTT1, GSTM1, GSTP1, CYP2E1 и CYP2C19 с атопической бронхиальной астмой
Интерес исследователей к изучению полиморфизма генов ферментов биотрансформации ксенобиотиков при БА, отвечающих за взаимодействие организма с факторами окружающей среды, вызван экологической обусловленностью заболевания. Показано, что «нулевые» генотипы генов GSTT1 и GSTM1 как в отдельности, так и в комбинации друг с другом являются факторами генетической предрасположенности к БА [Иващенко и др., 2001]. Кроме того, выявлена связь клинических особенностей течения заболевания с полиморфизмом генов GSTT1, GSTM1, CYP1A1 и NAT2 и показана модифицирующая роль курения на развитие БА [Ляхович и др., 2000, 2002]. Отмечены связь фенотипических проявлений БА (положительные кожные тесты, высокий уровень общего IgE) с полиморфизмом 313A>G гена GSTP1 ферментативной системы биотрансформации [Fryer et al., 2000] и различия в его функциональной значимости для БА атопического и неатопического генеза [Tamer et al, 2004]. При исследовании связи полиморфизма 313A>G гена GSTP1 с астмой, вызванной воздействием толуол диизоцианата установлено, что частота гомозиготного генотипа G/G этого гена снижена у индивидов с астмой, а также понижена у лиц, имеющих размах гиперреактивности бронхов от умеренной до критической по сравнению с индивидами, показывающими нормальную и низкую активность таковой по результатам диагностического теста с метахолином [Cristina et al., 2002]. Кроме того, показано, что материнское наследование G/G и A/A генотипов полиморфизма 313A>G гена GSTP1 может влиять на последующее развитие астмы и формирование особенностей ее клинического фенотипа у детей [Carroll et al., 2005].
Таблица 8
Распределение генотипов исследуемых генов ферментов биотрансформации у больных бронхиальной астмой и здоровых
| Генотип | БА | Контрольная группа | р | ||
| n | % | n | % | ||
| GSTT1 | |||||
| GSTT1+ | 99 | 75,6 | 103 | 76,3 | 1,000 |
| GSTT1 0/0 | 32 | 24,4 | 32 | 23,7 | |
| GSTM1 | |||||
| GSTM1+ | 38 | 29,0 | 61 | 45,2 | 0,008 |
| GSTM1 0/0 | 93 | 71,0 | 74 | 54,8 | |
| GSTP1 313A>G | |||||
| AA | 55 | 48,7 | 58 | 48,7 | 0,648 |
| AG | 47 | 41,6 | 45 | 37,8 | |
| GG | 11 | 9,7 | 16 | 13,5 | |
| CYP2E1 7632T>A | |||||
| TT | 88 | 72,1 | 106 | 82,8 | 0,049 |
| TA | 33 | 27,1 | 20 | 15,6 | |
| AA | 1 | 0,8 | 2 | 1,6 | |
| CYP2E1 1293G>C | |||||
| C1C1 | 106 | 89,8 | 113 | 92,6 | 0,498 |
| C1C2 | 12 | 10,2 | 9 | 7,4 | |
| C2C2 | 0 | 0,0 | 0 | 0,0 | |
| CYP2C19 681G>A | |||||
| *1/*1 | 91 | 66,4 | 90 | 77,6 | 0,068 |
| *1/*2 | 44 | 32,1 | 26 | 22,4 | |
| *2/*2 | 2 | 1,5 | 0 | 0,0 | |
Примечание. n – абсолютное значение; р – достигнутый уровень значимости по точному тесту Фишера.
По локусам GSTT1, GSTP1 и CYP2E1 (1293G>C) существенных различий между выборкой больных БА и контрольной группой не обнаружено (табл. 8). Для гена GSTM1 показано, что частота функционального генотипа встречалась у больных значимо реже (р=0,008). Это позволяет говорить о том, что для носителей делеции гена GSTM1, повлекшей за собой утрату активности соответствующего фермента, существует вероятность дисбаланса процессов детоксикации экзогенных и эндогенных веществ, что повышает для них риск развития заболевания. Об этом свидетельствует и тот факт, что носители делеционного генотипа показывают в два раза выше риск развития БА по сравнению с индивидами, имеющими функциональный генотип (OR=2,02; 95% CI: 1,18-3,46; p=0,009). Эта ассоциация может быть следствием множественности биологических функций глутатионовых S-трансфераз: участие в метаболизме эндогенных медиаторов воспаления (простагландинов, лейкотриена С4), нейромедиаторов. В настоящее время ведется дискуссия по поводу взаимосвязи ферментов метаболизма с регуляторным цитокиновым звеном. Предполагается, что образующиеся реактивные метаболиты в ходе реакций I фазы биотрансформации ксенобиотиков и их дальнейшее ковалентное связывание с макромолекулами клетки может привести к образованию аутоантигенов, вызывающих клеточный или гуморальный иммунный ответ [Ляхович и др., 2000]. Учитывая важную роль глутатионовых S-трансфераз в метаболизме эндогенных и экзогенных соединений, можно предполагать, что образующиеся реактивные метаболиты (даже при условии повышенного их образования в силу полноценной работы ферментов I фазы) у индивидов с функциональными генотипами GST, эффективно утилизируются, и, таким образом, не способствуют развертыванию воспалительных реакций и утяжелению уже начавшегося воспалительного процесса.
Исследование полиморфизма 7632T>A гена CYP2E1 показало, что гетерозиготный генотип T/A чаще встречался в группе больных БА (c2=4,22, р=0,049). Оценка OR показала, что гетерозиготные носители имеют повышенный риск развития заболевания по сравнению с контрольной группой (OR=2,0; 95% CI: 1,03-3,91; p=0,040). Данное обстоятельство является несколько неожиданным, поскольку предполагается, что для гетерозигот характерна более благоприятная активность соответствующего фермента для поддержания состояния здоровья, а не низкая или высокая у гомозигот, так как известно, что с аллелем 7632А часто ассоциированы редкие мутации, влияющие на каталитическую активность соответствующего белка [Hu et al., 1997].
При сравнении распределения частот генотипов полиморфизма 681G>A гена CYP2C19 фермента I фазы метаболизма показана гетерогенность между группами больных БА и здоровыми за счет тенденции к повышению частот гетерозигот *1/*2 у пробандов c БА (c2=3,32, р=0,068). При анализе частот аллелей этого локуса отмечена тенденция к преобладанию аллеля CYP2C19*2 у больных (c2=3,52, р=0,061) по сравнению со здоровыми.
Таблица 9
Распределение индивидов разного пола по группам, характеризующим степень тяжести бронхиальной астмы
| Группы сравнения | Легкая БА | Среднетяжелая БА | Тяжелая БА | |||
| n | % | n | % | n | % | |
| Мужчины | 14 | 56,0 | 32 | 60,4 | 19 | 36,5 |
| Женщины | 11 | 44,0 | 21 | 39,6 | 33 | 63,5 |
Примечание. n – абсолютное значение индивидов в группе.
Учитывая, что БА имеет довольно сложный клинический фенотип, проявляющийся от повышенной чувствительности бронхов до летальных форм, проследить участие генов системы биотрансформации в патогенезе возможно только при тщательном анализе особенностей сформировавшегося клинического фенотипа БА. Поэтому