Сравнительный анализ структуры наследственной компоненты подверженности к бронхиальной астме и туберкулезу по генам ферментов метаболизма ксенобиотиков
Учитывая, что патогенные свойства M. tuberculosis в условиях развивающегося специфического процесса в легких непосредственно сказываются на особенностях реагирования системы крови, для больных ТБ были проанализированы параметры общего анализа крови: уровень гемоглобина, количество эритроцитов, лейкоцитов, скорость оседания эритроцитов (СОЭ); а также параметры биохимического анализа крови: количество билирубина (прямой и обратный), аланинаминотрансферазы (АЛТ) до начала лечения и через два месяца после лечения.
Воздействие инфекционного агента вызывает развитие комплекса изменений как специального, так и стрессового характера. Последние оказывают непосредственное влияние на формирование основного патологического процесса, в то же время специфика развивающегося туберкулезного процесса определяет особенности реакций общего адаптационного синдрома.
Для полиморфных вариантов генов глутатионовых S-трансфераз не показано связи с изменчивостью количественных показателей периферической крови (табл. 18). Однако получена ассоциация полиморфизма 681G>A гена CYP2C19 фермента I-й фазы метаболизма ксенобиотиков у мужчин: аллель CYP2C19*2 связан с низким уровнем эритроцитов (р=0,027) (табл. 19), для них также отмечена тенденция к снижению уровня гемоглобина (р=0,065). Для женщин таких различий не показано (р>0,05). Известно, что при ТБ имеет место снижение количества эритроцитов как за счет их ускоренного разрушения в периферической крови под влиянием токсических фракций M. tuberculosis, так и вследствие нарушения эритропоэза в результате туберкулезной интоксикации [Глебович, 1951; Милосердова, 1958; Шмелев, 1959; Радзинский, 1961; Кан, 1972].
Таблица 18
Средние значения (±S.E.) количественных параметров крови больных туберкулезом носителей разных генотипов полиморфизмов генов глутатионовых S-трансфераз
| Группа сравнения | Генотип |
Гемоглобин (г/л) |
Эритроциты (х1012/л) |
Лейкоциты (х109/л) |
СОЭ (мм/ч) |
| 1 | 2 | 3 | 4 | 5 | 6 |
| GSTT1 | |||||
| Мужчины | GSTT1 + |
130,01±1,78 n=115 |
4,17±0,06 n=112 |
8,23±0,33 n=116 |
25,14±1,76 n=115 |
| GSTT1 0/0 |
135,35±2,43 n=26 |
4,29±0,10 n=25 |
8,01±0,50 n=28 |
25,59±3,36 n=28 |
|
| p | 0,251* | 0,353* | 0,892* | 0,486* | |
| Женщины | GSTT1 + |
119,14±1,04 n=69 |
3,90±0,06 n=65 |
7,06±0,36 n=69 |
25,41±2,26 n=67 |
| GSTT1 0/0 |
121,82±1,99 n=13 |
3,72±0,14 n=12 |
7,04±0,51 n=13 |
23,94±6,96 n=12 |
|
| p | 0,613** | 0,322* | 0,489* | 0,739* | |
| GSTM1 | |||||
Мужчины |
GSTM1 + |
129,26±2,42 n=51 |
4,10±0,09 n=49 |
8,56±0,45 n=53 |
27,50±2,61 n=52 |
| GSTM1 0/0 |
131,98±1,96 n=90 |
4,25±0,06 n=88 |
7,96±0,36 n=91 |
23,00±1,92 n=91 |
|
| p | 0,263* | 0,091* | 0,158* | 0,205* | |
| Женщины | GSTM1 + |
120,66±3,32 n=29 |
3,94±0,10 n=27 |
6,93±0,56 n=29 |
26,27±3,74 n=28 |
| GSTM1 0/0 |
118,97±2,36 n=53 |
3,83±0,06 n=50 |
7,12±0,39 n=53 |
24,58±2,69 n=51 |
|
| p | 0,676** | 0,393* | 0,491* | 0,656* | |
| GSTP1 313A>G | |||||
| Мужчины | AA |
132,72±2,07 n=76 |
4,23±0,07 n=76 |
8,48±0,39 n=79 |
24,51±1,92 n=79 |
| AG+GG |
128,85±2,33 n=62 |
4,14±0,07 n=62 |
7,91±0,42 n=62 |
24,56±2,66 n=61 |
|
| p | 0,201* | 0,309* | 0,521* | 0,871* | |
| Женщины | AA |
119,88±2,81 n=34 |
3,97±0,07 n=31 |
7,35±0,56 n=34 |
24,39±3,89 n=33 |
| AG+GG |
119,69±2,65 n=47 |
3,80±0,08 n=45 |
6,85±0,38 n=47 |
25,94±3,00 n=47 |
|
| р | 0,512* | 0,207* | 0,670* | 0,461* | |
Примечание. В скобках указаны единицы измерения; n – объемы выборок;
*- достигнутый уровень значимости теста Манна-Уитни; ** - уровень значимости для однофакторного дисперсионного анализа.
Таблица 19
Средние значения (±S.E.) количественных параметров крови у больных туберкулезом носителей разных генотипов полиморфных вариантов генов цитохромов Р450
| Группа сравнения | Генотип |
Гемоглобин (г/л) |
Эритроциты (х1012/л) |
Лейкоциты (х109/л) |
СОЭ (мм/ч) |
| 1 | 2 | 3 | 4 | 5 | 6 |
| CYP2E1 7632T>A | |||||
| Мужчины | ТТ |
132,11±1,80 n=105 |
4,24±0,06 n=103 |
7,98±0,32 n=108 |
24,19±1,80 n=107 |
| ТА+АА |
127,94±2,98 n=34 |
4,05±0,08 n=32 |
8,99±0,57 n=34 |
25,75±3,25 n=34 |
|
| p | 0,204* | 0,212* | 0,091* | 0,686* | |
| Женщины | ТТ |
120,07±2,20 n=67 |
3,88±0,06 n=62 |
7,06±0,36 n=67 |
26,31±2,46 n=65 |
| ТА+АА |
116,84±3,95 n=14 |
3,81±0,11 n=14 |
7,243±0,638 n=14 |
20,31±4,65 n=13 |
|
| p | 0,532** | 0,707* | 0,549* | 0,283* | |
| CYP2E1 1293G>C | |||||
| Мужчины | C1C1 |
131,29±1,62 n=122 |
4,21±0,05 n=119 |
7,93±0,28 n=125 |
25,28±1,68 n=124 |
| C1C2 |
129,11±4,50 n=19 |
4,10±0,15 n=18 |
9,84±1,04 n=19 |
20,46±3,90 n=19 |
|
| p | 0,925 | 0,669 | 0,060 | 0,215 | |
| Женщины | C1C1 |
119,42±1,96 n=80 |
3,87±0,05 n=75 |
7,04±0,32 n=80 |
25,92±2,20 n=77 |
| C1C2 |
119,00±5,20 n=3 |
0,23±0,13 n=3 |
6,83±1,24 n=3 |
14,09±11,68 n=3 |
|
| p | 0,968** | 0,845* | 0,855* | 0,219* | |
| CYP2C19 681G>A | |||||
| Мужчины | *1/*1 |
133,09±1,68 n=102 |
4,27±0,06 n=99 |
8,45±0,34 n=104 |
23,85±1,75 n=104 |
|
*1/*2+ *2/*2 |
124,81±3,40 n=36 |
3,96±0,08 n=35 |
7,60±0,52 n=37 |
26,66±3,52 n=36 |
|
| p | 0,065* | 0,027* | 0,195* | 0,477* | |
| Женщины | *1/*1 |
121,04±2,17 n=57 |
3,90±0,06 n=53 |
7,20±0,35 n=57 |
25,37±2,90 n=57 |
|
*1/*2+ *2/*2 |
115,89±3,98 n=24 |
3,78±0,10 n=23 |
6,83±0,69 n=24 |
25,57±4,04 n=23 |
|
| р | 0,469** | 0,469* | 0,341* | 0,795* |
Примечание. В скобках указаны единицы измерения; n – объемы выборок;
*- достигнутый уровень значимости теста Манна-Уитни; ** - уровень значимости для однофакторного дисперсионного анализа.
Данные об экспрессии гена CYP2C19 в костном мозге, позволяют предполагать, что наличие аллеля CYP2C19*2 приводит к снижению функции соответствующего фермента, поэтому у индивидов, носителей мутантного аллеля течение ТБ может сопровождаться разрушающим действием токсинов M. tuberculosis на клетки костного мозга, что приводит к неэффективному эритропоэзу. Подобное предположение о связи делеционного полиморфизма гена GSTT1, сопровождающимся отсутствием соответствующего фермента II-й фазы биотрансформации ксенобиотиков, с неспособностью метаболизировать токсичные для гемопоэтических клеток субстраты, нашло свое подтверждение в исследовании о развитии приобретенной апластической анемии у детей [Dirksen et al., 2004].
Анализ остальных параметров периферической крови: лейкоцитов и скорости оседания эритроцитов не показал влияния исследуемых в работе полиморфизмов генов ФМК на изменчивость вышеперечисленных показателей как для мужчин, так и для женщин. Однако отмечена тенденция к повышению уровня лейкоцитов у носителей гетерозиготных генотипов полиморфных вариантов генов CYP2E1 7632T>A и CYP2E1 1293G>C среди мужчин (р=0,091, р=0,060 соответственно). Учитывая низкую частоту аллелей этих полиморфных вариантов, можно предположить, что статистическая мощность исследованной выборки оказалась недостаточной, чтобы установить значимую связь в отношении изменения уровня лейкоцитов крови.
Метаболизм лекарственных препаратов и эффекты их дальнейшего пребывания в организме в большей степени зависят от генетического полиморфизма ферментов системы биотрансформации. На сегодня известно, что человек имеет 59 активных генов семейства цитохрома Р450, и 6 из них кодируют важные для лекарственного метаболизма ферменты [Ingelman-Sundberg, 2004]. Как отмечалось ранее, для ферментов биотрансформации характерна способность к метаболизму большого количества субстратов по причине того, что ферменты I-й и II-й фаз биотрансформации перекрываются в своей субстратной специфичности. Однако для многих форм Р450 выделены специфические лекарства, используемые для фармакокинетических оценок. Для исследуемых в настоящей работе цитохромов Р450 и глутатионовых S-трансфераз селективные субстраты представлены в табл. 20.
Основным органом, участвующим в метаболизме лекарств, является печень, где обозначены самые высокие концентрации ферментов метаболизма по сравнению с другими органами и наибольшее разнообразие экспрессируемых форм [Райс, Гуляева, 2000]. Полиморфизм генов метаболизма ксенобиотиков в настоящее время активно изучается в отношении индивидуальной чувствительности к лекарственной терапии и, особенно в проявлении многообразных побочных реакций, связанных с лечением.
Таблица 20
Специфичные субстраты для ферментов системы метаболизма
| Фермент | Специфичный субстрат | Литературный источник |
| CYP2E1 | Хлорзоксазон | Kharasch et al., 1993 |
| CYP2C19 | S-мефенитоин | De Morais et al., 1994 |
| GSTT1 | Трансстильбеноксид | Hallier et al., 1993 |
| GSTM1 | Хлористый метилен и хлористый метил | Seidegard et al., 1988 |
| GSTP1 | Этакриновая кислота и бензпирендиолэпоксид | Awasthi et al., 1993 |
Показано, что при биотрансформации новокаинамид превращается в метаболит, который может вызвать у медленных ацетиляторов картину болезни, похожую на красную волчанку, а сульфазалин у этих людей может вызвать лейкопению, гепатотоксичность и нейропатии. Эффективность терапии ТБ зависит как от индивидуальных способностей индивида в метаболизме лекарств, так и от взаимоотношения антимикобактериальных препаратов с системой цитохромов Р450 непосредственно самой микобактерии ТБ. Обнаружено, что геном M. tuberculosis содержит гены, кодирующие 20 различных цитохромов Р450, в том числе ферментов, являющихся мишенью действия для противогрибковых препаратов. Кроме того, опубликованные данные об угнетении метаболизирующей функции печени за счет снижения содержания цитохромов Р450 в этом органе при бактериальной и вирусной инфекции через цитокин-опосредованные механизмы, позволяют предполагать изменение фармакодинамики, а соответственно токсичности лекарственных препаратов [Prandota, 2002].
Во всех странах получило признание комбинированное применение химиопрепаратов, позволяющее добиться бактерицидного эффекта и предотвратить развитие лекарственной устойчивости в процессе лечения. Принцип комбинированного применения нескольких химиопрепаратов известен давно, еще в 1955 г. он был внедрен в практику химиотерапии как метод предупреждения лекарственной устойчивости M. tuberculosis. Актуальность лекарственных поражений печени во фтизиатрии обусловлена необходимостью полихимиотерапии туберкулеза, что создает высокую медикаментозную нагрузку на больного, и в большей степени ее испытывает печень, осуществляя метаболизм туберкулостатиков и патогенетических средств. Противотуберкулезные препараты изониазид, рифампицин, пиразинамид обладают значительной гепатотоксичностью (особенно этот эффект выражен при их комбинации), этамбутол, микобутин и другие – в меньшей степени. Лекарственные гепатиты у больных туберкулезом относят к категории преимущественно токсических побочных реакций химиотерапии.
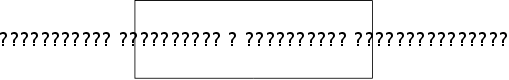
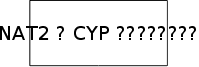
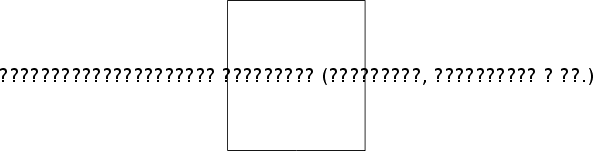
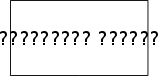




Рис. 6. Взаимодействие между лекарственными препаратами и ферментативной системой метаболизма ксенобиотиков, приводящее к лекарственно-индуцированному гепатиту (по: Roy et al., 2001).
Частым осложнением при лечении ТБ легких производными гидразина изоникотиновой кислоты, например, изониазидом, являются гепатотоксические реакции. Известно, что чаще они возникают у лиц, быстро инактивирующих изониазид, поскольку у них высвобождается значительно больше гидразина, в частности, ацетилгидразина, который может вызывать дистрофические поражения печени (рис. 6).
Аланинаминотрансфераза (АЛТ) — фермент, катализирующий трансаминирование, присутствует во многих тканях организма, в частности, в печени. В гепатоцитах он локализуется главным образом в цитозольной фракции.
Высвобождение АЛТ в кровь происходит при нарушениях внутренней структуры гепатоцитов и повышении проницаемости клеточных мембран, что свойственно как острому вирусному гепатиту, так и рецидивам хронического гепатита. В этой связи АЛТ считается индикаторным ферментом, и к его определению прибегают постоянно при постановке диагноза гепатитов любой природы.
Установлено статистически значимое увеличение уровней АЛТ (р=0,001) и билирубина (р=0,05) после двух месяцев применения антимикобактериальных препаратов (табл. 21). Значение АЛТ не показало корреляции с возрастом и полом (r=-0,161 и r=-0,152, соответственно, р>0,05). Выявлена ассоциация полиморфного варианта 313A>G гена глутатионовой S-трансферазы p1 (GSTP1) с увеличением активности АЛТ после лечения противотуберкулезными препаратами в течение двух месяцев (р=0,021) (табл. 22).
Поскольку метаболизм изониазида и рифампицина приводит к образованию более токсичных метаболитов, то одной из возможных причин полученного различия может быть прямая связь между генотипом индивида и изменением уровня активности показателя печеночной функции. Такой факт закономерен, так как известно, что глутатионовые S-трансферазы играют значительную роль в метаболизме противотуберкулезных препаратов, таких как изониазид и рифампицин [Sodhi et al. 1996; Sodhi et al., 1997].
Таблица 21
Изменения уровней аланинаминотрансферазы и билирубина до и после двух месяцев лечения
| Значение уровня аланинаминотрансферазы (ммоль/(ч.л)) |
Значение уровня билирубина (мкмоль/л) |
||
|
До начала лечения |
После 2-х месяцев лечения |
До начала лечения |
После 2-х месяцев лечения |
| 0,03-1,55 | 0,03-1,83 | 4,5-102,0 | 5,0-342,0 |
| 0,001 | 0,050 | ||
Примечание. В скобках указаны единицы измерения; р – достигнутый уровень значимости для теста Уилкоксона.
В доступных источниках литературы показано, что рифампицин индуцирует экспрессию глутатионовых S-трансфераз, а изониазид-индуцированные повреждения печеночных клеток у модельных животных показывают связь с истощением содержащегося в печени глутатиона, и соответственно, с пониженной активностью GST. Эти эффекты максимальны, когда применяются два препарата совместно [Steele et al., 1991].
Полученные результаты представляют интерес в связи с тем, что последнее время появляются данные о развитии гепатотоксичности во время применения антимикобактериальных препаратов у лиц с определенным генотипом по генам ФМК. Так, показана связь «нулевого» генотипа гена GSTM1 с лекарственно-индуцированной гепатотоксичностью в Индии [Roy et al., 2001]. Исследования у 318 пациентов при лечении ТБ в Тайвани показали ассоциации полиморфизма СYP2E1 (Rsa I) с токсическим поражением печени [Huang et al., 2003].
Таблица 22
Средние уровни аланинаминотрансферазы и билирубина после двух месяцев лечения у носителей разных генотипов по генам глутатионовых S-трансфераз и цитохромов Р450 больных туберкулезом
|
Ген полиморфизм |
Генотип (n) | АЛТ±S.E. | р | Билирубин±S.E. | р |
|
GSTT1 del |
GSTT1 + (92) | 0,27±0,03 | 0,383* | 15,53±3,91 | 0,682* |
| GSTT1 0/0 (27) | 0,22±0,04 | 9,40±0,99 | |||
|
GSTM1 del |
GSTM1 + (51) | 0,20±0,02 | 0,149* | 10,81±1,89 | 0,557* |
| GSTM1 0/0 (68) | 0,29±0,04 | 16,63±5,12 | |||
|
GSTP1 313A>G |
AA (61) | 0,29±0,04 | 0,021** | 16,87±5,66 | 0,604** |
| AG (49) | 0,20±0,03 | 10,98±1,95 | |||
| GG (8) | 0,32±0,05 | 13,69±6,39 | |||
| CYP2C19 681G>A | *1/*1 (86) | 0,26±0,03 | 0,580* | 15,37±4,16 | 0,543* |
| *1/*2+ *2/*2 (32) | 0,22±0,02 | 10,74±1,62 | |||
| CYP2E1 7632T>A | TT (90) | 0,27±0,03 | 0,706* | 15,52±4,01 | 0,198* |
| TA+AA (29) | 0,21±0,03 | 9,84±0,68 | |||
| CYP2E1 1293G>C | C1C1 (106) | 0,26±0,03 | 0,976* | 14,66±3,41 | 0,603* |
| C1C2+C2C2 (13) | 0,22±0,04 | 9,85±1,18 |
Примечание. АЛТ±S.E.– средние значения уровня аланинаминотрансферазы со стандартной ошибкой; билирубин±S.E. – средние значения уровня билирубина со стандартной ошибкой; n – объем выборки; * - достигнутый уровень значимости по тесту Манна-Уитни; ** - достигнутый уровень значимости по тесту Краскела-Уоллиса.
Отмечена ассоциация статуса медленного ацетилятора NAT2 и гепатита, вызванного применением антимикобактериальных препаратов [Huang et al., 2002]. Данные проведенного исследования у жителей г. Томска предполагают участие полиморфного варианта гена GSTP1 (313A>G) в изменчивости уровня показателя печеночной функции при лечении ТБ антимикобактериальными препаратами.
Таким образом, в большинстве случаев для исследуемых количественных признаков наблюдали статистически значимые отклонения распределения от нормального (по данным теста Шапиро-Уилки). С учетом этого сравнение проводили с помощью непараметрических критериев Манна-Уитни, Краскела-Уоллиса и медианного теста. При анализе «количественного фенотипа» больных БА с распределением полиморфных вариантов генов системы метаболизма отмечено: тенденция к снижению уровня метахолина, вызывающего бронхоспазм для гомозиготных носителей аллеля 313G гена GSTP1, значимое повышение уровня IgE у носителей генотипа *1/*1 гена CYP2C19, связь делеционного полимофизма гена GSTM1 с изменчивостью показателя FVC, а также близкая к статистической значимости значения FEV1 и PEF c полиморфизмом генов глутатионовых S-трансфераз GSTM1 и GSTT1.
Оценка «количественного фенотипа» ТБ показала связь гена фермента I-ой фазы метаболизма CYP2C19 (полиморфизм 681G>A) с изменчивостью уровня эритроцитов. Анализ изменчивости показателей печеночной функции показал значимые различия в уровне АЛТ и билирубина до и после двух месяцев лечения антимикобактериальными препаратами. В ходе анализа выявлена ассоциация полиморфного варианта 313A>G гена глутатионовой S-трансферазы p1 (GSTP1) c увеличением уровня АЛТ.
ЗАКЛЮЧЕНИЕ
Ферментативная система метаболизма ксенобиотиков является практически универсальным механизмом, поддерживающим внутренний баланс и способствующим сохранности здоровья организма человека. Существовавшая изначально для метаболизма эндогенных субстратов, система эволюционировала, адаптируясь к техногенному загрязнению окружающей среды. В её функционировании задействованы уникальные по своим свойствам ферменты: гемопротеид – цитохром Р450, низкомолекулярный трипептид - глутатион и др. С помощью целых семейств этих ферментов с одинаковой каталитической активностью и различной субстратной специфичностью метаболизируются сотни самых разных по химическому составу соединений. Одним из важнейших свойств системы метаболизма является индукция – активация транскрипции гена в присутствии субстрата. Тканеспецифичная экспрессия различных изоформ метаболизма определяет ее адаптацию к структурно-функциональной организации той или иной системы организма. Наибольшая экспрессия ферментов в печени обеспечивает наиболее активное участие этого органа в метаболизме ксенобиотиков. В совокупности все ферменты, участвующие в деградации молекул ксенобиотиков, функционируют как единый, четко скоординированный комплекс. Поэтому отклонение их функции неизменно приводит к вредным для организма человека последствиям. Это обстоятельство подтверждают многочисленные исследования о функционировании системы метаболизма при различных воздействиях окружающей среды и патологических состояниях [Lin et al., 1998; Иващенко и др., 2000; Ляхович и др., 2000, 2002; Delfino et al., 2000; Вавилин и др., 2002; Rollinson et al., 2003; Бикмаева и др., 2004].
Согласно современным представлениям БА и ТБ относятся к группе дистропных болезней. Однако многочисленные проведенные исследования поиска генетической компоненты подверженности к этим заболеваниям показали ряд «общих» генов, белковые продукты которых задействованы на всех этапах патогенеза. С этой точки зрения целесообразным и перспективным представлялся сравнительный анализ полиморфных вариантов генов системы метаболизма ксенобиотиков, поскольку кодируемые ими ферменты задействованы в деградации эндогенных субстратов, а именно многочисленных медиаторов воспаления (простагландинов, лейкотриенов и т. д.), что легло в основу настоящего исследования.
Ряд работ показал связь генов ферментов метаболизма ксенобиотиков с развитием БА и её клиническими проявлениями в различных популяциях [Luszawaka-Kutrzela, 1999; Ляхович и др., 2000, 2002; Fryer et al., 2000; Иващенко и др., 2001; Gawronska-Szklarz et al., 2001; Вавилин и др., 2002; Gilliand et al., 2002; Сафронова и др., 2003; Brasch-Andersen et al., 2004; Tamer et al., 2004; Carroll, 2005]. Однако, учитывая значительные этнические различия в полиморфизме генов этой системы, существует противоречивая информация об их значимости для развития заболевания.
При оценке роли полиморфизма генов метаболизма ксенобиотиков для развития БА у жителей г. Томска показана ассоциация полиморфизма генов ферментов как I-й – CYP2E1, так и II фазы – GSTM1 с заболеванием.
Для носителей делеции гена GSTM1, приводящей к утрате активности соответствующего фермента, существует возможность дисбаланса процессов детоксикации экзогенных и эндогенных веществ, что повышает для них в два раза риск развития заболевания БА по сравнению с индивидами, имеющими функциональный генотип. Следует отметить, что подобные данные были получены во многих исследованиях, как для европеоидных, так и для монголоидных популяций [Вавилин и др., 2002; Ляхович и др., 2000; Zhang et al., 2004]. Можно предполагать, что эта ассоциация является важным следствием множественности биологических функций глутатионовых S-трансфераз и обусловлена их участием в метаболизме эндогенных медиаторов воспаления (простагландинов Н2, E2, F2a, лейкотриена С4). Однако интересно, что в проявлении тяжести заболевания не отмечена значимость этого гена, а у пациентов с легкой степенью тяжести преобладал делеционный генотип гена GSTT1. Тяжесть БА определяется многими факторами (пол, возраст начала, отягощенная наследственность, предшествующее лечение, сопутствующие аллергические заболевания), и в настоящее время нет четких представлений о формировании клинического полиморфизма заболевания [Огородова и др., 2002]. В данном случае, можно лишь предполагать, что при наличии отчетливо неблагоприятного генотипа, развитие патологического процесса может сдерживаться присутствием в геноме индивида генов, контролирующих выработку белковых структур, которые препятствуют развитию более тяжелой степени течения БА.
В ходе исследования были получены данные о связи ТБ с другими генами системы метаболизма. Так, в отношении инфекционного заболевания показана протективная роль полиморфиза 313A>G гена GSTP1 фермента II-й фазы метаболизма. Эта ассоциация объясняется с позиции высокой экспрессии глутатионовой S-трансферазы π1 в легких, защищающих таким образом человека на пути воздействия на организм токсичных агентов окружающей среды (например, химических соединений, содержащихся в табачном дыме и выхлопных газах), которые можно отнести к факторам, провоцирующим развитие ТБ.
Анализ полиморфизма исследуемых генов в формировании и степени выраженности клинических проявлений ТБ показал, что последствия возможной активации CYP2C19 нарушают оксидантное равновесие при уже развившемся заболевании, а развитие окислительного стресса способствует усилению процессов деструкции в легочной ткани.
Несомненно, единственной причиной развития ТБ является инфицирование организма M. tuberculosis. Однако дальнейшая судьба возбудителя болезни зависит от многих факторов, которые в совокупности определяют полиморфизм клинических форм заболевания. Так, показаны различия между группами больных с ТБ внутригрудных лимфоузлов и инфильтративным ТБ для полиморфизма 313A>G гена GSTP1, играющего роль в подверженности к заболеванию.
В исследованиях дизайна «случай-контроль» особую важность приобретает использование для анализа ассоциаций генетических факторов с заболеванием семейного материала, позволяющего проследить наследование аллелей, связанных с болезнью. В ходе данного исследования показано предпочтительное наследование аллеля 313G гена GSTP1 больными БА потомками от гетерозиготных родителей.
Важная информация о взаимодействии ферментов системы метаболизма двух фаз для оценки их вклада в подверженность к заболеваниям была получена при анализе носителей определенных сочетаний генотипов. Отмечена комбинация генотипов генов ферментов II фазы метаболизма GSTM1 и GSTP1, оказывающая протективную роль как в отношении развития БА, так и ТБ. В большинстве случаев протективная роль комбинаций генотипов в отношении БА показана при сочетании аллелей генов, которые обеспечивают полноценное функционирование соответствующих ферментов системы метаболизма обеих фаз. Выявлена комбинация генотипов полиморфных вариантов генов GSTM1 и CYP2E1, предрасполагающая к развитию БА, но оказывающая протективную роль в отношении ТБ. Среди всех проанализированных комбинаций полиморфных вариантов генов не показано ни одного сочетания, имеющего патогенетическую значимость в развитии ТБ. Полученные данные свидетельствуют, что эффекты комбинаций определенных генотипов генов ФМК различны в развитии БА и ТБ.
Следующим этапом исследования было изучение связи исследуемых полиморфных вариантов генов с количественными лабораторными показателями, характеризующими особенности течения различных по этиологии и патогенезу заболеваний. Учитывая варьирование количественных признаков в зависимости от пола, оценка вклада полиморфизма генов системы биотрансформации ксенобиотиков была проведена отдельно для мужчин и женщин и показала участие генов ферментов как I-й так и II-й фаз метаболизма. Так отмечена связь гена CYP2C19 с изменчивостью IgE у женщин и GSTM1 – с показателем форсированной жизненной емкости легких, которые относятся к важным количественным характеристикам проявлений БА. Оценка гематологических показателей крови у мужчин, больных ТБ выявила связь полиморфизма гена CYP2C19 с изменчивостью уровня эритроцитов в периферической крови. Неодинаковый характер ассоциаций генов ферментов метаболизма с количественными признаками у мужчин и женщин позволяет предположить, что та часть структуры наследственной компоненты предрасположенности к заболеваниям, которая связана с полиморфизмом этих генов, неодинакова у представителей разного пола, что выражается в дифференциальной частоте многих болезней у мужчин и женщин в одной популяции.
Особую ценность для практического здравоохранения приобретают результаты настоящего исследования в свете участия генов ферментов метаболизма ксенобиотиков в формировании гепатотоксичных реакций на противотуберкулезную терапию. Выявленная ассоциация повышения активности аланинаминотрансферазы после лечения антимикобактериальными препаратами с полиморфным вариантом гена GSTP1 в дальнейшем может использоваться для разработки комплекса профилактических мер по предотвращению побочных реакций от химиотерапии ТБ.
В целом, полученные результаты свидетельствуют, что наличие определенных генотипов и их комбинаций генов ферментов метаболизма ксенобиотиков может оказывать существенное влияние на предрасположенность и формирование клинического фенотипа БА и ТБ. Сравнительный анализ участия генов ферментов биотрансформации ксенобиотиков в развитии БА и ТБ позволил раскрыть некоторые генетические аспекты этих дистропных заболеваний. В ходе исследования показана дифференциация генов, задействованных в формировании клинического фенотипа заболеваний: гены GSTM1 и CYP2E1 связаны с БА и ее клиническими проявлениями, а GSTP1 - с развитием ТБ. Из исследуемых полиморфных вариантов генов ферментативной системы биотрансформации отмечен «общий» ген – CYP2C19, ассоциированный с изменчивостью признаков, характеризующих некоторые особенности течения этих двух заболеваний. Одним из предполагаемых функциональных механизмов, лежащих в основе полученных ассоциаций, может быть участие белковых продуктов соответствующих генов в метаболизме эндогенных ксенобиотиков, в том числе многочисленных медиаторов воспалительных реакций. Актуальность продолжения исследований сравнительного характера клинически различных групп заболеваний не вызывает сомнения, поскольку полученные результаты позволяют не только приблизиться к пониманию молекулярно-генетических основ подверженности к ним, но и в дальнейшем открывают перспективы профилактики их развития.
ВЫВОДЫ:
Исследованная выборка русских жителей города Томска по частотам аллелей и генотипов полиморфных вариантов генов цитохромов Р450 - CYP2C19 (681G>A), CYP2E1 (7632T>A; 1293G>C) и глутатионовых S-трансфераз – GSTT1 (делеция), GSTM1 (делеция), GSTP1 (313A>G) соответствует таковым для европеоидных популяций.
Риск развития бронхиальной астмы увеличивают «нулевой» генотип гена GSTM1 и гетерозиготный генотип по полиморфизму 7632T>A гена CYP2E1. Генотип G/G полиморфизма 313A>G гена GSTP1 снижает риск развития туберкулеза (OR=0,43; 95%CI: 0,20-0,91; p=0,026).
«Нулевой» генотип гена GSTT1 (р=0,045) выступает в качестве фактора, определяющего легкое течение бронхиальной астмы. Для полиморфного варианта 313A>G гена GSTP1 установлена ассоциация с инфильтративной формой туберкулеза (р=0,026); гомозиготный генотип *1/*1 полиморфизма 681G>A гена CYP2C19 преобладал у больных с распространенным процессом в легочной ткани (р=0,040).
Аллельные варианты генов ферментов метаболизма ксенобиотиков ассоциированы с «количественными фенотипами» болезней: для больных бронхиальной астмой отмечены связь полиморфизма 681G>A гена CYP2C19 с изменчивостью уровня IgE (р=0,044), делеционного полимофизма гена GSTM1 с изменчивостью форсированной жизненной емкости легких (p=0,021) у женщин; у мужчин, больных туберкулезом полиморфизм гена CYP2C19 связан с некоторыми гематологическими показателями – в частности, с уровнем эритроцитов (р=0,027).
Протективное значение имеет комбинация генотипов GSTM1+ и GSTP1 G/G в развитии бронхиальной астмы (OR=0,10; 95% CI: 0,0-0,76; p=0,018) и туберкулеза (OR=0,37; 95% CI: 0,14-0,98; p=0,045). Подверженность к астме увеличивают комбинации генотипов GSTT1+ и GSTM1 0/0 (OR=1,89; 95% CI: 1,13-3,19; р=0,015) и GSTM1 0/0 и CYP2E1 T/A (OR=3,18; 95% CI: 1,31-7,87; р=0,008), генотипическая комбинация GSTM1 0/0 и CYP2E1 T/A обеспечивает резистентность к туберкулезу (OR=0,15; 95% CI: 0,06-0,42; р=0,000).
У больных туберкулезом легких показано статистически значимое увеличение уровня показателей печеночной функции при применении антимикобактериальных препаратов. Установлена связь полиморфизма 313A>G гена GSTP1 с изменчивостью уровня аланинаминотрансферазы (р=0,021).
Выявлены различия в структуре генетической подверженности к бронхиальной астме и туберкулезу по генам ферментативной системы метаболизма ксенобиотиков: гены GSTM1, CYP2E1 и CYP2C19 связаны с бронхиальной астмой и значимыми для заболевания качественными и количественными признаками, а GSTP1 и CYP2C19 ассоциированы с туберкулезом и клиническими проявлениями инфекционной патологии.
ЛИТЕРАТУРА
Авербах М. М. Иммунология и иммунопатология туберкулеза. — М.: Медицина, 1976. - 311 с.
Аксенович Т.И Статистические методы генетического анализа признаков человека: Учеб. Пособие / Новосиб. гос. ун-т. Новосибирск, 2001. - 128 с.
Афанасьева И.С., Спицин В.А. Наследственный полиморфизм глутатион S-трансферазы печени человека в норме и при алкогольном гепатите // Генетика. – 1990. – Т. 26 (7). – С. 1309-1314.
Баранов В.С., Баранова Е.В., Иващенко Т.Э. и др. Геном человека и гены «предрасположенности». (Введение в предиктивную медицину).- СПб.: Интермедика, 2000.- 272 с.
Бикмаева А.Р., Сибиряк С.В., Хуснутдинова Э.К. Инсерционный полиморфизм гена CYP2E1 у больных инфильтративным туберкулезом легких в популяциях республики Башкортостан // Молекулярная биология. – 2004. – Т. 38. -№ 2. – С. 239-243.
Бикмаева А.Р., Сибиряк С.В., Хуснутдинова Э.К. Инсерционный полиморфизм гена CYP2E1 у больных инфильтративным туберкулезом легких и в популяциях республики Башкортостан // Молекулярная биология. – 2004. – Т. 38. - № 2. – С. 239-243.
Бочков Н.П., Захаров А.Ф., Иванов В.И. Медицинская гентика. – М.: Медицина, 1984. – 366 с.
Вейр Б. Анализ генетических данных: Пер. с англ. – М.: Мир, 1995. – 400 с.
Вавилин В. А., Макарова С. И., Ляхович В, В. и др. Ассоциация полиморфных ферментов биотрансформации ксенобиотиков с предрасположенностью к бронхиальной астме у детей с наследственной отягощенностью и без таковой // Генетика. – 2002. – Т. 38. - № 4. – С. 539-545.
Гинтер Е.К. Популяционная генетика и медицина // Вестник РАМН. – 2001. - № 10. – С. 25-31.
Гланц С. Медико-биологическая статистика. – М.: Практика, 1998. — 459 с.
Глебович О. В. Диагностическая ценность исследования пунктата грудины при туберкулезе легких. - Ленинград., 1951. – 132 с.
Гончарова И. А., Фрейдин М. Б., Дунаева Л. Е., Белобородова Е. В., Белобородова Э. И., Пузырев В. П. Анализ связи полиморфизма Ile50Val гена рецептора интерлейкина-4 (IL4RA) с хроническим вирусным гепатитом // Молеклярная биология. – 2005. – Т. 3. - № 3. – С. 379-384.
Гриппи М.А. Патофизиология легких. – М.: Восточная книжная компания, 1997. – 344 с.
Гусев В.А., Даниловская Е.В. Роль активных форм кислорода в патогенезе пневмокониозов // Вопр. мед. химии. – 1987. - № 5. – С. 9-15.
Животовский Л. А. Интеграция полигенных систем в популяциях. Проблемы анализа комплекса признаков. – М.: Наука, 1984. – 183 с.
Земскова З. С., Дорожкова И. Р. Скрыто протекающая туберкулезная инфекция. – М.: Медицина, 1984. – 224 с.
Иващенко Т. Э., Сиделева О. Г., Петрова М. А. и др. Генетические факторы предрасположенности к бронхиальной астме // Генетика. – 2001. – Т. 37., № 1. – С. 107-111.
Ильина Н.И. Эпидемия аллергии – в чем причины? // Консилиум-медикум. – 2001. – Приложение. – С. 3-5.
Кан Е. Л. Изменения в системе крови и их диагностическое значение // Руководство по туберкулезу органов дыхания. - 1972. — С. 116—128.
Крынецкий Е.Ю. Полиморфизм ферментов, участвующих в метаболизме лекарственных средств: структура генов и ферментативная активность // Молекулярная биология. – 1996. – Т.31 Выпуск 1. – 33-42.
Кулинский В.И. Обезвреживание ксенобиотиков // Cоросовский образовательный журнал. – 1999. - № 1. – С. 8-12.
Лакин Г. Ф. Биометрия: Учеб. Пособие для биол. Спец. ВУЗов – 4-е изд., перераб. И доп. – М.: Высш. шк., 1990. – 352 с.
Лильин Е. Т., Трубников В. И., Ванюков М. М. Введение