Сравнительный анализ структуры наследственной компоненты подверженности к бронхиальной астме и туберкулезу по генам ферментов метаболизма ксенобиотиков
При сравнении групп, различающихся по степени тяжести (табл. 9) показано, что в группе с тяжелой БА преобладали индивиды женского пола (63,5%) в отличие от двух других представленных групп.
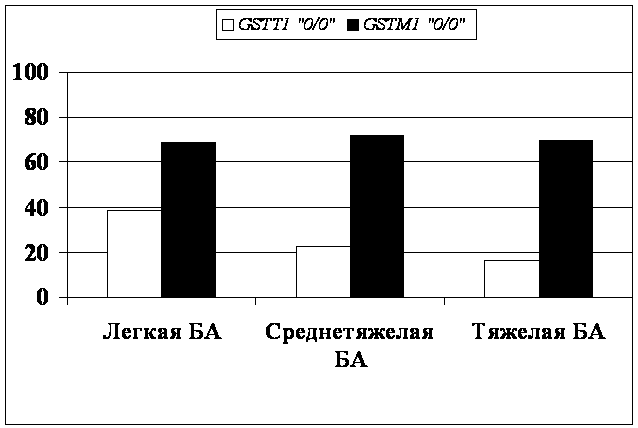
Рис. 3. Распределение «нулевых» (“0/0”) генотипов генов GSTT1 и GSTM1 у больных бронхиальной астмой, различающихся по степеням тяжести.
У больных БА с различными степенями тяжести заболевания установлены различия между легкой (n=26) и тяжелой (n=50) степенью тяжести по частотам генотипов гена GSTT1: «нулевой» генотип гена преобладал у лиц с легкой БА (38,5% и 16,0% у больных легкой и тяжелой БА, р=0,045) (рис. 3).
Предположив, что ферменты метаболизма ксенобиотиков способствуют сенсибилизации, осуществляя детоксикацию низкомолекулярных соединений, что клинически может проявляться проявлениями поливалентной аллергии, были проанализированы результаты кожных аллергопроб с полиморфизмом исследуемых генов ферментов метаболизма ксенобиотиков. В результате анализа не выявлено статистически значимых различий между группами, различающимися по наличию/отсутствию сенсибилизации (р>0,05).
В целом, полученные данные свидетельствуют о связи изученных полиморфных вариантов генов у жителей г. Томска как с БА, так и с отдельными клиническими признаками заболевания. Результаты работы показали вклад делеционного полиморфизма гена GSTM1 в развитии БА, основанного на функциональной значимости глутатионовых S-трансфераз в метаболизме эндогенных и экзогенных ксенобиотиков, а также выявили, что риск развития БА увеличивает гетерозиготный генотип гена CYP2E1 (полиморфизм 7632T>A). Кроме того, установлено значимое увеличение частоты «нулевого» генотипа гена GSTT1 у больных с легким течением заболевания.
3.2.2. Ассоциация полиморфизма генов ферментов метаболизма ксенобиотиков с туберкулезом
Известно, что при воспалении и инфекции происходит изменение уровня активности цитохромов Р450. Этот эффект опосредован цитокинами, которые угнетают транскрипцию генов и накопление мРНК различных изоформ цитохрома Р450 в клетках [Renton, 2004]. Такая реакция взаимодействия иммунной системы и системы метаболизма ксенобиотиков на внедрение инфекционного агента обеспечивает защиту от последствий возможной неконтролируемой активации потенциально опасной для организма ферментативной системы и снижает риск развития оксидативного стресса. В связи с этим представляется важным изучение полиморфизма генов системы метаболизма ксенобиотиков в отношении ТБ инфекции.
Таблица 10
Распределение генотипов исследуемых генов ферментов биотрансформации у больных туберкулезом и здоровых
| Генотип | ТБ | Контрольная группа | р | ||
| n | % | n | % | ||
| GSTT1 | |||||
| GSTT1 + | 254 | 81,9 | 103 | 76,3 | 0,195 |
| GSTT1 0/0 | 56 | 18,1 | 32 | 23,7 | |
| GSTM1 | |||||
| GSTM1 + | 126 | 40,6 | 61 | 45,2 | 0,404 |
| GSTM1 0/0 | 184 | 59,4 | 74 | 54,8 | |
| GSTP1 313A>G | |||||
| AA | 144 | 47,2 | 58 | 48,7 | 0,034 |
| AG | 142 | 46,6 | 45 | 37,8 | |
| GG | 19 | 6,2 | 16 | 13,5 | |
| CYP2E1 7632T>A | |||||
| ТТ | 246 | 80,4 | 106 | 82,8 | 0,235 |
| ТА | 59 | 19,3 | 20 | 15,6 | |
| АА | 1 | 0,3 | 2 | 1,6 | |
| CYP2E1 1293G>C | |||||
| C1C1 | 287 | 92,3 | 113 | 92,6 | 0,498 |
| C1C2 | 24 | 7,7 | 9 | 7,4 | |
| C2C2 | 0 | 0,0 | 0 | 0,0 | |
| CYP2C19 681G>A | |||||
| *1/*1 | 234 | 76,5 | 90 | 77,6 | 0,828 |
| *1/*2 | 69 | 22,5 | 26 | 22,4 | |
| *2/*2 | 3 | 1,0 | 0 | 0,0 | |
Примечание. n – абсолютное значение; р – достигнутый уровень значимости по точному тесту Фишера.
При сравнении распределения частот аллелей и генотипов полиморфных вариантов генов метаболизма ксенобиотиков между группой больных ТБ и контрольной выборкой получены различия только для гена GSTP1, обусловленные увеличением доли гомозигот G/G у здоровых (р=0,034) (табл. 10). Установлена протективная роль генотипа G/G гена GSTP1 в отношении развития ТБ (OR=0,43; 95%CI: 0,20-0,91; р=0,026). В результате однонуклеотидной замены аденина на гуанин в этом гене происходит изменение ферментативной активности, обусловливающее повышение уровня гидрофобных аддуктов в тканях легких. Показано, что соответствующая замена изолейцина на валин в 105 положении, расположенная в субстрат-связывающем Н-участке фермента, приводит к неоднозначным изменениям кинетических параметров ферментам. Ген GSTP1 в большей степени экспрессируется в респираторном тракте. Возможно, что для гомозигот G/G гена GSTP1 характерна высокая каталитическая активность по отношению к ряду соединений, являющихся факторами риска развития ТБ (например, продукты табачного дыма), которая способствует их быстрому метаболизму и дальнейшему выведению, таким образом, снижая риск развития заболевания.
Сравнительная оценка распределения частот аллелей и генотипов генов GSTT1, GSTM1, CYP2E1 и CYP2C19 между группами больных ТБ и здоровых индивидов cтатистически значимых различий не показала (табл. 10).
Проведен анализ полиморфизма исследуемых генов для определения связи с отдельными клиническими проявлениями ТБ, характеризующими тяжесть и течение патологического процесса. Особенно важной является оценка связи исследуемых полиморфизмов с лабораторными показателями, свидетельствующими о степени тяжести туберкулезного процесса и выраженности воспалительной реакции.
Исходя из данных рентгенологического исследования, были сформированы три группы больных ТБ в зависимости от объема поражения легкого (I группа – поражено 1-2 сегмента легкого (n=76), II группа – поражена одна доля легкого (n=40), III группа – задействовано более доли легкого (n=117)). При анализе распределения частот аллелей и генотипов исследуемых локусов получены различия для гена CYP2C19: отмечено преобладание гомозигот *1/*1 в III-й группе по сравнению с I-ой (80,3% и 65,8%, соответственно, р=0,040) и повышенная частота аллеля CYP2C19*1 в III-й группе (р=0,045). Эти данные свидетельствуют в пользу гипотезы о накоплении в клетках активных форм кислорода и реактивных метаболитов, образующихся в реакциях I фазы. Известно, что CYP2C19 семейства цитохрома Р450 является основным ферментом, катализирующим в организме человека трансформацию (S)-мефенитоина в соответствующее 4’-гидроксипроизводное [Крынецкий, 1996]. Замена 681G>A в пятом экзоне гена является основным генетическим дефектом, приводящим к инактивации CYP2C19, проявляющимся на уровне фенотипа наличием медленных метаболизеров (S)-мефенитоина. Полученные различия в отношении развития ТБ можно трактовать следующим образом: у носителей CYP2C19*1 аллеля при метаболизме субстратов для CYP2C19 повышается уровень реактивных окислителей, которые независимо от работы ферментов II фазы, накапливаются в организме и оказывают повреждающее действие на клетки, усиливая патологический процесс. Развитие окислительного стресса при ТБ способствует усилению процессов деструкции в легочной ткани. Подобные результаты были получены при исследовании инсерционного полиморфизма гена CYP2E1 с развитием инфильтративного ТБ у жителей Башкортостана [Бикмаева и др., 2004].
Основной этиологической причиной в развитии туберкулезного процесса являются микобактерии ТБ, несмотря на важное значение факторов, способствующих развитию заболевания (курение, асоциальный образ жизни и др.). С момента открытия Р.Кохом в 1882 году, возбудитель ТБ достаточно полно изучен в отношении биологических свойств, характера и условия заражения. Сложилось четкое представление о патогенезе заболевания, его клинических проявлениях, течении и исходах. ТБ отличается клиническим полиморфизмом, что проявляется в развитии различных форм заболевания – от малых с бессимптомным течением до обширных деструктивных процессов с выраженной клинической картиной. Известно, что контакт организма человека с M. tuberculosis не обязательно приводит к развитию болезни [Хоменко, 1990]. В легких процесс начинается с формирования небольшого очага, где происходит накопление серозного экссудата с нейтрофильными гранулоцитами и макрофагами, подвергающегося первичному некрозу. В дальнейшем экссудативные изменения заканчиваются формированием туберкулезной гранулемы, затем при благоприятном течении процесс ограничивается рубцеванием или инкапсуляцией. Развитие туберкулезных изменений в ранее не инфицированном M. tuberculosis организме свидетельствует о первичном генезе заболевания. В случае обострения существующего первичного процесса, либо повторного экзогенного инфицирования, возникает вторичный ТБ [Цинзерлинг, 1996]. Несмотря на накопленные данные о патогенезе заболевания до сих пор не решен вопрос, почему в одних случаях развивается очаговый ТБ, а в других – инфильтративный или другие клинические формы [Хоменко, 1990].
Предположив, что различия в патогенезе заболевания связаны с индивидуальными особенностями генома человека, был изучен полиморфизм генов системы метаболизма в группах больных ТБ, различающихся по клиническим формам заболевания. Наиболее характерной клинической формой заболевания среди исследуемых больных жителей г. Томска является инфильтративный ТБ (50,3%) (табл. 11). По Сибирскому Федеральному округу также отмечается преобладание вторичного ТБ, среди которых инфильтративная форма занимает первое место в общей структуре клинических форм и составляет 55,1% [Краснов, 2004].
Процентное соотношении доли индивидов мужского и женского пола колеблется в зависимости от клинической формы заболевания. В выборке больных ТБ г. Томска отмечена высокая заболеваемость диссеминированной формой у мужчин по сравнению с женщинами (р=0,047), для остальных форм статистически значимых различий не показано (р=0,602-0,783). По мнению многих исследователей, более высокая заболеваемость у мужчин обусловлена не только биологическими свойствами макроорганизма, но и особенностями условий труда и влиянием различных вредных привычек [Рабухин, 1976; Хоменко, 1990].
Таблица 11
Половозрастной состав групп больных туберкулезом с различными клиническими формами
| Группы сравнения | Мужчины n, (%) |
Женщины n, (%) |
Cуммарно n, (%) | Средний возраст ± S.D. |
| ТБ внутригрудных лимфоузлов | 21 (9,9) | 13 (12,6) | 34 (10,8) | 6,8 ± 3,4 |
| Очаговый ТБ | 17 (8,1) | 10 (9,7) | 27 (8,6) | 35,7 ± 14,1 |
| Диссеминированный ТБ | 53 (25,1) | 15 (14,6) | 68 (21,7) | 36,9 ± 13,3 |
| Инфильтративный ТБ | 104 (49,3) | 54 (52,4) | 158 (50,3) | 33,4 ± 12,7 |
| Остальные формы | 16 (7,6) | 11 (10,7) | 27 (8,6) | 36,4 ± 11,6 |
Примечание. n – численность в группе; S.D. – стандартное отклонение.
При сравнительном изучении распределения частот «нулевого» генотипа гена GSTM1 группы больных первичным ТБ с поражением внутригрудных лимфоузлов и пациентов с инфильтративной формой отмечена тенденция к снижению доли лиц, гомозиготных по делеции, среди индивидов с ТБ вторичного генеза (70,6% и 52,3%, соответственно, р=0,058).
Анализ частот генотипов полиморфизма 313A>G гена GSTP1 в группах больных с ТБ внутригрудных лимфоузлов и инфильтративным ТБ также показал различия между этими двумя группами (р=0,026) за счет преобладания гетерозигот A/G у лиц больными вторичным ТБ по сравнению с первичной формой (50,0% и 34,4% соответственно).
Таким образом, отмечена связь полиморфных вариантов генов ферментов I и II фаз метаболизма GSTP1 313A>G и CYP2C19 681G>A в развитии ТБ легких у русских жителей г. Томска. Показана протективная роль генотипа G/G полиморфизма гена GSTP1 313A>G для развития ТБ легких. В то же время, установлено возможное модифицирующее влияние полиморфизма 681G>A гена CYP2C19 на увеличение объема зоны поражения легочной ткани при уже возникшем заболевании. Эти данные говорят о том, что изученные полиморфные варианты генов системы метаболизма оказывают вклад на развитие туберкулезного процесса у русских г. Томска.
3.2.3. Сравнительный анализ роли полиморфных вариантов генов системы метаболизма ксенобиотиков в детерминации бронхиальной астмы и туберкулеза
Согласно поставленной задаче, в ходе исследования был проведен сравнительный анализ распределения частот аллелей и генотипов полиморфных вариантов исследуемых локусов между группами больных ТБ и БА. Для делеционного полиморфизма гена GSTM1 показано, что частота «нулевого» генотипа у больных БА превышает таковую в группе больных ТБ (71,0% и 59,4% соответственно; c2=4,85, р=0,028) (рис. 4), а относительный риск развития БА по сравнению с ТБ у носителей «нулевого» генотипа гена GSTM1 составил 1,68 (95% CI: 1,06-2,67). Полученные данные еще раз подтверждают высокую важность функционирования глутатионовой S-трансферазы m1 в развитии БА, поскольку были получены различия в частотах генотипов данного полиморфизма гена GSTM1 при сравнении больных БА и контрольной группы (р=0,008). Для полиморфных вариантов генов глутатионовых S-трансфераз q1 и p1 при сравнении частот генотипов статистически значимых различий не показано (р=0,162 и р=0,387 соответственно).

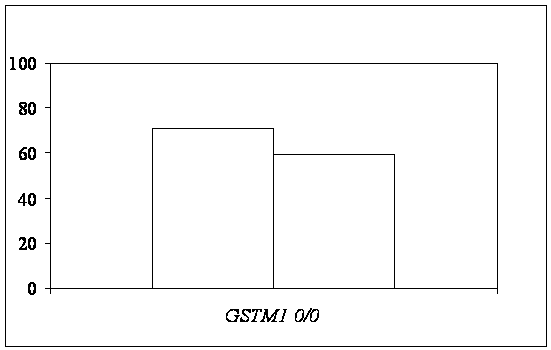
Рис. 4. Частоты «нулевых» (0/0) генотипов гена GSTM1 у больных бронхиальной астмой и туберкулезом.
При сравнении частот генотипов исследуемых в настоящей работе полиморфных вариантов генов цитохромов Р450 различий не было показано между группами больных БА и ТБ (р=0,079-0,437). Среди больных ТБ преобладал *1/*1 генотип полиморфизма 681G>A гена СYP2C19 по сравнению с больными БА (76,5% и 66,4% соответственно), однако эти различия статистически не значимы (р=0,079). В то же время были получены различия между группами больных с ТБ и БА при сравнении частот аллелей этого локуса, где частота СYP2C19*1 аллеля у больных ТБ выше по сравнению с больными БА (87,7% и 82,5% соответственно; c2=3,96, р=0,047). Интересно, что СYP2C19*1 аллель участвует в увеличении объема поражения легочной ткани у больных ТБ легких, и, по-видимому, данная ассоциация предполагает важное участие гена СYP2C19 именно в формировании клинических проявлений при ТБ. Соответственно, для индивидов носителей СYP2C19*2 аллеля среди больных БА относительный риск выше по сравнению с больными ТБ (OR=1,52, 95% CI: 1,01-2,30; p=0,047).
Таким образом, при сравнительном анализе распределения частот аллелей и генотипов полиморфных вариантов генов ферментов метаболизма ксенобиотиков между больными ТБ и БА были получены следующие различия: «нулевой» генотип гена GSTM1 и носительство СYP2C19*2 аллеля полиморфизма 681G>A гена СYP2C19 определяют развитие БА.
3.3. Анализ ассоциаций генов ферментов метаболизма ксенобиотиков с бронхиальной астмой и туберкулезом на семейном материале
Известно, что при анализе ассоциаций генетических факторов с болезнями и признаками по принципу «случай-контроль», вероятность ложноположительного результата высока, в связи с тем, что кроме возможной истиной значимости исследуемого гена в отношении изучаемой патологии необходимо учесть возможное неравновесие по сцеплению с другими генами, имеющими непосредственное отношение к болезни. Кроме того, крайне необходимо принять во внимание процессы, происходящие непосредственно при формировании популяции, например, подразделенность, метисация, инбридинг.
Поэтому, для исключения ложноположительной ассоциации с подверженностью к полигенным заболеваниям, наиболее перспективны являются исследования на семейном материале, которые позволяют исключить влияние факторов подразделенности популяции.
В связи с этим для анализа ассоциаций исследуемых полиморфных вариантов генов ферментов метаболизма ксенобиотиков в настоящем исследовании использовали тест на неравновесие при наследовании TDT (Transmission/Disequilibrium Test). Применение данного теста для диаллельного локуса позволяет сравнить частоту аллелей у больных потомков гетерозиготных родителей и, в случае, если один из аллелей будет встречаться чаще у пробандов, можно говорить об ассоциации с заболеванием [Spielman, 1993].
Таблица 12
Численность аллелей, унаследованных больными бронхиальной астмой и туберкулезом от гетерозиготных родителей
| Группы сравнения | Ген (полиморфизм) | |||
| GSTP1 (313A>G) | CYP2E1 (7632T>A) | CYP2C19 (681G>A) | ||
| БА | N гетерозиготных родителей | 38 | - | 39 |
| N унаследованных аллелей | A=13; G=25 | - | CYP2C19*1=24; CYP2C19*2=15 | |
| TDT (p) | 3,79 (0,052) | - | 2,08 (0,150) | |
| ТБ | N гетерозиготных родителей | 17 | 11 | - |
| N унаследованных аллелей | A=10; G=7 | Т=8; А=3 | - | |
| TDT (р) | 0,53 (0,467) | 2,30 (0,129) | - | |
Примечание. TDT – значение теста Transmission/Disequilibrium Test; р – достигнутый уровень значимости.
При анализе семейного материала больных БА наблюдалось предпочтительное наследование аллеля 313G гена GSTP1 больными от гетерозиготных родителей (TDT=3,79, р=0,052), близким к статистической значимости (табл. 12). Ген GSTP1 локализован на хромосоме 11q13, а для этого региона показано сцепление с бронхиальной гиперреактивностью и атопией [Daniels et al., 1996; Thomas et al., 1997]. Полученные данные позволяют предполагать возможное участие глутатионовых S-трансфераз p1 в детоксикации и элиминации токсических продуктов в эпителиальных тканях респираторного тракта. Данные о неоднозначных изменениях каталитической активности при мутации 105Val [Watson et al., 1998], позволяют предположить, что недостаток соответствующего фермента, задействованного в метаболизме ксенобиотиков, приводит к нарушению детоксикации электрофильных реактивных метаболитов, образующихся в I-й фазе биотрансформации и оказывающих повреждающее действие на бронхи, тем самым, провоцируя развитие БА у предрасположенных индивидов.
Для гена CYP2E1 (7632T>A) не удалось проследить наследование аллелей для больных БА в силу низкой гетерозиготности родителей пробандов. Использование TDT для гена CYP2C19 (681G>A) не показало значимой ассоциации с заболеванием (TDT=2,08, p=0,150). Значение TDT для полиморфизма 313A>G гена GSTP1 не показало преимущественного наследования ни одного из аллелей пробандами больными ТБ (TDT=0,53, p=0,467), в отличие от такового значения для больных БА. В случае полиморфизма по «нулевым» аллелям для генов GSTT1 и GSTM1 применение TDT затруднено по причине невозможности определения гетерозиготного носительства.
В целом, семейный анализ наследования аллелей генов ферментов метаболизма ксенобиотиков показал отсутствие предпочтительного наследования аллелей больными потомками от гетерозиготных родителей, однако для аллеля 313G гена GSTP1 получено значение TDT близкое к статистической значимости.
3.4. Оценка связи комбинаций генотипов генов ферментов биотрансформации ксенобиотиков с туберкулезом и бронхиальной астмой
Спектр изоформ определяет соотношение метаболических путей биотрансформации ксенобиотиков и спектр образуемых метаболитов. В результате генетически обусловленного полиморфизма этих ферментов может возникать дефицит либо значительная активность отдельных изоформ, что определяет риск развития заболевания. Знания о физиологической функции ферментов метаболизма ксенобиотиков, свидетельствующие о четкой и скоординированной работе I и II фаз биотрансформации, позволяют предположить, что наиболее важная информация об их роли в патогенезе заболеваний будет получена при анализе носителей определенных сочетаний генотипов.
Поэтому, кроме анализа ассоциаций БА и ТБ с отдельными полиморфными вариантами генов GSTT1, GSTM1, GSTP1, CYP2E1 и CYP2C19 в данном исследовании были также изучены ассоциации различных комбинаций генотипов с заболеваниями (табл. 13, 14).
Комбинации генотипов GSTM1+ и GSTT1+, GSTT1+ и CYP2C19 *1/*1, GSTM1+ и CYP2E1 Т/Т, CYP2C19*1/*1 и CYP2E1 C1/C1 можно охарактеризовать, как генетические факторы устойчивости к возникновению БА. Объяснением резистентности к патологии для носителей сочетания функциональных генотипов GSTM1+/GSTT1+, может быть их функциональная значимость в отношении всей системы метаболизма, способствующая своевременной утилизации ксенобиотиков, оказывающих вредное воздействие на организм, следствием которого может быть увеличение риска развития БА. Протективное сочетание генотипов генов ферментов I фазы CYP2C19 и CYP2E1, позволяет предположить участие в метаболизме возможных триггеров БА, исходя из знаний об их функции в организме. Во всех остальных случаях протективная роль комбинаций генотипов в отношении БА показана при сочетании аллелей генов, которые обеспечивают нормальное функционирование соответствующих ферментов системы метаболизма обеих фаз. В отношении ТБ протективную роль показали следующие комбинации генотипов: GSTM1 0/0 и CYP2E1 Т/А, GSTP1 G/G и CYP2E1 Т/Т, GSTP1 G/G и CYP2E1 C1/C1 (табл. 13).
Таблица 13
Протективные комбинации генотипов в отношении развития бронхиальной астмы и туберкулеза
| Комбинация генотипов | БА | ТБ | ||
| OR (95% CI) | р | OR (95% СI) | р | |
| GSTM1+ и GSTP1 G/G |
0,10 (0,0-0,76) |
0,018 |
0,37 (0,14-0,98) |
0,045 |
| GSTM1+ и GSTT1+ |
0,47 (0,26-0,84) |
0,009 | - | - |
| GSTT1+ и CYP2C19 *1/*1 |
0,51 (0,29-0,88) |
0,014 | - | - |
| GSTM1+ и CYP2E1 Т/Т |
0,28 (0,14-0,56) |
0,000 | - | - |
| CYP2C19*1/*1 и CYP2E1 C1/C1 |
0,53 (0,29-0,95) |
0,032 | - | - |
| GSTM 0/0 и CYP2E1 Т/А | - | - |
0,15 (0,06-0,42) |
0,000 |
| GSTP1 G/G и CYP2E1 Т/Т | - | - |
0,35 (0,16-0,79) |
0,009 |
| GSTP1 G/G и CYP2E1 C1/C1 | - | - |
0,39 (0,18-0,85) |
0,015 |
Примечание. OR – значение отношения шансов; 95% CI – 95% доверительный интервал; р –достигнутый уровень значимости по точному тесту Фишера.
Отмечена «общая» комбинация генотипов GSTM1+ и GSTP1 G/G, оказывающая протективную роль как в отношении развития БА (OR=0,10; 95% CI: 0,0-0,76; p=0,018), так и ТБ (OR=0,37; 95% CI: 0,14-0,98; p=0,045) (табл. 13). Несмотря на то, что согласно TDT, отмечено предпочтительное наследование аллеля 313G гена GSTP1 у больных БА, гомозиготы по этому аллелю в сочетании с функциональным генотипом гена GSTM1 показывают устойчивость к развитию заболевания. Возможно, что наличие особенностей ферментов метаболизма, таких как множественность форм и перекрывающаяся субстратная специфичность, позволяют существенно восполнить дефекты индивидуального фермента в метаболизме ксенобиотиков активностью других.
При анализе комбинаций генотипов полиморфных вариантов генов ферментов метаболизма ксенобиотиков установлены сочетания генотипов, предрасполагающие к развитию БА (табл. 14).
Таблица 14
Комбинации генотипов, предрасполагающие к развитию бронхиальной астмы
| Комбинация генотипов | OR (95% CI) | р |
| GSTТ1+ и GSTМ1 0/0 | 1,89 (1,13-3,19) | 0,015 |
| GSTM1 0/0 и CYP2E1 Т/А | 3,18 (1,31-7,87) | 0,008 |
Примечание. OR – значение отношения шансов; 95% CI – 95% доверительный интервал; р – достигнутый уровень значимости по точному тесту Фишера.
Выявлена комбинация генотипов GSTM1 0/0 и CYP2E1 Т/А, являющаяся фактором риска развития БА (OR=3,18; 95% CI: 1,31-7,87; р=0,008). В данном случае можно предположить наличие взаимосвязанной регуляции между двумя соответствующими ферментами глутатионовой S-трансфераза и цитохрома Р450. По этому поводу имеются данные о скоординированной экспрессии GSTM1 и GSTM3 в легочной ткани человека [Anttila et al., 1995], а также о более высокой активности CYP1A2 у индивидуумов с нулевым генотипом GSTM1 [MacLeod et al., 1997]. Стоит отметить, что эта же комбинация генотипов показала в отношении развития ТБ протективное значение (OR=0,15; 95% CI: 0,06-0,42; р=0,000). Видимо такая комбинация определяет неэффективный/эффективный метаболизм различных триггеров БА и ТБ эндогенного и экзогенного происхождения.
Возможно, высокий риск для носителей комбинации генотипов GSTТ1+ и GSTМ1 0/0 (OR=1,89; 95% CI: 1,13-3,19, р=0,015) получен вследствие высокой важности для данного заболевания GSTM1, и даже наличие функционального генотипа GSTT1 не снижает риск развития заболевания. Можно предположить, что соответствующие ферменты могут также метаболизировать различные по химической структуре молекулы, тогда именно субстраты для GSTМ1 могут быть триггерами БА и присутствие функционального генотипа GSTT1 никаким образом не оказывает влияния на сохранение состояния здоровья.
Среди всех проанализированных комбинаций полиморфных вариантов генов не показано ни одного сочетания, имеющего патогенетическую значимость в развитии ТБ.
В заключение следует сказать, что при сравнении сочетаний генотипов генов ферментов I и II фаз метаболизма для различных по этиопатогенезу заболеваний отмечена общая протективная комбинация генотипов GSTM1+ и GSTP1 G/G в развитии ТБ и БА. Для ТБ не показано ни одного патогенетически значимого сочетания генотипов генов ферментов метаболизма ксенобиотиков. Кроме того, комбинация генотипов GSTM1 0/0 и CYP2E1 Т/А являющаяся фактором риска развития БА, для ТБ оказывает протективную роль.
3.5. Связь полиморфизма генов ферментов метаболизма ксенобиотиков с изменчивостью количественных признаков у больных бронхиальной астмой и туберкулезом
Следующим этапом настоящего исследования было изучение связи исследуемых полиморфных вариантов генов с изменчивостью значимых для заболеваний количественных признаков, характеризующей адаптационные способности организма. Возможно, что изучаемые полиморфизмы цитохрома Р450 и глутатионовых S-трансфераз имеют значение в развитии БА и ТБ в целом, а также в выраженности отдельных клинических проявлений. Поэтому представлялось важным оценить наличие связи исследуемых генов с количественными лабораторными показателями, характеризующими особенности течения анализируемых заболеваний.
Известно, что ключевой особенностью БА является состояние бронхиальной гиперреактивности, свидетельствующее о повышенном бронхоконстрикторном ответе на различные физико-химические факторы, когда бронхоспазм развивается в ответ на воздействие, не вызывающее такой реакции у большинства здоровых лиц. На этом основан клинический тест с метахолином, показывающий изменения чувствительности и реактивности бронхов.
Предположив, что индивидуальная способность к детоксикации веществ, способствующих развитию БА и бронхиальной гиперреактивности, детерминирована полиморфизмом генов системы метаболизма ксенобиотиков, были проанализированы значения дозы метахолина (по результатам теста на бронхиальную гиперреактивность) с изученными полиморфными вариантами исследуемых генов. Признак не показал корреляции с возрастом обследуемых (r=-0,359, p=0,066). Учитывая значимые отклонения уровня метахолина от закона Гаусса (по данным теста Шапиро-Уилки, W=0,782, p=0,001), сравнение было проведено с помощью непараметрического медианного теста. В результате была показано близкое к статистически значимому различие «количественного фенотипа» БА у мужчин с полиморфизмом 313A>G гена GSTP1: для гомозиготных носителей GG генотипа характерна более низкая доза метахолина, по сравнению с мужчинами-носителями АА и AG генотипов (рис. 5, табл. 15). Следует отметить, что в доступных нам литературных источниках отмечается связь аллеля 313А гена GSTP1 с бронхиальной гиперреактивностью для европеоидной популяции [Cristina et al., 2002].
Известно, что основными соединениями, вызывающими бронхиальную гиперреактивность, являются реактивные окислители – ключевые компоненты воспалительной реакции. Бронхиальная гиперреактивность может быть модулирована уровнем реактивных окислителей, возможно, с помощью их способности регулировать продукцию эйкозаноидов через стимуляцию освобождения арахидоновой кислоты.
Таблица 15
Взаимосвязь изменчивости уровня метахолина с распределением генотипов полиморфизма гена GSTP1 313A>G
| Генотип |
|
|
|
||
| Мужчины (n=25) | |||||
| AA | 4,000 | 6,261 | -2,261 | ||
| AG | 11,000 | 8,348 | 2,652 | ||
| GG | 1,000 | 1,391 | -0,391 | ||
| p=0,054* | |||||
| Женщины (n=16) | |||||
| AA | 5,000 | 5,625 | -0,625 | ||
| AG | 2,000 | 1,875 | 0,125 | ||
| GG | 3,000 | 2,500 | 0,500 | ||
| p=0,789* | |||||
Примечание.
 obs
– наблюдаемые
средние значения,
exp
– ожидаемые
средние значения,
 =obs-exp,
* – достигнутый
уровень значимости
медианным
тестом.
Гены глутатионовых S-трансфераз являются генами-кандидатами для одного из клинических проявлений астмы – бронхиальной гиперреактивности, а, следовательно, и для БА, поскольку кодируемые ими ферменты понижают уровень реактивных окислителей [Hayes, McLellan, 1999]. Эта точка зрения подтверждается исследованиями, показавшими, что индивиды с пониженной антиоксидантной способностью имеют повышенный риск атопической БА и уменьшение потока антиоксидантов ассоциировано с экспрессией связанных с астмой фенотипов.
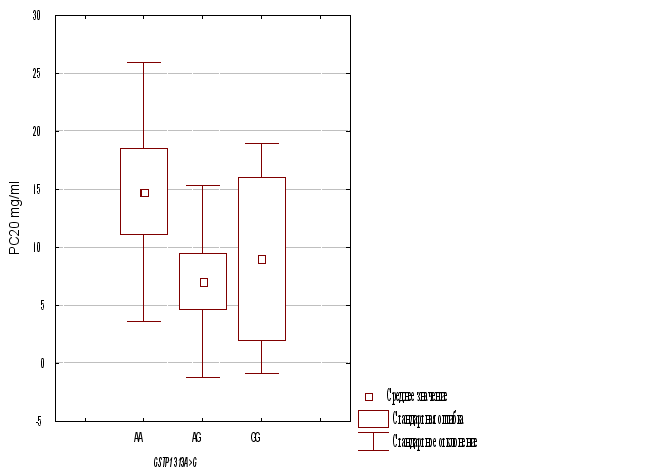
Рис. 5. Уровни метахолина у носителей различных генотипов полиморфизма 313A>G гена GSTP1 у лиц мужского пола.
Полиморфизм в генах GSTT1 и GSTM1 не показал связи с бронхиальной гиперреактивностью, что может отражать различия в генной экспресии, также как изменчивости в метаболизме субстратов, имеющих отношение для развития БА. Действительно, несмотря на то, что в эпителиальных клетках легких человека экспрессируются различные генные продукты GST, глутатионовые S-трансферазы p класса составляют более чем 90% от общей GST-активности [Frayer et al., 1986].
Известно, что для БА аллергического характера характерно значительное повышение уровня общего IgE. Через IgE-опосредованный механизм целый ряд клеточных элементов: тучные клетки, макрофаги, лимфоциты, эпителиальные и эндотелиальные клетки независимо друг от друга или совместно принимают участие в воспалении дыхательных путей, тем самым, осуществляя иммунный ответ организма на внедрение антигена. В этом контексте была рассмотрена гипотеза, предполагающая зависимость изменчивости уровня общего IgE от генетического полиморфизма ферментов метаболизма ксенобиотиков. Было показано значимое повышение уровня IgЕ у женщин с генотипом *1/*1 гена CYP2C19 по сравнению с носителями остальных генотипов (табл. 16).
Таблица 16
Распределение уровня IgE у носителей различных генотипов гена CYP2C19 (полиморфизма 681G>A) среди женщин
| Генотип | n | Средние значения IgE±S.E. | p |
| *1/*1 | 20 | 408,0±73,4 | 0,044 |
| *1/*2+*2/*2 | 4 | 67,5±26,7 |
Примечание. n – абсолютное значение человек в группе; р – достигнутый уровень значимости для теста Манна-Уитни.
Анализ изменчивости уровня общего IgE у больных БА с другими, изученными в данной работе полиморфными вариантами генов метаболизма ксенобиотиков, не показал ассоциаций ни у мужчин, ни у женщин (р>0,05).
Таблица 17
Значение показателей спирометрии ± S.E. в зависимости от генотипа по полиморфизмам генов глутатионовых S-трансфераз GSTT1 и GSTM1 у больных бронхиальной астмой
| Группа сравнения | Генотип | Форсированная жизненная емкость легких | Объем форсированного выдоха за 1 секунду | Пиковая скорость выдоха |
| GSTT1 | ||||
| Мужчины |
GSTT1 + (n=19) |
2,32±0,41 | 1,97±0,45 | 4,31±1,11 |
|
GSTT1 0/0 (n=12) |
2,58±0,50 | 2,29±0,42 | 4,82±0,84 | |
| р* | 0,122 | 0,059 | 0,187 | |
| Женщины |
GSTT1 + (n=18) |
2,46±0,73 | 2,02±0,67 | 3,86±1,33 |
|
GSTT1 0/0 (n=5) |
2,42±0,34 | 2,09±0,70 | 4,26±1,18 | |
| р* | 0,911 | 0,831 | 0,550 | |
| GSTM1 | ||||
| Мужчины |
GSTM1 + (n=8) |
2,31±0,42 | 1,92±0,31 | 4,31±1,08 |
|
GSTM1 0/0 (n=23) |
2,46±0,47 | 2,15±0,50 | 4,58±1,08 | |
| р* | 0,415 | 0,236 | 0,538 | |
| Женщины |
GSTM1 + (n=4) |
1,78±0,58 | 1,64±0,50 | 2,97±1,31 |
|
GSTM1 0/0 (n=19) |
2,59±0,59 | 2,12±0,67 | 4,15±1,22 | |
| р* | 0,021 | 0,191 | 0,097 | |
Примечание. n – объемы выборок; * - уровень значимости для однофакторного дисперсионного анализа.
Учитывая важность показателей исследования функции внешнего дыхания у больных БА для оценки степени тяжести заболевания, проведен сравнительный анализ связи полиморфных вариантов