Методические рекомендации к определению и выведению гемограммы у животных
Поэтому в дальнейшем описании под структурой ядра следует понимать возникающие в ядре при взаимодействии с фиксирующими и красящими веществами варьирующие образования — коагуляты. В ядрах различных клеток, в зависимости от специфических коллоидально химических различий их ядерной плазмы (кариоплазмы), эти коагуляты имеют некоторые морфологические особенности, которые и дают возможность различать между собою виды клеток.
А. ГРАНУЛОЦИТЫ
I. Базофилы
Базофильные гранулоциты, или тучные клетки, обычно круглой или округло-овальной формы, диаметром 8—15 µ. (у лошадей и коров несколько более крупные). Сама цитоплазма слабооксифильна и окрашивается в бледный, розовато-фиолетовый или, иногда. сыровато-голубой цвет, но находящиеся в ней крупные округлые зёрна (гранулы) резко базофилъной природы и окрашиваются метахроматически в тёмный красно-фиолетовый или ультрамариново-фиолетовый цвет (цвет мальвы — по Крюкову).. Зёрна легко растворяются в воде и потому в препаратах, фиксированных плохо обезвоженным метиловым спиртом, часто на место верен в цитоплазме образуются белые «окошечки». При фиксации абсолютным метиловым спиртом зёрна сохраняются хорошо. Расположение гранул в цитоплазме неравномерное, рыхлое. Часто они закрывают отдельные участки ядра. По своей химической природе базофильные зёрна являются белками, близкими к гликопротеидам.
Ядро базофилов — неясной структуры, неправильно лопастное или округлое, окрашивается в фиолетово-розовый цвет. В ядре расплывчато чередуются более светлые поля оксихроматина с темноокрашенными базихроматиновыми полями.
В базофилах чрезвычайно трудно различить стадии миэлоцита — юную, палочкоядерную и сегментоядерную. Вообще сегментированность ядра выражена слабо. Практического значения, для подсчёта лейкоцитарной формулы, дифференциация базофилов по степени их зрелости не имеет, прежде всего, потому, что в крови млекопитающих их очень мало: от 0,1 до 1—2%, в среднем 0,5%. Кровь сельскохозяйственных птиц содержит 3—4% базофилов, а содержание их в крови лягушек доходит до 23%.
Вообще, содержание базофилов очень высоко у амфибий, рептилий и у некоторых рыб.
Функциональное значение базофилов не выяснено. Повидимому, они играют некоторую роль в защите организма при парентеральном введении чуждых белков. Они способны фагоцитировать и содержать окислительные ферменты. Ряд учёных считает их трефоцитами («питающие клетки» Либмана). Такие клетки, переносящие питательные вещества, особенно широко распространены у беспозвоночных, где они часто преобладают.
Клиническое значение базофилов невелико. Количество их несколько возрастает при инъекции белков, при некоторых авитаминозах (группы В) и гепатических циррозах.
II. Эозинофилы
Эозинофилы (синонимы — оксифилы или ацидофилы) — это крупные (особенно у лошади) круглые клетки, диаметром от 8,2 до 19,8)1. Очень редко попадаются карликовые формы эозинофилов (особенно у крупного рогатого скота при депрессии гемопоэза). Очень крупны Эозинофилы лошади.
Цитоплазма слегка базофилъна, бесцветна или голубоватого цвета. Зёрна ярко окрашены эозином в интенсивный красный или розово-красный цвет (по описанию Крюкова, в кирпично-красный). У птиц они скорее розовые, чем красные. У молодых форм гранулы часто окрашены базофильно и лишь постепенно, по мере созревания клетки, становятся ацидофильными. У кошек цвет верен красновато-пурпурный.
Размерь и форма гранул весьма различны. У лошади .они очень крупные (до Зµ в поперечнике], покрывают часть ядра и придают эозинофилу вид плода малины (табл. 1—2). Довольно крупные верна у эозинофилов кролика (до 1,5 µ). Значительно мельче эозинофильная зернистость овцы. У свиньи зерна очень правильной круглой формы.
Обычно зёрна эозпнофилов расположены очень тесно, у лошади они часто даже сдавливают друг друга и приобретают угловатую форму и между зёрнами трудно различить цитоплазму. Однако у некоторых животных (например, у овцы) зерна могут быть расположены сравнительно редко, особенно в молодых клетках, и тогда цитоплазма видна хорошо. Типичные эозинофилы имеются в крови почти у всех позвоночных (кроме некоторых рыб). У п т и ц (Казаринов, Лебедев) зёрна эозинофилов относительно мелки. У рептилий эозинофилы составляют большинство лейкоцитов. Ацидофильные зёрна эозинофилов рептилий, плотно расположенные в цитоплазме, то шарообразны, то овальны, иногда имеют форму ромбических кристаллоидов или, наконец, представляют собой глыбки неправильной формы. Эозинофилы амфибий весьма напоминают собой аналогичные клетки у млекопитающих. Их гранулы относительно весьма велики. У большинства рыб имеются типичные эозинофилы, чаще всего с простым, круглым ядром. У некоторых видов рыб эозинофилы атипичны, — это лимфоидные клетки с редкими, но очень крупными гранулами, в цитоплазме. Наконец, в крови некоторых видов рыб эозинофилы, невидимому, не содержатся.
Микрохимическими методами установлена липоидно-белковая природа зёрен эозинофилов; они содержат фосфор и, возможно, железо. По Кальману (Kallman), юные эозинофилы птиц имеют гранулы нуклеопротеидной природы; позднее они становятся чисто альбуминовыми.
Зёрна эозинофилов видны даже в неокрашенных клетках, где они выделяются жёлтым цветом и высоким показателем преломления.
У амфибий, особенно лягушек, при хорошей фиксации и окраске по Романовскому в модификации Паппенгейма, зернистость удаётся выявить достаточно ясно. Зернистость гетерофилов у рептилий выражена слабо, но утверждение Максимова, что цитоплазма гетерофилов амфибий красится диффузно или выявляет сетчатое строение, но не содержит различных гранул, несомненно неправильно.
Окрашиваемость гранул в гетерофилах рыб сильно варьирует; у одних видов зернистость нейтрофильна, у других амфофильна. Наконец, у некоторых видов рыб гетерофилы (типичные по сегментированному ядру) до сих пор не найдены.
 Форма
ядра специальных
гранулоцитов
изменяется
в зависимости
от возраста
клетки. Редко
появляющаяся
в крови (только
при патологических
состояниях)
начальная
форма — миэлоцит
имеет округлое,
реже с отдельными
вдавленнями,
ядро. В дальнейшем
оно вытягивается
(«скручивается»,
по А. Н. Крюкову)
в сочное бобовидное
или колбасовидное
ядро (юная форма),
а
 затем
ещё более
вытягивается
и изгибается
то в форме изогнутой
палочки, то
подковы или
буквы S.
Это палочкоядерная
форма. Наконец,
ядро перекручивается
и образует ряд
сегментов
(долек), связанных
очень тонкими,
иногда почти
незаметными
нитями. Это
полиморфноядерные
или сегментоядерные
формы. Так как
первые исследователи
не замечали
перетяжек
между сегментами
и каждый сегмент
принимали за
отдельное ядро
(Эрлих), то эти
клетки получили
сначала название
полинуклеаров
(многоядерных).
В настоящее
время их правильнее
называют
полиморфноядерными
нейтрофилами.
Описанный
процесс изменения
ядра наблюдался
у свиньи, собаки
и морской свинки.
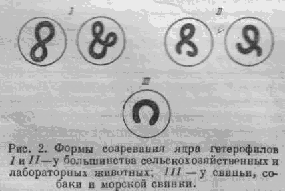
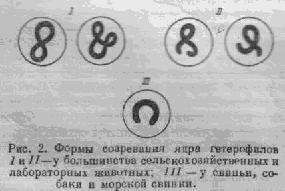
У большинства сельскохозяйственных животных процесс созревания сопровождается не сегментацией ядра, а образованием колец и приводит к возникновению так называемых цепочкообразных и узловатых форм ядра. Это видно из следующего рисунка (рис. 2).
Ядро специальных гранулоцитов окрашивается интенсивно (особенно у молодых), с резким чередованием базихроматина и оксихроматина (тёмных и светлых участков). Поэтому у зрелых форм структура ядра грубая. В ядре относительно много базихроматина (нуклеопротеидов и нуклеиновых кислот).
Специальные гранулоциты — это микрофаги И. И. Мечникова. Он объясняет перешнуровывание и сегментацию их ядра как специальное приспособление к диапедезу (миграции с проникновением через стенки капилляров). Именно поэтому они получили название специальных гранулоцитов (А. Максимов).
Гетерофилы содержат оксидазу и протеолитические ферменты (трипсин). Но некоторым данным, содержание ферментов, особенно трипсина, увеличивается при преобладании в пище белков.
Количество специальных гранулоцитов в крови довольно велико и колеблется в зависимости от вида животного, его функционального состояния и заболевания. Больше всего их у собак (60—70% всех лейкоцитов), меньше всего — у крупного рогатого скота (25—35%).
При патологических состояниях организма состав специальных гранулоцитов значительно изменяется. Резко уменьшается количество сегментоядерных клеток и нарастает количество палочкоядерных, юных и даже миэлоцитов, мобилизуемых из костного мозга в сосудистую кровь. Так как в самой левой графе лейкоцитарной формулы отмечаются наиболее молодые, в нормальной крови не встречающиеся клетки — миэлопиты, а все более взрослые формы — юные, палочкоядерные и сегментоядерные — размешаются в соответствующих графах все правее, то обогащение крови более молодыми формами получило название «сдвига ядра влево».
Регенеративный и дегенеративный сдвиги ядра. Различают два основных типа сдвига ядра: а) регенеративный и б) дегенеративный.
а) Регенеративный сдвиг ядра выражается в сдвиге ядра влево с увеличением в крови палочкоядерных, юных и даже миэлоцитов; обычно при этом наблюдается лейкоцитоз. Этот сдвиг и усиление лейкопоэза являются показателем раздражения костного мозга, происходящего при его функциональной достаточности. Костный мозг, компенсируя гибель нейтрофилов в борьбе с инфекцией, отдаёт в кровяное русло, наряду со зрелыми, всё возрастающее количество недостаточно зрелых форм, обычно не поступающих в сосудистую кровь.
б) При дегенеративном сдвиге общее часто уменьшается, отмечается нарастание палочкоядерных форм, в значительной степени дегенеративных без дальнейшего сдвига ядра влево. Дегенеративный сдвиг является показателем функциональной недостаточности костного мозга, в котором наблюдается тканевая дегенерация.
Индексом сдвига ядра называется отношение (М+Ю+П)/С равное обычно для крови взрослой лошади (О+О+4)/50 = 4/50
Для крови верблюда он равен 12.5/38 , коровы 6/25 и свиньи 3/40 (по Сёмушкину и Домрачеву).
В легких случаях патологического процесса сдвиг ядра влево не идёт далее увеличения палочкоядерных и частично юных форм. Напротив, появление большого количества миэлоцитов и юных специальных гранулоцитов в крови свидетельствует о тяжести заболевания.
При некоторых заболеваниях (особенно кроветворных органов) в крови появляются гигантские полисегментированные клетки. У некоторых животных, однако (например, у овцы), полисегментированные нейтрофилы находятся и в нормальной крови.
К дегенеративным изменениям специальных гранулоцитов относятся: пикнотичность и причудливые, резко угловатые формы ядра, токсическая зернистость и многочисленные вакуоли в цитоплазме.
Особенно большое значение имеет токсическая зернистость цитоплазмы. При обычной окраске растворами Гимза или Паппенгейма, мелкая в физиологической норме зернистость резко укрупняется, и зёрна часто сливаются в причудливую сеть (токсически изменённая зернистость). Для удобства дифференциации нормальной зернистости от токсической лучше применять окрашивание карболфуксинметиленовой синькой по Е. Фрейфельд. В этом случае физиологически нормальная зернистость гетерофилов почти не окрашивается, а патологическая резко выступает в виде фиолетово-синих зёрен или нитей и сеток на нежнорозовом фоне цитоплазмы. Можно также применять окраску по Гимза при кислой реакции воды (рН=5,4).
Вакуоли довольно часты в токсически изменённых или «старых» гетерофилах.
Иногда при инфекциях и интоксикациях в цитоплазме гетерофилов встречаются серо-голубые участки в виде хлопьев или бляшек, так называемые тельца Дёле (Dohle). Это остатки базофильных участков цитоплазмы раннего периода развития клетки.
Количество специальных гранулоцитов резко возрастает в начальной стадии большинства инфекционных болезней («нейтрофильная фаза борьбы»).
В. АГРАНУЛОЦИТЫ
IV. Лимфоциты
Лимфоциты являются типичными агранулоцитами, так как не содержат никакой характерной зернистости в цитоплазме, 8а исключением изредка попадающихся отдельных азурофильных верен. Клетки лимфоцитов округлые, с круглым или овальным ядром, которое окружено или очень узким (малые лимфоциты), или более широким (средние и большие лимфоциты) поясом цитоплазмы. Лимфоциты птиц и амфибий (лягушка) часто встречаются с зафиксированными в момент передвижения псевдоподиями.
Диаметр малых лимфоцитов от 4,5 до 6,5 (л, средних от 6,5 до 10 р. и больших от 10,0 до 18,0 jx.
Цитоплазма лимфоцитов базофильна; при окраске по способу Паппенгейма имеет сетчатое строение, а окрашенная раствором Гимза — гомогенна. Цвет— от бледноголубого у больших и средних лимфоцитов до синего у малых. Вокруг ядра заметна светлая, так называемая перинуклеарная зона. Последний признак помогает диференцировать больших лимфоцитов от не имеющих этой зоны моноцитов. В некоторых (преимущественно малых, иногда средних) лимфоцитах в цитоплазме встречаются в очень небольшом количестве азурофильные зёрнышки (2—8). Крайне редко эти зёрна бывают очень крупными (до 2 ji в диаметре).
Цитоплазма малых лимфоцитов иногда видна лишь с одной стороны ядра в виде очень узкого, едва заметного ободка (форма "серпа"). В некоторых клетках и этот серп незаметен, и тогда малый лимфоцит имеет вид «голого ядра».
Вообще по отношению к цитоплазме ядро лимфоцитов велико, форма его круглая или овальная, особенно правильная у малых лимфоцитов. Часто встречаются ядра с односторонним вдавлением, придающим ядру форму боба (ридеровская форма ядра). Крупные лимфоциты иногда имеют ядро менее правильной формы — угловатое, с выступами или вдав-лениями. В патологических случаях встречаются лимфоциты с неправильной лопастной формой ядра или расчленение ядра может напоминать сегментированные ядра специальных гранулоцитов.
В строении ядра лимфоцитов характерно наличие темноокрашивающихся, неясноочерченных больших глыбок базихроматина, со слабыми просветами между ними. Иногда это чередование тёмных глыбок с тонкими просветами придаёт ядру некоторое сходство с рисунком колеса, спицами которого служат светлоокрашивающиеся участки (А. Н. Крюков и др.). У малых лимфоцитов тёмные глыбки базихроматина настолько сливаются, что структуру ядра установить трудно.
Ядро больших лимфоцитов более рыхлое и менее интенсивно окрашивающееся. В ядре крупных лимфоцитов имеются не всегда ясно заметные 1—2 ядрышка.
Лимфоциты содержат липазу и, повидимому, принимают известное участие в кишечном пищеварении (Синельников). Их базофильная, содержащая некоторое количество нуклеотидов цитоплазма, продуцирует значительное количество иммунных тел (Догерти и Вайт) (Dougherty, White) (1945 г.).
Наконец, лимфоциты участвуют в образовании, из белков плазмы крови, трефонов (Хрущев).
Лимфоциты составляют большинство клеток белой крови у крупного рогатого скота (50—60% всех лейкоцитов), свиней (45—60%), овец (55—65%), коз (40—50%), кур (45—65%) и кроликов (50—65%). У этих животных имеется так называемый лимфоцитарный профиль крови. У собаки и лошади количество лимфоцитов в крови меньше; там превалируют специальные гранулоциты. Однако и у этих животных число лимфоцитов остаётся довольно значительным (20—40% от всех белых кровяных телец).
Количество лимфоцитов в крови молодых животных больше, чем в крови взрослых (за исключением первых дней после рождения). У низших позвоночных количество лимфоцитов может быть относительно очень велико.
В клинике лимфоцитоз встречается в конце благоприятно протекающего инфекционного заболевания («лимфоцитарная фаза выздоровления»). Лимфоцитоз характерен для лимфатической лейкемии, встречается при инфекционной анемии у лошадей и некоторых других заболеваниях.
V. Моноциты
Моноциты — большие клетки крови (от 10,0 до 20,0 µ в диаметре), большей частью округлой, иногда неправильной формы, с хорошо выраженной цитоплазмой, имеющей мельчайшую азурофильную зернистость, и большим, часто эксцентрически расположенным ядром с бухтообразными вдавлениями и лопастями.
Мелкая азурофильная вернистость цитоплазмы почти не видна у моноцитов сельскохозяйственных птиц.
Цитоплазма моноцитов слегка базофилъна, голубовато-серого или пепельно-серого цвета («цвета сигарного дыма») при окраске раствором Гимза п свинцово-серого пли грязноспнего цвета при окраске по способу Паппенгейма. Перинуклеарной зоны нет или она выражена очень слабо. По Крюкову, особенности окраски цитоплазмы моноцитов зависят от того, что преобладающая в ней пара-плазма методом Паппенгейма красится частью в синий цвет, частью в розовый, причём в некоторых клетках превалирует синяя субстанция при почти полном отсутствии розовой, в других обилие розовой субстанции оставляет явственный, своеобразный . отпечаток на морфологическом облике клетки, придавая её протоплазме фиолетово-синий или серо-фиолетовый тон.
У птиц цитоплазма моноцитов серовато-голубая и мало отличается от цвета цитоплазмы лимфоцитов.
Азурофильная зернистость моноцитов хорошо выявляется при окраске по Паппенгейму и с трудом, только при длительной и очень хорошей окраске, — по Гимза. Зернистость розово-красная, очень мелкая, пылевидная.
Ядро сравнительно велико, обычно образует выступы (лопасти) и бухтообразные углубления. Оно имеет очень нежную, тонкую структуру. Ядро моноцитов амблиохроматично (бледно окрашивается), с широконитчатой, мягкой, «облачносливающейся», неравномерной хроматиновой сетью. Интенсивность окраски ядра моноцитов гораздо слабее, чем у лимфоцитов.
Моноциты — это типичные макрофаги И. И. Мечникова. Они захватывают и переваривают остатки распавшихся клеток, попадающие в кровь, инородные частички, в том числе некоторые бактерии, и играют значительную роль в образовании иммунных тел.
В моноцитах имеется протеолитический фермент типа катепсина.
Нормальное количество моноцитов в крови млекопитающих и птиц колеблется в пределах от 2 до 8%. Моноцитоз (повышенное содержание моноцитов) наблюдается в первую фазу выздоровления при большинстве случаев инфекционных болезней («моноцитарная защитная фаза, или фаза преодоления»), при инфекционной анемии лошадей, протозойных заболеваниях и большинстве других инфекционных болезней. По Н. М. Николаеву, однако, моноцитоз при заболеваниях далеко не всегда благоприятный признак, знаменующий собой начало выздоровления.
Плазматические клетки (клетки раздражения)
Плазматические клетки (клетки раздражения) характеризуются одним общим для них признаком — резкой базофилией цитоплазмы (ультрамариновый цвет). Иногда в цитоплазме видны вакуоли. Эта весьма немногочисленная группа клеток имеет полифилетическое, главным образом лимфоцитоидное или миэлоидное происхождение. В соответствии с этим, ядро клеток Тюрка имеет структуру, соответствующую структуре ядер тех клеток, из которых они возникли, но окраска его всегда относительно темнее. Форма ядра — круглая или овальная. Правильные глыбки хроматина придают ядру пятнистый и несколько пикнотический характер.
Вокруг ядра обычно хорошо заметна перинуклеарная зона, периферический же слой цитоплазмы окрашен в интенсивносиний (ультрамаринового оттенка) цвет. Форма клеток — овальная, иногда сильно вытянутая или полигональная, реже круглая. Расположение ядра обычно эксцентричное. Структура цитоплазмы волокнистая или комковатая.
Из плазматических клеток могут возникнуть резко отличные от них по виду дегенеративные формы. В протоплазме плазматических клеток, утрачивающей базофильность, появляются крупные эозинофильные гранулы, вначале имеющие игольчатую форму. Ядро пикнотизируется, и клетка распадается. Гранулы распавшихся клеток, проникшие в соединительную ткань, называются русселевскими тельцами.
Плазматические клетки в крови млекопитающих в заметных количествах встречаются только при патологии. Ими характеризуется так называемая «пёстрая картина крови». У сельскохозяйственных птиц они имеются и в нормальной крови (у кур 0,1 %, по Лебедеву, у гусей до 1,5%, по Домрачеву).
КЛАССИФИКАЦИЯ БЕЛЫХ КЛЕТОК КРОВИ ПО Н. М. НИКОЛАЕВУ
Описанная до сих нор классификация лейкоцитов основывается, главным образом, на их морфологии, так как современное состояние наших знаний о физиологии белых кровяных клеток недостаточно для составления обоснованной функциональной классификации лейкоцитов. Однако некоторые попытки в этом отношении имеются.
Одной ив таких попыток является классификация лейкоцитов Н. М. Николаева. Он рассматривает зернистость белых кровяных клеток как момент, тесно связанный с их функцией. Хорошо выраженная зернистость — признак высокой реактивности клеток мезенхимы.
Соответственно этому основному положению, Н. М. Николаев выделяет пять групп лейкоцитов:

I группа А
эндотелий
I группа моноцит
гистиоцит
миэлобласт
I группа Б
промиелоцит
миелоцит
I группа юный нейтрофил (гетерофил)
I группа В
Палочкоядерный нейтрофил (гетерофил)
II группа { сегментоядерный нейтрофил (гетерофил)
III группа { эозинофил одно- и двуядерный
IV группа { базофил
V
группа А
Лимфобласт
Клетки раздражения
V группа Эритрогоний
Эритробласт
Нормобласт
V группа Б
Лимфоцит
К первой группе Н. М. Николаев относит исходные (материнские) клетки и близкие к ним; ко второй — сегментоядерные и нейтрофилы (зрелые микрофаги); к третьей — клетки фагоцитировавшие (Н. М. Николаев считает, что зёрна эозинофилов — это остатки поглощённых эритроцитов); к четвёртой — дегенеративные клетки и, наконец, к пятой — так называемые синтетические клетки, образующие или гемоглобин (эритробласты), или глобулин (лимфоциты).
В качестве принципиально новой клеточной формы среди агранулоцитов Н. М. Николаев выделяет так называемый гистиоцит или микромоноцит. При окраске раствором Гимза он может быть отличен от лимфоцитов по таким признакам (цитируем по Н. М. Николаеву):
|
Лимфоцит Узкий пояс протоплазмы Интенсивная базофилия протоплазмы Гомогенная или грубозернистая протоплазма Азурчфильные зёрна редки или единичны Темнофиолетовая окраска ядра Густое пикнотрчное ядро, иногда глыСчатое Перинуклеариая зона вокруг ядра |
Гистиоцит Более широкая протоплазма Светлоголубая или сероватая протоплазма Сетчатая или вакуолизиро-ванная протоплазма Большей частью азурофиль-ные зёрна Более светлая окраска ядра Более равномерное, менее плотное ядро Перинуклеарная зона часто отсутствует |
В ряде случаев такое выделение гистиоцитов начинает проникать в практическую медицину и ветеринарию.
РАЗМЕРЫ ЛЕЙКОЦИТОВ СЕЛЬСКОХОЗЯЙСТВЕННЫХ ЖИВОТНЫХ
Видовые различия в величине белых кровяных телец незначительны. Ниже приводится таблица диаметров эритроцитов, лейкоцитов и кровяных пластинок у сельскохозяйственных и лабораторных животных.
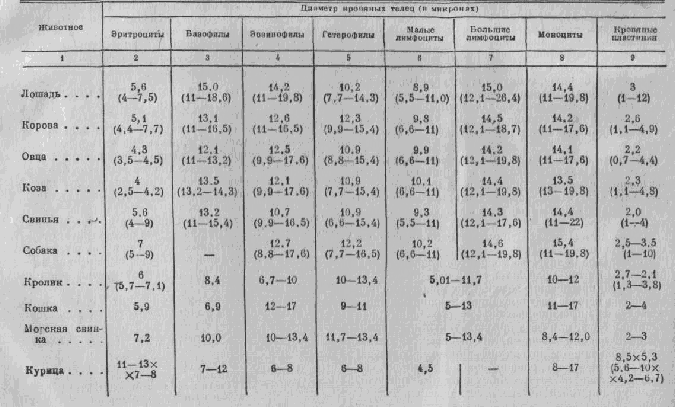
Размеры (диаметры в µ) кровяных клеток у лабораторных и сельскохозяйственных животных
ЛЕЙКОЦИТАРНАЯ ФОРМУЛА И ЛЕЙКОЦИТАРНЫЙ ПРОФИЛЬ КРОВИ
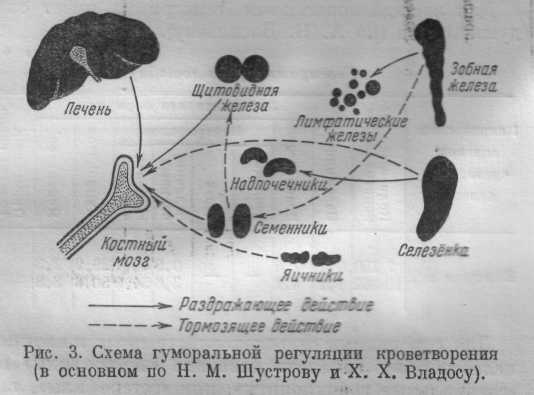
Количественный и качественный состав крови зависит от функционального и патологического состояния организма. Сложные биохимические и физиологические изменения, происходящие в организме при различных патологических состояниях, изменяют функциональное состояние гемопоэтической системы, а стало быть, и состав крови. Эти влияния изучены в совершенно недостаточной степени. Решающая роль здесь, несомненно, принадлежит изменению характера обмена веществ в самих периферических тканях. Некоторое представление об этом даёт схема взаимоотношений кроветворных органов с железами внутренней секреции, в основном заимствованная у Н. М. Шустрова и X. X. Владоса (1930 г.) (рис. 3).
Известно также влияние нуклеиновокислого натра, вызывающего лейкоцитоз. Несомненное, хотя и мало изученное, влияние на кроветворение оказывает активная реакция ретикулоэндотелиальной системы тканей внутренней среды.
При патологическом раздражении вегетативной нервной системы наблюдаются две фазы лейкоцитоза: 1-я фаза — лейкоцитоз с миелоидной тенденцией, сочетающийся при болезни с усилением лихорадочного состояния, обмена веществ, ускорением распада белков, повышением содержания сахара и падением содержания холестерина в крови и ацидозом,—преимущественно симпатикотония; 2-я фаза — лейкопения с лимфатической тенденцией, эозинофилия, ослабление лихорадки и обмена веществ, замедление распада белков и вообще явления, противоположные наблюдающимся в 1-й фазе, преимущественно ваготония. Влияние блуждающего нерва на эозинофилню установлено с достаточной достоверностью, так же как влияние симпатического на нейтрофилию.
На гемопоэз влияют следующие основные гуморальные факторы:
а) продукты
распада красных
кровяных телец
и,
возможно,
лейкоцитов
— стимулирующе;
б) щитовидная железа — стимулирующе;
в) печень — стимулирующе;
г) половые гормоны: андроген — стимулирующе— и эстроген — угнетающе (это установлено только для кролика);
д) ряд витаминов группы В, прежде всего фолеивая кислота, — стимулирующе;
е) токсины микроорганизмов, особенно патогенных, и продукты их распада (действие неоднозначное и диференцированное по отношению к различным видам кровяных клеток);
ж) гуморы: ацетилхолин, адреналин (влияние мало изучено);
з) антианемический фактор желудка — стимулирующе (П. А. Троицкий и др.);
и) гормон селезёнки — угнетающе.
Под воздействием этих гуморальных факторов количественный и качественный состав крови своеобразно меняется. Однако следует иметь в виду, что картина крови oтражает (и то не всегда прямо) функциональное состояние лишь кроветворных органов, а не организма в целом. При этом токсины, действующие, например, на нервную ткань, могут не оказывать существенного влияния на систему кроветворения, и наоборот. Очевидно, при различных заболеваниях состав крови может быть одинаковым, и, наоборот, одно и то же заболевание, в зависимости от функционального состояния кроветворных органов, может дать различные картины крови. Поэтому Е. Фрейфелъд (1948 г.) считает, что при пользовании лейкоцитарной формулой нужно руководствоваться следующими положениями: 1. Так как кроветворная система является для организма очень важным органом, то необходимо знать, как она функционирует, точно так же, как необходимо знать функции сердца, почек и т. п.
2. По крови мы устанавливаем функциональную диагностику кроветворной системы, некоторые функции которой вам известны, других же мы не знаем.
3. Ввиду того, что некоторые заболевания дают резко выраженный различный морфологический состав крови возможно исследованием крови исключить одно заболевание и высказаться в пользу другого.
4. Так как кровяные клетки постоянно сменяются новыми, то в случаях, когда они выявляют морфологически действие токсина (токсичность лейкоцитов, различные степени созревания — сдвиги), можно легко проследить, когда действие токсина прекращается, и, наоборот, выявить его, как только оно появляется.
5. При заболеваниях, дающих определённую кривую лейкоцитарной формулы, отклонения от неё указывают на неправильность течения или осложнения.
6. Реакция кроветворных органов не есть выражение иммунобиологического состояния всего организма, поэтому при диагностике нужно считаться с тремя возможностями:
а) реакция кроветворных органов соответствует реакции всех остальных органов, — тогда картина крови аналогична общему состоянию больного;
б) реакция кроветворных органов вследствие их недостаточности слабее реакции остальных органов, — тогда по картине крови можно поставить значительно худший прогноз, чем он окажется в действительности; в) несмотря на тяжесть заболевания, функция кроветворной системы превышает реактивную способность остальных органов, и тогда картина крови будет лучше, чем состояние «больного».
К изменениям картины белой крови относятся:
а) увеличение и уменьшение общего количества лейкоцитов;
б) изменение процентного соотношения отдельных видов лейкоцитов;
в) изменение морфологических свойств (дегенеративные и регенеративные формы) отдельных клеточных
элементов в крови
Лейкоцитарная формула учитывает качественные сдвиги состава белой крови, лейкоцитарный
профиль Мошковского и качественные и количественные сдвиги
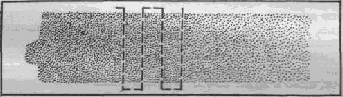
Подсчёт лейкоцитарной формулы производится по окрашенным мазкам крови. При подсчёте методом меандра, подвижным столиком постепенно сдвигают мазок крови по отношению к объективу микроскопа под прямыми углами зубчатой линии (напоминающей по ломаной древнегреческий орнамент — меандр).
Схема этого движения следующая (рис. 4).
Однако такой метод подсчёта не учитывает того, что клетки крови распределяются в мазке неравномерно: на периферии мазка относительно больше гра-нулоцитов, а в глубине — лимфоцитов. Поэтому, особенно у животных с лимфатическим профилем крови (корова, свинья, кролик, коза, овца, курица), лучше «прорезать» полем зрения микроскопа всю толщу мазка, как это видно на следующей схеме (рис. 5).
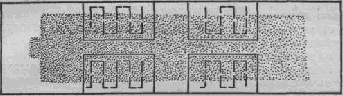
Рис.5 Подсчет лейкоцитов при сплошном прохождении полем зрения мазка
Подсчитав от 100 до 200 (для научных целей и более) лейкоцитов, попавших в поле зрения микроскопа, получаем гемограмму.
Для гемограммы сельскохозяйственных животных целесообразно заменить название «нейтрофилы» на «специальные гранулоциты», или «гетерофилы», так как у некоторых животных вместо нейтрофильной имеется псевдоэозинофильная зернистость. Для крупного рогатого скота и овец возможно разделение лимфоцитов на малые и большие. Профессор Н. М. Николаев предлагает выделить гистиоцитов (микромоноцитов). Значительное количество исследований крови показывает, что лейкоцитарная формула крови у некоторых видов животных (например, кролика) имеет значительные индивидуальные вариации. Поэтому А. А. Заварзин предложил различать животных с филогенетически устоявшейся формулой крови и с филогенетически лабильной формулой. В раннем онтогенезе лейкоцитарная формула более лабильна, с выраженным лимфоцитарным профилем.
Возрастные изменения картины крови у сельскохозяйственных и лабораторных животных
Рациональное применение метода изучения картины крови, как для клинических, так и для зоотехнических и общебиологических целей, требует обязательного знания онтогенеза сосудистой крови, гематологических исследованиях нельзя не учитывать особенностей возрастной эволюции организма, качественного своеобразия каждой стадии онтогенеза: характерных для данной стадии развития черт тончайшей структуры клеток и тканей, соотношения тканей в целом организме, показателей напряжения и динамики процессов, характеризующих отдельные функциональные системы, а также свойственных данному возрасту соотношения и характера гуморальной и нервной регуляции жизненных процессов.
Так как всё это отражается не только на картине нормальной крови, но и на тех изменениях, которые вызываются в ней различными патогенными факторами, то знание онтогенеза крови имеет большое значение и для правильного чтения гемограмм.
Кроме того, ряд авторов указывает на наличие сезонной изменчивости состава крови (Кудряшев и др.).
С другой стороны, онтогенез белой крови, образование лейкоцитов в красном костном мозгу и других местах гемопоэза и содержание в сосудах организма различных форм лейкоцитов не может не отражать последовательной смены нейрогуморальных регуляций и изменений общего функционального состояния организма в онтогенезе. Поэтому индивидуальная эволюцпя белой и красной крови весьма интересна, как своеобразный, легко определяемый, хотя, повидимому, не всегда адэкватный, показатель («сигнализатор>) функциональной и регуляторной индивидуальной эволюции всего организма в целом.
ОНТОГЕНЕЗ БЕЛОЙ КРОВИ У ОСНОВНЫХ СЕЛЬСКОХОЗЯЙСТВЕННЫХ ЖИВОТНЫХ
Крупный рогатый скот
Возрастные изменения белой крови у крупного рогатого скота были первоначально изучены И. С. Токарем (1938 г.) для красной степной породы, а затем автором настоящего атласа (В. Н. Никитин. 1946 г.) для остфризской породы. Данные И.С. Токаря представлены в таблице 9.
Свои основные выводы И. С. Токарь формулирует следующим образом:
1. Число лейкоцитов с возрастом уменьшается; максимальное количество (11228 в 1 мм 3) наблюдается в возрасте 3—9 месяцев.
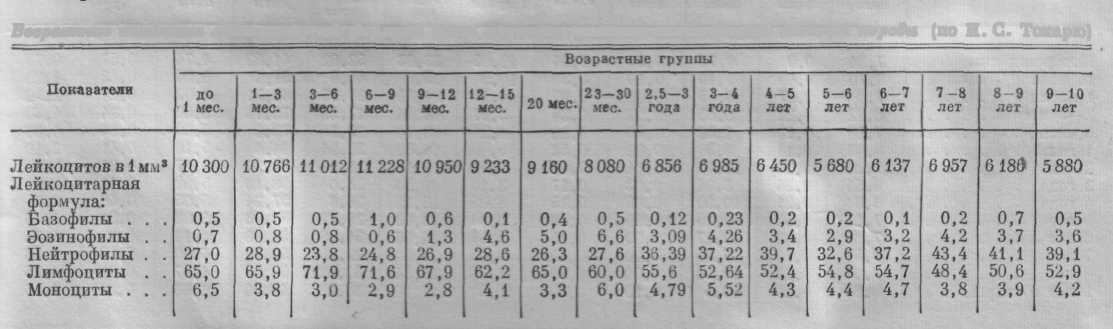
2. Картина белой крови существенно изменяется с возрастом. В молодом возрасте наблюдается лимфоцитоз, причём количество лимфоцитов доходит до 71.9%.
3. Отмечается большая связь процента лимфоцитов с ростом и развитием животных, а также и с половым созреванием.
4. Число нейтрофилов с возрастом увеличивается. Особый скачок нейтрофилов наблюдается с момента отёла.
5. Эозинофилы с момента полового созревания значительно повышаются, с л актированием наблюдается понижение.
6. Для базофилов и моноцитов не обнаружено определённой закономерности в изменении с возрастом.
7. Юные и миелоциты обнаружены только у молодых животных».
И. С. Токарь не дифференцировал в итоговой таблице различные стадии зрелости нейтрофплов и слил в одну группу анализы крови телят моложе 1 месяца.
8. Н. Никитин (1946 г.) исследовал все возрастные периоды крупного рогатого скота остфризской породы, дифференцируя степени зрелости ядра нейтрофилов.
Основные закономерности онтогенеза белой крови у крупного рогатого скота сводятся к следующему:
1. Количество лейкоцитов в онтогенезе изменяется сравнительно мало. Можно отметить слабо выраженный максимум между 3 и 12 месяцами и некоторое уменьшение количества лейкоцитов у взрослых животных.
2. Возрастные изменения в содержании базофилов и моноцитов незначительны и не