Методические рекомендации к определению и выведению гемограммы у животных
Открытие «фактора вызревания эритроцитов» (образуется в стенке желудка и концентрируется в печени), способствующего переходу мегалобластов в эритробласты, выясняет отношения между последними. Сабин считает мегалобластов нормальной промежуточной формой при эритропоэзе. В его схеме имеются следующие стадии вызревания эритроцита:
Ретикулярная клетка
«Примитивная клетка»
Мегалобласт
Ранний эритробласт
Поздний эритробласт
Нормобласт
Полихроматопит или ретикулоцит
Зрелый эритроцит.
Г. РЕГЕНЕРАТИВНЫЕ И ДЕГЕНЕРАТИВНЫЕ ИЗМЕНЕНИЯ КРАСНЫХ КРОВЯНЫХ ТЕЛЕЦ
Регенеративные изменения в эритроцитах наблюдаются при усиленном эритропоэзе. Полное вызревание эритроцита может при этом несколько нарушаться, давая необычные для нормальной крови формы, и в сосудистую кровь могут поступать не совсем зрелые формы красных кровяных телец, иногда даже самые ранние их предстадии.
Примером регенеративных нарушений нормального типа созревания эритроцитов является преждевременная энуклеация ядра, в то время как цитоплазма, сохраняя присущие юным клеткам нуклеиновые кислоты и не накопив гемоглобина, остаётся ещё базофильной или полихроматофильной. Отсюда появление в сосудистой крови полихроматофильных или даже базофильных эритроцитов. Иногда базофилия цитоплазмы сохраняется в виде небольших участков, пятен, островков на ортохромной поверхности эритроцита. В этом случае появляются базофильно пунктированные эритроциты. Наконец, в созревшем эритроците могут сохраниться остатки ядра — в виде отдельных обломков (азурофильная пунктация, тельца Жоли) или в виде остатков ядерной оболочки (кольца Кабота) (Cabot).
Иногда, наоборот, созревание ядра при стимулированном эритропоэзе отстаёт от созревания цитоплазмы. В этом случае дифференцированная, ортохроматическая цитоплазма окружает незрелое, нежно структурированное ядро. Аналогичное явление получается при ускоренном созревании цитоплазмы.
Все эти, сами по себе патологические отклонения в созревании эритроцитов свидетельствуют об усиленном новообразовании красных кровяных телец, их регенерации, о регенеративных сдвигах в красном костном мозгу.
Однако существуют и такие изменения эритроцитов, которые происходят при угнетении эритропоэза какими-либо вредными воздействиями, ведущими к явлениям дегенерации в красном костном мозгу. Такие дегенеративные изменения выражаются в изменении величины (анизоцитоз), формы (пойкилоцитоз) и окрашиваемости (появление гипер- и гипохромных форм) эритроцитов.
В процессе созревания регенеративные формы, под влиянием вредных воздействий, могут также подвергаться дегенеративным изменениям: в этом случае в эритроцитах возникают смешанные, дегенеративно-регенеративные изменения.
«Относительно истинного значения различных патологических форм красных кровяных элементов не существует полного единодушия во взглядах, и то, что одними признаётся за дегенеративные изменения, другие то же самое считают регенеративными изменениями. Но в общем, исходя лишь из морфологических изменений клетки при прогрессивной дифференциации её, можно составить правильное и последовательное представление и о патологии эритроцитов» (А. Н. Крюков).
Следует иметь в виду, что малые дозы кровяных ядов влияют на кроветворную систему стимулирующе, вызывая, главным образом, явления регенерации (хотя в небольшой степени вызывают и дегенеративные изменения в эритроцитах). При больших дозах кровяных ядов превалируют явления дегенерации, хотя в какой-то степени можно уловить и регенеративные изменения эритроцитов. Только при очень больших дозах кровяных ядов дегенерация совершенно подавляет всякие признаки регенерации.
Полихроматофилы, ретикулоциты и базофильно пунктированные эритроциты. Одним из основных регенеративных признаков красной крови является нахождение в мазке полихроматофилов, ретикулоци-тов и базофильно пунктированных эритроцитов.
При обычной окраске по Романовскому полихромазия выявляется по синевато-фиолетовой или розово-фиолетовой окраске эритроцитов. При суправиталь-ной окраске спиртовым раствором бриллианткрезилголубой зрелые эритроциты окрашиваются в зелёный цвет, а в молодых, недозрелых формах обнаруживаются нежные яркосиние сеточки (ретикулоциты) или отдельные темносиние точки и пятнышки (базофильно пунктированные эритроциты).
Объяснение этому заключается в самой сущности вызревания цитоплазмы. Юная цитоплазма богата нуклеиновыми кислотами, делающими её резкобазофильной (Кедровский). Нуклеиновые кислоты играют большую роль в синтезе белков, в частности, глобулинов в лимфоцитах и, повидимому, гемоглобина в эритробластах. По мере вызревания красных кровяных клеток, базофилия цитоплазмы исчезает, так как количество нуклеиновых кислот в ней уменьшается. Но, при усиленной регенерации, у молодых, поступающих в сосудистую кровь ещё несозревшими, эритроцитов, базофилия частично сохраняется в виде полихромазии, если вся цитоплазма ещё диффузно содержит много нуклеиновых кислот, или в виде ба-зофильной пунктации, если нуклеиновые кислоты сосредоточены в отдельных местах эритроцита.
Количество полихроматофильных эритроцитов в нормальной крови лошади и коровы очень невелико (не более 1—3 на тысячу ортохромных эритроцитов). У всех молодых животных, а у свиней, собак, морских свинок и крыс — также и во взрослом состоянии, полихроматофилов значительно больше. Особенно много полихроматофилов у новорождённых.
При анемиях и некоторых других заболеваниях, при усилении регенерации в красном костном мозгу, количество полихроматофилов в сосудистой крови резко возрастает.
Изменения в эритроцитах, связанные с сохранением остатков распада ядра. а) Красная полихроматофилия, красная пунктация и красная штриховатостъ эритроцитов.
При окраске по Романовскому в эритроцитах можно наблюдать не только базофильную, но и азурофильную полихромазию и пунктацию. В этом последнем случае, благодаря избирательному поглощению азура, эритроцит или целиком окрашен в красно-фиолетовый цвет (красная полихромазпя) или в нём обнаруживается красно-фиолетовая (красная) пунктация в виде отдельных точек или глыбок. Повидимому, азурофильная полихромазия возникает при растворении ядерной субстанции и хроматолизе, а азурофильная пунктация — при распаде ядра на отдельные, очень маленькие глыбки (кариорексис).
Того же происхождения и красная штриховатость эритроцитов, особенно подробно изученная Негели. Она выражается в наличии в эритроцитах отдельных красных (красно-фиолетовых) пятнышек и штрихов.
В норме красная полихромазия и пунктация эритроцитов не встречаются ни у взрослых животных, ни у молодых. Эти явления наблюдаются только при тяжёлых анемических состояниях.
б) Хроматиновая пылинка Вайдеирайха, тельца Говелл—Жоли и кольца Кабота в эритроцитах. Более крупные, сохранившие ещё остаток структуры, ядерные остатки в эритроците дают так называемые тельца Говелл—Жоли, хроматиновую пылинку Вайденрайха и кольца Кабота.
Хроматиновая пылинка Вайденрайха — это последний остаток хроматина ядра в виде тонкого, короткого штриха, зёрнышка, «пылинки», окрашивающейся в вишнёво-красный цвет по Романовскому. Предположение, что это остаток центрозомы, мало вероятно.
Тельца Говелл—Жоли — несколько более крупные ядерные обломки (хроматиновые глыбки), дающие характерные тинкториальные реакции хроматина. По Романовскому они окрашиваются в вишнёво-красный цвет, метилгрюнпиронином — в зелёный. Они окрашиваются также гематоксилином. Наличие этих телец указывает на не вполне закончившийся распад и растворение ядра и, следовательно, на юность красного кровяного тельца.
Кольца Кабота представляют, по-видимому, остатки ядерной оболочки или периферического слоя ядра, образующие замкнутые тонкие кольца, часто в виде цифры 8 или сложных петель. Они окрашиваются азуром в вишнёво-красный цвет.
По А. Н. Крюкову, «они суть патологические продукты, возникающие в результате необычного процесса энуклеации при помощи кариолиза и вакуолизации в противность нормальной центропетальной редукции ядра (Паппенгейм) или выталкиванию ядра (Максимов). Они являются выражением процесса созревания исключительно патологического (Феррата). Но в то же время служат симптомом регенерации и характеризуют недозрелость красного элемента».
Они появляются, и то не всегда, лишь при тяжёлых анемических и лейкемических процессах.
Изменения величины и формы эритроцитов. Изменения величины и формы эритроцитов, особенно грубые и значительные, сигнализируют о дегенеративных изменениях в кроветворной системе.
К таким изменениям принадлежат:
а) Анизоцптоз — появление в сосудистой крови эритроцитов различного, не типичного размера. Формы, большие чем обычный эритроцит (нормоцит), называются макроцитами, формы меньшие — микроцитами. Эритроциты ненормальных размеров возникают иногда из соответствующих материнских клеток — макро- и микроэритробластов. Чаще, однако, они образуются при сморщивании или «набухании» нормоцитов.
Слабый анизоцитоз не обязательно связан с дегенерацией красного костного мозга. Он обычен у очень молодых сельскохозяйственных и, особенно, лабораторных животных.
Сильно выраженный анизоцитоз — всегда признак дегенерации эритропоэтической системы.
б) Пойкилоцитов — появление в сосудистой крови эритроцитов ненормальной, дегенеративной формы. Они могут быть похожи на грушу, гимнастическую гирю, бисквит или имеют своеобразные длинные отростки. Края пойкилоцитов часто неровные, зубчатые или гофрированные.
Выступы эритроцитов могут отшнуровываться, получаются маленькие округлённые обломки — шистоциты. Такое отшнуровыванпе, смотря по своему характеру, называется плазморексисом и плазмо-шизом.
Крупные шистоциты легко смешать с микроцитами. Однако у последних всегда имеется типичная, более бледная окрапшваемость центра клетки, чего нет у шистоцнта.
По А. Н. Крюкову, «пойкилоцитоз можно рассматривать, как дальнейшую дегенеративную ступень анизоцитоза. Пойкилоциты и шистоциты возникают на периферии, но для их происхождения, повиди-мому, требуется продукция костным мозгом весьма мало устойчивых элементов, легко поддающихся изменению под влиянием изменившейся в физико-химическом отношении кровяной плазмы».
в) Анизохромия — ненормально слабая или слишком сильная окрашиваемость эритроцитов (гипо- и гиперцитохромия). В основе их лежат, несомненно, колебания насыщенности эритроцита гемоглобином. В случаях резко выраженной г и п о х р о-м и и центр эритроцита почти или совсем не окрашивается, — возникают так называемые кольцевидные формы эритроцитов. Это особенно характерно для хлороза. Гипохлороз не всегда ведёт к обеднению крови гемоглобином. Иногда (чаще временно) недостаточная насыщенность эритроцитов гемоглобином может компенсироваться повышенным их количеством — поли-цитемией. Гиперхром и я особенно характерна при пернициозной анемии. (Но, например, при ни-кроцитарной гиперхромной анемии гиперхромия связана с утолщением клеток за счёт уменьшения их диаметра.)
г) Полулунные тела. Резко выраженной дегенеративной формой эритроцитов являются полулунные тела. Это бледные, почти бесцветные диски, размером в 10—15 µ а более, ограниченные бледно-фиолетовым слоем. У очень больших полулунных тел этот слой весьма узок. Разорвавшиеся полулунные тела дают серповидные формы, нередко с изогнутыми, как бы извивающимися концами.
По А. Н. Крюкову, эти образования можно рассматривать «как происходящие в результате процесса физиологической инволюции нормальных эритроци-тов, так как они встречаются в значительном количестве у совершенно здоровых индивидуумов». Образование полулунных тел происходит таким образом, «что эритроциты делаются бледнее и метахроматич-ными, далее вакуолизируются, вакуоля в эритроците увеличивается, субстанция же эритроцита окружает эту вакуолю серповидно, причём одновременно сильно увеличиваются размеры инволюционной формы.
В дальнейшем, вследствие разрыва стенки вакуоли, получаются свободные серпы или полулуния. Действительно, подобные формы весьма нередко приходится видеть в крови, не обнаруживающей дегенеративных признаков».
Метгемоглобинемические внутренние тельца в эритроцитах. При дегенерации эритроцитов под влиянием таких кровяных ядов, как фенилгидразин, нитробензол, пиридин, в эритроцитах возникают внутриклеточные метгемоглобиновые образования — так называемые тельца Эрлиха — Гейнца.
При супровитальной окраске метилвиолетом они окрашиваются в интенсивный синий цвет, а нильсульфатголубая окрашивает их в зеленовато-синий цвет. Они избирательно окрашиваются кислыми красками.
Обычно в эритроците находится одно тельце Гейнца. Оно расположено или центрально, или более или менее эксцентрично, а иногда даже выпячивается наподобие клювика за контуры клетки.
Возможно, что тельце образовано не из чистого гемоглобина: кроме метгемоглобина (или, быть может, другого очень стойкого деривата гемоглобина), в нём находили липиды, связанный с белками диаминофосфатид, немного холестерина. С несомненностью доказано присутствие в тельцах железа и пиррольных колец. Тельца Эрлиха — Гейнца химически очень стойки, — они не растворяются в пирогаллоле, воде, эфире и бензине и противостоят действию сапонина.
Общая оценка регенеративных и дегенеративных изменений эритроцитов. Классификация патологических изменении красной крови. А. Н. Крюков делает следующий прекрасный анализ взаимоотношений регенеративных и дегенеративных изменений в красной крови:
«При сколько-нибудь выраженном малокровии картина крови даёт одновременно регенеративные и дегенеративные изменения эритроцитов. Как среди первых, так и среди вторых имеются градации, которые дают возможность судить о степени поражения кроветворительного аппарата, о тяжести заболевания. Наиболее лёгкая степень регенерации определяется полихроматофилией эритроцитов, как выражением ускоренной эритропоэтической деятельности костного мозга. Более повышенная функция сопровождается появлением базофпльной пунктации» (она имеет место и у ядерных эритроцитов птиц. — В. Н.), «далее — эритроцитов с тельцами Жоли, ещё далее — нормобластов. Появление мегалобла-стов будет указанием на гиперфункцию, на энтдиф-ференциацию кроветворительной ткани, когда нормальная регенерация уже становится недостаточной. Точно так же по дегенеративным изменениям эритроцитов можно судить о тяжести процесса. Я вления гипохромии и анизоцитоза будут менее значительными изменениями, чем пойкилоцитоз и шистоцитоз, где деформируются и разрушаются эритроциты. Базируясь на степенях обоего рода изменений в эритроцитах, можно лишь до известного предела строить масштаб анемического состояния, потому что существуют и такие формы малокровии, где, несмотря на незначительные морфологические изменения в крови, тем не менее тяжесть страданий безмерна, благодаря арегенеративному состоянию кроветворительного аппарата. Точно так же стремления конструировать специфические картины эритроцитарных изменений, которые бы характеризовали определённые болезненные формы, оказываются по существу несостоя тельными и возможны только в узких траницах. Так, центральная гипохромия присуща хлорозу, гиперхромия и мегалобластоз — пернициозной анемии. Однако, и другие болезненные процессы могут протекать с этими картинами. Если регенеративная картина крови есть отображение того, что происходит в кроветворительной ткани, то дегенеративные изменения эритроцитов являются в результате воздействия вредных влияний на эритроциты в периферической крови, а также следствием непосредственного отравления кроветворительной ткани».
«...Действительная картина крови есть симптом регенеративного и дегенеративного взаимодействий».
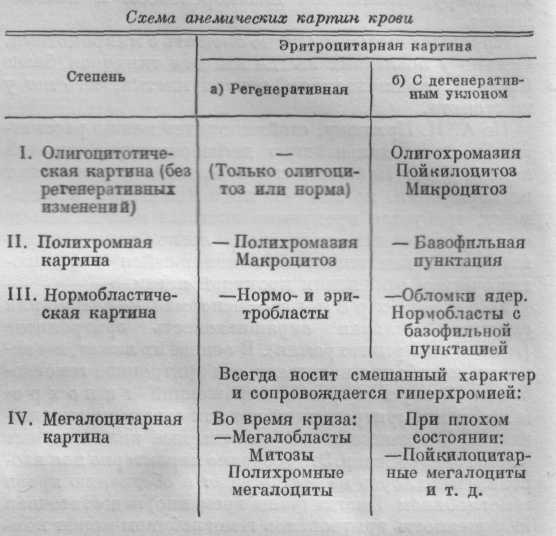
Различные степени патологических изменений крови часто систематизируют в такие четыре категории.
Предварительная стадия. Раздражение (достаточно простого уменьшения количества, благодаря потере крови) вызывает немедленное прямое поступление в кровь резервных клеток (при более сильной степени раздражения — нормальных юных форм) вследствие хемотаксиса или, что более вероятно, вследствие васкулярной гиперемии, быть может регулируемой вегетативной нервной системой, — кратковременная картина крови при раздражении.
1. Скрытая регенерация. Костный мозг в состоянии начинающейся гипертрофии. На периферии обыкновенно находят значительное увеличение числа пластинок и умеренный лейкоцитоз. Выраженные юные формы ещё отсутствуют. В норме непродолжительная промежуточная стадия (2— 3 дня), — псевдоапластические или олигоцитотические картины крови (степень 1а).
2. Простая регенерация. Увеличение полихромазии и её подвидов — признак усиленной, ускоренной деятельности кроветворных органов (гипертрофия костного мозга); при наличии токсического фактора — базофильная пунктацпя, — полихроматическая картина крови (степень IIа).
3. Усиленная регенерация. Резкая полихромазия, юные формы большей величины (макроцитоз), общий анизоцитоз вследствие усиленного образования и поступления в кровь незрелых, отчасти ядросодержащих элементов (нормо- и эритробласты): костный мозг в общем гипертрофирован, в состоянии прогрессирующего красного перерождения (метаплазия); при наличии токсического фактора — обрывки ядер, — нормобластическая картина крови (степень IIIа).
4. Гиперрегенерация. Общее нарушение образования эритроцитов и поступление в кровь действительно новообразованных (изменивших форму или «эмбриональных», богатых гемоглобином, гиперхромных) юных форм: мегалобластов, мегалоцитов и вообще всех дегенеративных форм, указывающее на нарушение нормальной регенерации (прогрессирующая мегалобластическая гиперплазия костного мозга),— мегалобластическая (пернициозная) картина крови (степень IV. а и б).
Н. Д. Стражеско и Д. Н. Яновский утверждают,
что нарушения нормальной регенерации при мегалобластозах нет и что при гиперхромных анемиях типа Бирмера одновременно производятся как нормоциты, так и мегалоциты.
Наблюдающаяся при различных степенях патологических изменений картина красной крови может быть представлена в виде следующей схемы.
НОМЕНКЛАТУРА ГЛАВНЫХ ЭРИТРОЦПТАРНЫХ КАРТИН КРОВИ
Макроцитоз: много больших клеток (макроцитов).
Микроцитоз: много ненормально малых эритроцитов (микроцитов).
Мегалоцитоз: наличие мегалобластов в мегалоцитов.
Анизоцитоз: неодинаковая величина эритроцитов, особенно наличие макроцитов.
Пойкилоцитоз: эритроциты неправильной формы.
Шистоцитоз: наличие в мазке обрывков эритроцитов (шистоцитов).
Полихромазия: присутствие в мазке полихроматофилов вообще.
Базофилия: присутствие в мазке базофильных эритроцитов. То же — для базофильной пунктации,
Олигохромемия, олигохромазия: бледная окраска эритроцитов, определяемая уменьшенным содержанием в них гемоглобина или, гораздо реже, утончением («распластыванием») эритроцитов.
Гиперхромазия: повышенная насыщенность эритроцитов гемоглобином, отсюда — более интенсивная их окрашиваемость. Повышение цветного индекса крови.
Олигоцитемия: уменьшенное количество красных кровяных телец, узнаваемое на равномерном хорошем мазке по их редкому расположению.
Гиперглобулия: повышенное количество клеток. На мазке — очень тесное расположение эритроцитов.
ХАРАКТЕРИСТИКА ОСОБЕННОСТЕЙ КРОВЯНЫХ ТЕЛЕЦ
И КАРТИНЫ КРОВИ СЕЛЬСКОХОЗЯЙСТВЕННЫХ
И ЛАБОРАТОРНЫХ ЖИВОТНЫХ
Лошадь
Эритроциты довольно крупные (средний диаметр 5,6—5,8 µ), мало варьирующие в размерах. У верховых лошадей эритроциты несколько крупнее, у шаговых пород относительно мельче. Количество эритроцитов у скаковых пород заметно больше, чем у шаговых.
Общий вид мазка крови лошади характерен склеиванием эритроцитов в длинные цепочки, которые на толстом мазке пересекаются друг с другом и образуют подобие грубой, неправильной сетки или решётки. Только на конце мазка обычно удаётся найти красные кровяные тельца, лежащие поодиночке.
Полихроматофилы и ретикулоциты встречаются в норме очень редко (менее 1%). Ещё реже наблюдаются пойкилоциты и тельца Жоли.
Наиболее характерной особенностью крови всех однокопытных и, в частности, лошади является структура эозинофилов. Эозинофилы относительно весьма крупны (до 20—22 µ); зёрна их исключительно велики (2—3 µ в диаметре) и до такой степени густо наполняют цитоплазму, что совсем закрывают её. Лишь очень редко бывают видны небольшие участки розовато-серой или серовато-голубой цитоплазмы. Из-под гранул видны отдельные участки ядра; однако из-за массы эозинофильных зёрен форму ядра уловить почти не удаётся. Поэтому невозможно или почти невозможно установить стадию зрелости ядра эозинофила. Лишь изредка у лошадей попадаются сравнительно небольшие эозинофилы с малым количеством крупных зёрен.
Тесное расположение гранул ведёт к их частичному сплющиванию; наряду с круглыми, попадаются зёрна угловатые, иногда сильно вытянутые в длину.
Цвет зёрен в эозинофилах лошади не яркокрасный. а скорее малиново-красный, более бледный, чем у эозинофилов других животных. При хорошей окраске зёрна кажутся удивительно красиво мутно-просвечивающими. Пространства между зёрнами обычно имеют цвет самих зерен, но более бледный. Это просвечивает нижний слой гранул эозинофила.
Базофилы лошади тоже очень крупны (до 18—21µ в диаметре). Они очень легко деформируются. Особенно часто на мазках встречаются базофилы с лопнувшим ядром, окрашивающим всю цитоплазму в вишнёво-розовый цвет. Хорошо сохранившиеся и правильно окрашенные базофилы лошади очень красивы, с сиренево-голубой цитоплазмой и причудливо-извитым, нежной облачной структуры, розово-фиолетового цвета ядром. Гранулы базофилов крупны и вариируют в размерах в одной и той же клетке.
Форма ядра юных, палочкоядерных и даже сегментоядерных специальных гранулоцитов очень часто подковообразна. Сегментоядерные формы чаще всего имеют 3—4 сегмента, реже 2 пли 5.
По Максимову, зернистость специальных гранулоцитов лошади скорее оксифильна, чем нейтрофильна. "Настоящими нейтрофильными специальные зерна..., могут считаться..., например, у обезьяны, собаки, свиньи; у большинства же млекопитающих они должны быть названы амфофильными, так как красятся как кислыми, так и основными красками, причём в одних случаях проявляется большее сродство к первым, а в других — ко вторым. Первый случай встречается особенно часто и касается, например, сравнительно довольно грубых зёрен специальных гранулоцитов кролика и морской свинки, почему они здесь называются также ещё псевдоэозинофильными или более мелких зёрен тех же элементов у быка, овцы, лошади и т. д."
Моноциты имеют в большинстве случаев мало разветвлённое, компактное ядро и относительно бедны цитоплазмой.
Кровяные пластинки, в среднем, довольно велики (около 3 µ) и очень варьируют в размерах. Встречаются и карликовые формы (в 1 µ) и прямо гиганты (достигающие 12 µ). Пределы обычных колебаний размеров кровяных пластинок — от 1,8 до 6,6 µ.
Лимфоциты довольно часто имеют бобовидную форму ядра. Они бедны цитоплазмой. В ней иногда встречаются вакуоли (0,8—5,4%), даже у здоровых животных. Азурофильная грануляция в цитоплазме встречается довольно часто (до 6,1 % у малых и до 14,3% у больших лимфоцитов).
Изредка в норме встречаются плазматические клетки.
Осел
Морфологически кровь осла весьма близка к крови лошади. Диаметр красных кровяных телец колеблется между 5,41 и 6,7 µ, т. е. они несколько мельче, чем у лошади.
Гранулы эозинофилов мельче, чем в эозинофилах лошади. Они не всегда заполняют всю цитоплазму, и между зёрнами часто встречаются голубые цито-плазматические промежутки. Гораздо лучше различима форма ядра.
Базофилы мельче эозинофилов и грануляция их менее крупная, чем базофилов лошади.
Ядро моноцитов компактно, редко образует короткие, округлые лопасти.
Лимфоциты, в противоположность лимфоцитам лошади, имеют чаще всего округлые ядра, без заметных вдавлений или выступов. Иногда, при быстрой фиксации, у лимфоцитов (и у моноцитов) бывают заметны псевдоподии. Цитоплазма скудна (даже и у больших лимфоцитов).
Верблюд
Наиболее характерной особенностью крови верблюда является эллиптическая форма эритроцитов, которые окрашиваются обычно довольно интенсивно, со слабо заметным побледнением в центре. Эритроциты лежат на мазке очень густо, соответственно высокому содержанию их в крови (11 млн. в 1 мм3). Размеры эритроцитов мало варппруют. Их короткая ось равна в среднем 4,0 µ., длинная 7,35 µ. Эллипсоидная (овальная) форма очень правильная. Деформации крайне редки.
Белые кровяные тельца имеют относительно малые размеры, особенно базофплы, диаметр которых в 2 раза меньше, чем у базофилов лошади (всего 8—10,5 µ).
Эозинофилы несколько крупнее, с довольно большими (1,0—1,8 µ.) круглыми гранулами, рассеянными среди ясноголубой цитоплазмы. Форма ядра видна очень хорошо, так же как и у эозинофилов всех остальных приведённых в атласе животных, за исключением однокопытных. Зёрна не «подавляют» ядра.
Ядро моноцитов иногда значительно извито, образует своеобразные петли или довольно длинные лопасти. Изредка в цитоплазме моноцитов попадаются крупные кусочки (тельца), окрашивающиеся как ядро. Возможно, что это — отшнуровавшиеся участки лопастей ядра.
Крупный рогатый скот
Средний размер эритроцитов 5,1 µ (пределы вариаций — от 4,4 до 7,7 µ). Чаще всего размер эритроцитов колеблется в пределах от 4,4 до 5,5 µ.
Среди эритроцитов взрослых животных в норме очень редко попадаются ретнкулоциты. Ещё реже встречаются тельца Жоли. Пойкилоцитоз, полихромазия и эритробласты при физиологической норме или не встречаются совсем, или исключительно редки. Породные колебания количества эритроцитов у крупного рогатого скота относительно невелики (по сравнению, например, с количеством эритроцитов у лошадей).
Эозинофилы коров довольно велики; их цитоплазма наполнена очень ярко красящимися зёрнами, средней или довольно большой величины (0,5 µ). Иногда гранулы лежат в ясноголубой цитоплазме довольно редко. Количество эозинофилов обычно значительно выше, чем v других млекопитающих (в норме 6,0— 8,0% и более).
При депрессии кроветворения в крови коров можно найти карликовые (размером со средний и даже с малый лимфоцит) эозинофилы, цитоплазма которых густо наполнена зёрнами.
Специальные гранулоциты крупного рогатого скота сравнительно велики (больше, чем у всех других сельскохозяйственных млекопитающих). Зернистость слегка оксифильна, выражена хорошо.
Ядро часто значительно расчленено — до 5—8 сегментов.
Бросается в глаза большой размер агранулоцитов.
Моноциты в преобладающей своей части имеют значительно расчленённое, лопастное или лентообразное ядро. Цитоплазма обильна. Мельчайшая азурофильная зернистость около ядра выражена хорошо.
У телят и даже у взрослых коров в крови встречаются большие лимфоциты. Цитоплазма лимфоцитов очень обильна, в ней довольно часто встречаются азурофильные гранулы (5,1 % у малых форм и 12,6% у больших). Очень редко в цитоплазме попадаются весьма крупные азургранулы (до 1,5 µ и более).
Плазматические клетки изредка встречаются в крови и при физиологической норме.
Средний размер кровяных пластинок—около 2,6 µ, Пределы колебаний 1,1—4,9 µ.
В мазке встречается сравнительно много кровяных пластинок, часто слипающихся в большие кучки.
Овца
Очень характерны маленькие, густо расположенные в мазке, эритроциты. Их средний диаметр 4.3µ при обычных колебаниях от 3,5 до 4,5 µ. Однако, встречаются и очень маленькие формы (до 2,5 µ.) и большие (до 7,0 и даже 8,3 µ.). Вообще для овцы обычен небольшой анизоцитоз.
Густота расположения эритроцитов в мазке определяется очень большим их количеством .6—13 млн. в 1 мм3) в крови; это компенсирует их малый размер.
Эозинофилы отличаются большим диаметром (9,9— 17,6 µ); они содержат округлые, иногда неправильной формы, довольно крупные гранулы (0,5—1,0 µ). Зёрна рыхло наполняют обычно хорошо заметную, ясноголубую цитоплазму.
Ядро эозинофилов (как и специальных гранулоцитов) вызревает по кольчатому типу. Поэтому часты формы ядра в виде целого кольца (у палочкоядерных) пли разорванного кольца (у сегментоядерных клеток).
Много эозинофилов со значительной сегментацией ядра (3—5 сегментов).
Базофилы немного меньшего размера, чем эозинофилы (в среднем 12,1 µ при колебаниях в 11,0—13,2µ). Ядро базофилов, особенно при плохой фиксации, очень часто деформировано (лопается). Гранулы крупные, мало варьирующие в размерах, очень темно-окрашивающиеся.
Чрезвычайно характерна большая сегментированность ядер зрелых специальных гранулоцитов. Очень часты формы с 8—10 и более сегментами. Для овцы это норма, а не патологическая форма. Размер специальных гранулоцитов относительно велик, хотя п меньше, чем у крупного рогатого скота. Зернистость по Клинебергеру и Карлу нейтрофильна, по Максимову — с большим сродством к кислым краскам.
Моноциты велики; ядро их сильно расчленено на лопасти, иногда соединяющиеся между собой лишь тонкими мостиками.
У больших и средних лимфоцитов хорошо видна цитоплазма. В ней изредка встречаются вакуоли. Азургранулы в 5,2—6,3% лимфоцитов.
Кровяные пластинки очень малы — 1,9—2,4 µ в диаметре.
Кровь козы по своей морфологии очень близка к крови овцы (особенно лейкоциты). Отличительная особенность эритроцитов козы — их малая осмотическая резистентноетъ. Поэтому мазкп часто получаются со звёздчатой формой красных кровяных телец. Весьма част анизоцитоз. Даже у вполне клинически здоровых животных в крови встречаются пой-килоциты, ретикулоциты, полихроматофилы и изредка даже тельца Жоли. Это указывает на некоторую физиологическую раздражённость эритропоэза, характерную для коз.
Лейкоциты морфологически очень сходны с белыми кровяными тельцами овец.
Свинья
Эритроциты довольно крупные (средний диаметр 5—6 µ). В красной крови свиней в норме встречаются полихроматофилы и ретикулоциты, «кольцевые» формы эритроцитов и даже эритробласты. Сильнее всего это выражено у поросят. Витально гранулированные эритроциты у взрослых евнней встречаются в малом количестве (3—4 на 1 000 нормоцитов); у поросят их количество доходит до 1,1—13,8%.
Белые кровяные тельца не имеют особенно резких видовых признаков.
Базофилы характерны крупными, темноокрашенны-ми гранулами. Эозинофилы невелики, правильной округлой формы. Они имеют яркие, довольно крупные верна (0,5—1,0µ в диаметре). Сегментированность ядра невелика (обычно 2, реже 3 сегмента).
Ядро моноцитов мало расчленено, обычно вытянутой или слегка скрученной формы. Изредка в цитоплазме моноцитов встречаются вакуоли.
Клетки раздражения редки.
В лимфоцитах попадаются азургранулы (4% малых лимфоцитов и 5,8% больших).
Кровяные пластинки относительно малы (около 2,0 µ)-
Количество лейкоцитов в крови довольно велико (10—15 тыс. в 1 мм3).
Собака
Эритроциты, по сравнению с эритроцитами остальных домашних млекопитающих, велики. Их средний диаметр равняется 7µ, при колебаниях от 5 до 9 µ.
На окрашенных препаратах центральная часть эритроцитов и при физиологической норме почти бесцветна («кольцевая» форма).
У взрослых собак в крови встречаются в незначительном количестве (2—3 на 1 000) полихрома-тофильные и витально гранулированные эритроциты и остатки ядра в эритроцитах (тельца Жоли). Очень редко попадаются нормобласты. Имеется слабо выраженный анизоцитоз.
Базофилы крови собак характерны довольно чётко выраженными контурами ядра, правильно круглыми, с резкими границами, сравнительно немногочисленными, неодинаковой величины гранулами и сиренево-розовым цветом цитоплазмы. Базофилов в крови очень мало.
Ядро эозинофплов мало расчленено. Гранулы среднего размера — 0,5—1,0µ в диаметре.
Вызревание ядра специальных гранулоцитов происходит по кольцевому типу.
Ядро моноцитов чаше всего колбасовидное, со своеобразными конволютами на концах. Реже встречаются лопастные формы.
Лимфоциты фиксируются с довольно крупными псевдоподиями. Цитоплазма, даже у больших лимфоцитов, развита умеренно. В ней изредка попадаются вакуоли.
Плазматические клетки встречаются и при физиологической норме.
При некоторых патологических изменениях (инфекциях и, особенно, интоксикациях) в специальных гранулоцитах бывают тельца Деле.
Кошка
Эритроциты довольно велики: средний диаметр 5,9 µ, при крайних колебаниях от 3,2 до 7,5 µ. Довольно часты кольцевые формы красных кровяных телец.
Полихроматофплы и нормобласты в крови при физиологической норме крайне редки.
Базофилы очень велики, с тёмной, розовато-фиолетовой цитоплазмой и крупными, но немногочисленными гранулами. Они очень редко попадаются в крови кошки, и потому Максимов считал, что базофилов у кошки нет.
Эозинофилы средней величины, с округлыми, иногда несколько неправильной формы гранулами. Автор никогда не встречал эозинофилов кошачьей крови с палочковидными гранулами, как это утверждают Вирт, Клинебергер и Карл. Гранулы довольно велики (1,0—1,5 µ). Размеры их значительно варьируют.
Специальные гранулоциты характерны чрезвычайно мелкими зёрнышками в цитоплазме. Контуры ядра на всех стадиях зрелости своеобразно округлены, чётки и изящны. Вызревание ядра происходит, по-видимому, по кольцевому типу.
Ядро моноцитов очень компактно и почти не образует лопастей.
Кровяные пластинки довольно велики (2—4 µ). Пределы колебаний их размеров очень значительны: от карликовых, в 0,8 µ, до гигантских форм, доходящих до 10µ.
Кролик
Эритроциты крупные (в среднем 6,0—6,5—6,8 µ в диаметре). В них очень слабо выражено ослабление окраски в центре. Полихромазия заметно выражена даже при физиологической норме (до 1 %). Ретикулоциты очень часты (до 8% эритроцитов у взрослых животных и 20—80% у новорождённых и в первые месяцы развития). Изредка встречаются нормобласты. Красная кровь вообще весьма лабильна.
Эозинофилы с крупными гранулами (1,5 µ), очень густо расположенными в цитоплазме.
Специальные гранулоциты кролика весьма своеобразны. Их зернистость гораздо крупнее, чем у нейтрофилов других животных, и красится комбинацией красок по Романовскому в яркокрасный цвет, т. е. эозинофильна (оксифильна). Поэтому специальные гранулоциты кроликов получили название псевдоэозинофилов. Форма зёрен неправильно округлая, порою угловатая.
Одинаковая окраска и почти одинаковые размер и форма псевдоэозинофилов и эозинофилов кролика очень затрудняют диференциацию этих клеток. Недавно (1945 г.) Якоби предложен для этой цели следующий специальный метод окраски.
Свежеприготовленный, высушенный на воздухе мазок крови кролика фиксируют спиртом с формалином и затем в течение 5—10 минут окрашивают 0,05-процентным водным раствором
2—6—-дихлорфенолиндофенола (4 части) и 0,5% раствора нейтрального красного (1 часть). К каждым 5 см3 этой смеси прибавляют перед окраской 4 капли перекиси водорода.
После быстрой промывки — высушить фильтровальной бумагой и немедленно смотреть в микроскоп под иммерсией.
При такой окраске протоплазма эозинофилов плотно набита сильно окрашенными большими сферическими гранулами (1,5 и в диаметре); почти каждая гранула имеет тёмную пурпурно-чёрную периферию и немного более светлую внутренность, цвет которой колеблется между темнопурпуровым и грязносероголубым. У псевдоэозинофилов же очень скудные, отдельные темнопурпурные гранулы (диаметром 0,5 µ), скорее овоидной и жезлообразной формы.
Ядра псевдоэозинофилов и отдельные их сегменты обычно отличаются закруглённостью форм; «мостики» и «нити» между сегментами или довольно толсты или почти невидимы, что создаёт в этом последнем случае впечатление разобщённых сегментов.
Моноциты и лимфоциты кроликов не имеют характерных видовых особенностей.
В крови кроликов, по Салин и Вирту, встречаются иногда очень крупные, напоминающие порою