Методические рекомендации к определению и выведению гемограммы у животных
Унитарная теория кроветворения видна на схеме, заимствованной у Максимова (цветная таблица 64).
Все клетки в этой схеме размещены по линиям, которые показывают их постепенное днференциальное развитие в определённом направлении, начиная от родоначальных индиферентных больших лимфоцитов (1—3) и кончая соответствующими зрелыми формами циркулирующей крови (11, 12, 13, 23, 27, 34). Наиболее сильны позиции унитаристов в области сравнительной гематологии и эмбриологии.
Полифилетические теории опираются, главным образом, на данные клинической диагностики.Дуалисты (Негели, Шридде) резко обособляют миэлоидную и лимфоидную ткани. Они считают диференциацию этих тканей зашедшей так далеко, что возникновение клеток одной системы из родоначальных клеток другой совершенно невозможно ни в физиологических, ни в патологических условиях. Далёким отголоском когда-то существовавшей связи и единства этих двух систем является у взрослых млекопитающих только индиферентная мезенхимная клетка.
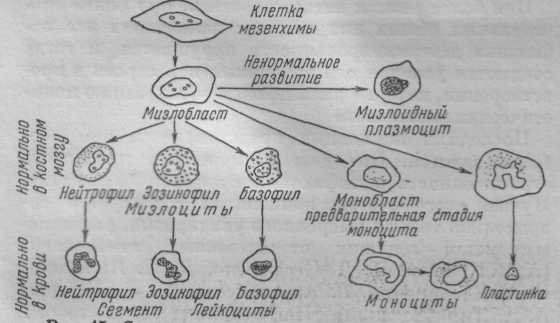
Ниже приводится дуалистическая схема кроветворения по Негели (из А. Егорова) (рис. 14, 15, 16).
Широко распространена среди гематологов умеренно унитарная или монофилетически-дуалистическая теория генеза кровяных клеток (Крюков, Стражеско, Паппенгейм). По этой теории, не толькс примитивный гистиогенный элемент (индиферентная клетка мезенхимы), но и следующая стадия его развития — лимфоидоцит (гемоцитобласт) является связующим звеном и общей родоначальной клеткой миэлоидной и лимфоидной систем. Это узкопротоплазменная, лимфоцитоподобная клетка с нежной и тонкой структурой ядра («шагреневая кожа»). Лимфоидоцит (гемоцитобласт), в зависимости от различных
условий развития, может диференцироваться то в лимфобласт (родоначальную клетку для лимфоцитов), то в лейкобласт (родоначальную клетку миэлоидного ряда клеток). Гетерогенное развитие начавшего диференцироваться лимфоидоцита уже невозможно.
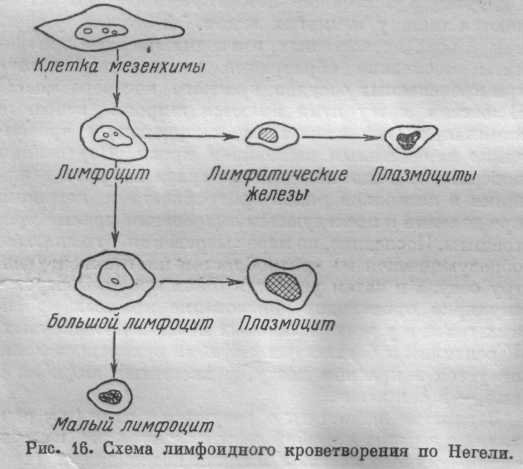
Генез крови по теории умеренного унитаризма виден из схем А. Н. Крюкова и Н. Д. Стражеско и Д. Н. Яновского (рис. 17 и цветная таблица 63).
А. Н. Крюков следующим образом характеризует пограничное положение умеренного унитаризма по отношению к унитаризму и дуализму:
«По
этой теории,
тканевое
кроветворение
идёт из примитивного
гистиогенного
элемента всегда
через стадию
лимфоидоцита.
Лимфоидоцит
одинаково
является
источником
неоплазмы
миэлоидной
ткани и повсеместных
лейкемических
лимфоцитов.
Лимфоидоциты
выступают на
сцену при
образовании
круглоклеточного
экссудата при
воспалении.
Они являются
также первыми
клетками в
эмбриональном
кроветворении.
Лимфоидоцит
обладает
способностью
диференцироваться
в зернистые
лейкоциты,
лимфоциты и
эритроциты.
Эта теория
проводит
разграничение
меж ду различными
лимфондными
элементами,
различая между
ними миэлоидные
клетки и лимфатические
в
среди
тех и других
выделяя особые
типы — лимфои-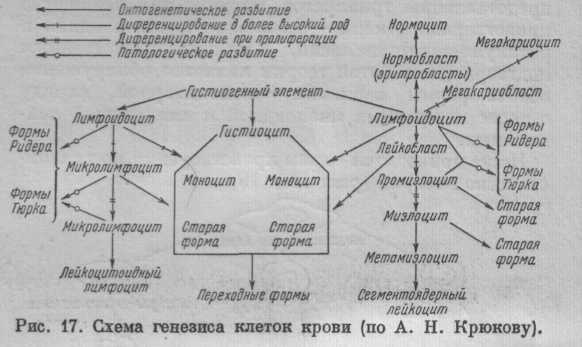
доцит, лейкобласт или лимфоидоцит с ядром миэло-цита, макролимфоцит, лимфоцит. В то время как унитаризм все различия между этими лимфоидными элементами отрицает и считает их лишь различиями функционального значения, дуализм известным морфологическим различиям придаёт чрезмерное значение, как это существует в вопросе о материнских клетках. Умеренный монофилетизм оценивает эти различия менее высоко там, где они менее выражены, как в вопросе о материнских клетках, и здесь ближе стоит к унитаризму, но приближается к дуализму в вопросе о различиях между мизлобластами и лимфоцитами. Унитаризм считает лимфоцит эмбриональной клеткой, дуализм — высоко диференци-рованным элементом, эквивалентом полиморфному лейкоциту; умеренный унитаризм, признавая малые лимфоциты за зрелые элементы, тем не менее не ставит их на одну доску с полиморфными гранулоци-тами, так как эти последние уже потеряли способность к делению, которая принадлежит лимфоцитам в полной мере. Дуализм противополагает миелоидную ткань лимфоденоидной, унитаризм отрицает обособленность кроветворных систем, умеренный монофилетизм считает что обе ткани суть различные формы развития одного и того же эмбрионального лимфоидоцита, через который они находятся между собою в родственных отношениях». «Лимфоциты по этой теории образуются и в костном мозгу, как особый парамиэлоидный тканевый компонент, первоначально возникший всё-таки из этой же общей материнской клетки, специфицировавшейся в костном мозгу в направлении гранулопластики. При патологических же условиях, как это бывает при сепсисе, развитие лимфоидоцитов в гранулоциты сильно страдает, и тогда созревание может проявляться в сторону лимфопластики, среди скудных миэлоидных элементов обнаруживаются в значительном количестве лимфоциты, что является для костного мозга уже феноменом патологического характера» (Крюков).
Наконец,
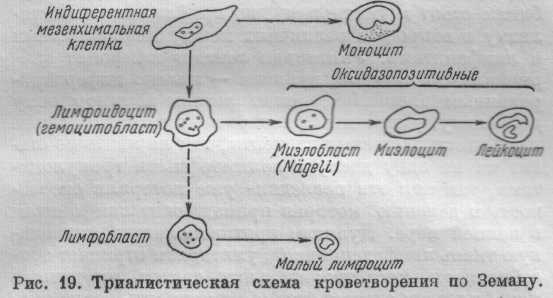
по триалистической
теории кроветворения,
имеются три
родоначальные
формы кровяных
клеток, исходные
для возникновения
лимфоцитов,
моноцитов и
гранулоцитов.
Гранулоциты
возникают в
красном костном
мозгу, лимфоциты
— в лимфатической
системе и селезёнке,
а моноциты в
ретикуло-эндотелиальной
системе. Таким
образом, по
представлению
триалистов,
имеются три
различные
кроветворные
ткани — миэлоидная,
лимфоидная
и ретикуло-эндотелиальная.
Наиболее
существенным
подтверждением
этой теории
является обнаружение
особой формы
лейкемии —
моноцитарной,
наряду с ранее
известными
миэлоидной
и лимфоидной
лейкемиями.
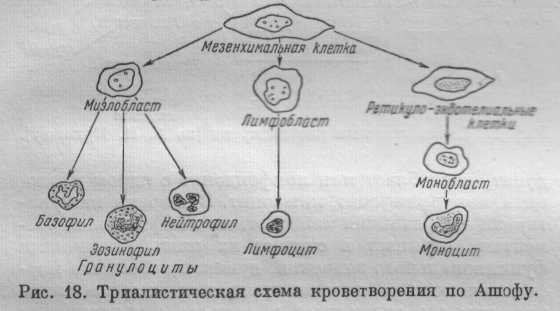
Ниже приводятся схемы кроветворения по триалистической теории (рис. 18 и 19).
Новую концепцию, пытающуюся преодолеть крайности и некоторую догматичность основных теорий кроветворения, выдвигает А. А. Заварзин (1932 г.).
По его мнению, «... такое обилие противоречивых теорий указывает, несомненно, на неправильный подход к самой постановке вопроса. Эта неправильность, по нашему мнению, состоит в том, что авторы множественных теорий пытаются приписать родоначальным формам абсолютную детерминированность, а авторы монистических воззрений — абсолютную лабильность (неустойчивость). Между тем, весьма вероятно, что для камбиальных элементов тканей внутренней среды не существует ни абсолютной детерминированности, ни абсолютной лабильности.
Есть много данных, говорящих о том, что в известных условиях кроветворный камбий детерминирован лабильно. Лабильная детерминированность обусловливает те факты, которые лежат в основе всех множественных теорий кроветворения.
При более резких вмешательствах, при более значительных общих или местных изменениях эта лабильная детерминированность нарушается, и тогда создаются условия для различных перестроек в кроветворении, которые дали повод к обоснованию монистических воззрений».
Последняя концепция представляется нам особенно важной. Она дает возможность преодолеть ограниченность полифилетизма и крайнего монизма. Лучше всего с этой концепцией согласуется современная теория умеренного унитаризма, развиваемая рядом ведущих отечественных гематологов (А.Н.Крюков, Н. Д. Стражеско, Д. П. Яновский, И. А. Кассирский, Г. А. Алексеев, Б. Л. Алёшин, А. Д. Тимофеевский). На позициях этой теории стоит и автор настоящего атласа.
Картина кроветворения, представленная изложенными здесь теориями, наблюдается у млекопитающих. У птиц имеется существенное изменение, сводящееся, во-первых, к тому, что лимфоидная ткань рассеяна по всему организму гораздо более диффузно и настоящие лимфатические узлы встречаются лишь у немногих видов, во-вторых, у них, как у всех позвоночных, имеющих ядерные эритроциты, последние образуются исключительно внутри кровеносных сосудов красного костного мозга. В костном мозгу птиц имеются широкие венозные капилляры (так называемые синусоиды) с чрезвычайно замедленным движением крови. Внутренняя поверхность эндотелия этих сосудов покрыта лежащими в несколько рядов эритробластами, дающими при делении и последующем вызревании зрелые эритроциты. Последние, по мере вызревания, оттесняются образующимися из зритробластов клетками к центру сосуда и затем уносятся током крови. Экстраваскулярно происходит образование красных кровяных телец и у всех остальных низших позвоночных. У рептилий и бесхвостых амфибий эритропоэз локализуется в красном мозгу, у хвостатых амфибий и рыб — в селезёнке.
Зернистые лейкоциты образуются у птиц (и у рептилий и высших амфибий) экстраваскулярно, в самой ткани костного мозга. У низших позвоночных (хвостатых амфибий и рыб) красного костного мозга нет и гемопоэз становится более диффузным, причём нет резкого разделения лимфоидной и миэлоидной тканей. Чрезвычайно мало известно о генезе тромбоцитов у птиц. По 'некоторым данным, они образуются из лимфоцитов, в виде особого самостоятельного вида клеток, по другим — они возникают из эндотелия. У млекопитающих же, повидимому, кровяные пластинки образуются из мегакариоцитов (гигантских клеток) красного костного мозга, путём отшнуровывания цитоплазмы (Райт).
КРОВЯНЫЕ ПЛАСТПНКИ МЛЕКОПИТАЮЩИХ И ТРОМБОЦИТЫ ПТИЦ И НИЗШИХ ПОЗВОНОЧНЫХ
Другим видом форменных элементов крови млекопитающих являются так называемые кровяные пластинки. Это маленькие тельца (от 1 до 3—4 µ в диаметре), с неправильными «рваными» краями и утолщением посредине. Каждая пластинка состоит из гиалоплазмы (гиаломер), образующей основу пластинки, и хромомера — зёрнышек, скопляющихся в её центре или, изредка, разбросанных по гиалоплазме. Гиалоплазма окрашивается по Гимза и по Палпенгейму в голубовато-серый цвет (иногда с ро-вовым оттенком). Зёрнышки хромомера окрашиваются азурофильно, в вишнёвый цвет.
В среднем 1 мм3 крови сельскохозяйственных млекопитающих животных содержит от 200 тыс. до 400 тыс. кровяных пластинок. Однако у отдельных видов имеются значительные колебания количества пластинок в крови. Размеры кровяных пластинок у некоторых животных (кролик, свинья) мало вариируют, у других же (особенно у лошади) вариации в величине весьма значительны: при среднем диаметре в 3 µ, попадаются и очень маленькие пластинки (до 1 µ) и прямо гиганты, достигающие 12 µ.
Кровяные пластинки не являются клетками. По-видимому, это осколки клеток, но происхождение их недостаточно ясно. Вероятнее всего предположение Райта, установившего, что гигантские клетки костного мозга — так называемые мегакариоциты, отшнуровывая выступы своей цитоплазмы, содержащие азурофильные зёрна, образуют кровяные пластинки. Исследования Райта были подтверждены рядом авторов. Однако Максимов считает кровяные пластинки остатками дегенерировавших и вытолкнутых из эритроцитов ядер.
Функциональное значение кровяных пластинок также не может считаться хорошо выясненным. Их способность быстро распадаться, слипаться друг с другом в плотные кучки, с возникновением вокруг таких кучек нитей фибрина при свёртывании крови говорит за активное участие кровяных пластинок в этом процессе. По некоторым данным, кровяные пластинки (а также и эндотелий сосудов) содержат тромбокиназу. Способность кровяных пластинок образовывать, при нарушениях кроветока, плотные сгустки ведёт нередко к закупориванию (тромбу) мелких кровеносных сосудов.
На препаратах кровяные пластинки чаще всего встречаются кучками, причём иногда границы отдельных пластинок исчезают. Опытный исследователь, изучая мазок крови, может отметить тромбопению (очень малое количество кровяных пластинок) и тромбоцитов (повышенное их количество).
Предполагается, что при тромбопении скорость свёртывания крови резко снижена.
В крови птиц и всех низших позвоночных, наряду с эритроцитами и лейкоцитами, встречается третий тип клеток — тромбоциты. Кровяных пластинок у них нет. Каковы филогенетические взаимоотношения между тромбоцитами птиц и низших позвоночных и кровяными пластинками млекопитающих, неизвестно.
Тромбоциты — это овальные (у амфибий веретенообразные) клетки с большими ядрами и сравнительно тонким слоем облегающей их цитоплазмы, которая только на полярных концах клетки скопляется в несколько большем количестве. В цитоплазме нередко видно (на концах клетки) несколько азурофильных зёрен. Иногда цитоплазма вакуолизирована (у гусей очень часто). Цитоплазма очень слабо окрашивается в нежноголубой цвет (иногда остаётся бесцветной). Однако границы её видны очень чётко. Ядро содержит мелкие, интенсивно окрашивающиеся глыбки хроматина.
Размеры тромбоцитов отдельных видов сельскохозяйственных птиц незначительно различаются. Так, у гуся средняя длина тромбоцитов равна 6,8µ, ширина 4,5µ; у курицы — соответственно 8,5 µ и 5,3 µ В 1 мм3 крови имеется от 25 до 70 тыс. тромбоцитов.
Функция тромбоцитов изучена ещё меньше, чем кровяных пластинок млекопитающих. На препарате они нередко собираются кучками, но клеточные границы при этом сохраняются.
По Мевесу, в препарате свежей крови тромбоциты очень быстро подвергаются некробиотическим изменениям. При этом они слипаются кучками, прилипают к стеклу, укорачиваются, но в то же время расширяются (набухают); цитоплазма, скопляясь на одной стороне клетки, образует всё более утончающиеся псевдоподии, превращающиеся в тончайшие лучи. В окружающей плазме вокруг таких тромбоцитов начинают образовываться нити фибрина. Всё это даёт основание предполагать, что функция тромбоцитов близка к функции кровяных пластинок млекопитающих, т. е. они играют существенную роль в свёртывании крови.
Образование тромбоцитов у птиц локализуется в красном костном мозгу. По одним авторам, они образуются из особых родоначальных клеток, по другим — из эндотелия сосудов.
КРАСНЫЕ КРОВЯНЫЕ ТЕЛЬЦА (ЭРИТРОЦПТЫ)
Количественно преобладающей клеточной формой нормальной крови позвоночных животных являются красные кровяные тельца — эритроциты. Обычно количество их в 1 мм3 крови исчисляется миллионами, в то время как кровяные пластинки y птиц и низших позвоночных—тромбоциты) исчисляются в том же объёме крови сотнями тысяч, а лейкоциты — тысячами.
Поэтому на мазках физиологически нормальной крови основной фон составляют густо лежащие друг около друга, окрашенные эозином в яркорозовый или медно-красный цвет эритроциты.
Красные кровяные тельца выполняют в организме исключительно важную функцию — перенос кислорода от лёгких к тканям. Это осуществляется благодаря содержанию в эритроцитах железосодержащего сложного белка — гемоглобина. Обычно в эритроцитах бывает 33% гемоглобина (соответственно 12—17% гемоглобина в цельной крови). Каждый грамм гемоглобина, переходя в оксигемоглобин, связывает 1,34 см3 кислорода, образуя с ним легко диссоциирующее химическое соединение.
Совокупность эритроцитов всей крови животного называется эритрояом. У лошади весом 500 кг эритрон состоит из 436,5 триллиона красных телец, общим объёмом в 14,4 л и содержит 6,76 кг гемоглобина. По мазку крови можно, при известном навыке, составить приближённое представление как о количестве эритроцитов по густоте расположения клеток на равномерно полученном мазке, так и о насыщенности их гемоглобином — по интенсивности окраски (методом Романовского) каждого отдельного эритроцита. Для подсчёта количества красных кровяных телец и для точного определения количества гемоглобина применяют специальные, методы исследования крови. Подробное описание этих методов дано в любом курсе физиологии животных. Картина красной крови при специальной окраске мазка особенно ценна тем, что она даёт возможность распознавать регенеративные и дегенеративные изменения в эритроцитах по разной интенсивности окрашивания их специфическими красками, а также по изменению формы и внутренней структуры эритроцитов.
А. НОРМОЦИТЫ
Картина красной крови физиологически нормального взрослого животного характеризуется безусловным преобладанием зрелых форм красных кровяных телец — нормоцигпов. Сравнительно очень редко среди нормоцитов, окрашенных по методу Романовского в типичный медно-красный цвет, попадаются и незрелые эритроциты — полихроматофилы, окрашенные в переходные цвета от ясно синего, типичного для юной формы, через сине-фиолетовый, до фиолетово-красного цвета, приближающегося к нормальной окраске зрелого эритроцита. Таких форм бывает не более 1—5 на 1 000 зрелых эритроцитов у коров и лошадей и несколько более у свиней, собак, морских свинок и крыс.
Нормоцит млекопитающих (за исключением верблюда и ламы) представляет собой круглую безъядерную, плоскую клетку, с утолщёнными краями и несколько вогнутым центром. Собственно, вернее даже было бы говорить не о клетке, а об остатке клетки, поскольку нормоцит лишён обязательной и важнейшей составной части клетки — ядра. (Поэтому для элементов красной крови млекопитающих лучше применять название «красное кровяное тельце», чем «эритроцит», хотя последнее очень широко распространено и имеет преимущество краткости.)
У верблюда и ламы нормоциты овальны.
В профиль нормоцит имеет вид бисквита. Форму нормоцита лучше представить в виде пластинки или диска с утолщёнными краями. По некоторым новым данным, эритроциты в циркулирующей крови имеют колоколообразную форму («шапочки») с вогнутым центром. На неокрашенном мазке красные кровяные тельца кажутся жёлтыми или зеленовато-жёлтыми, соответственно цвету гемоглобина в очень тонких слоях. Периферическая часть, как содержащая более толстый слой гемоглобина, окрашена интенсивнее.
При окраске по Гимза эритроциты окрашиваются в красивый розово-красный, а при окраске по Паппенгейму — в медно-красный цвет. Так как при этом избирательно окрашивается гемоглобин, то на периферии, в утолщённой части эритроцита, где гемоглобина больше, окраска выражена интенсивнее. В центре окраска несколько менее интенсивна, но, в норме, достаточно заметна. При нарушениях гемоглобино-образования, нормоциты окрашиваются атипично. Иногда резко ослаблена окраска только центральной части красного кровяного тельца. Тогда эритроцит кажется красным кольцом с просветом в центре, — так называемая кольцевая форма. Такие формы особенно типичны даже для физиологически нормальной крови собаки.
В других случаях количество гемоглобина падает настолько сильно, что весь эритроцит (но, конечно, в первую очередь его центр) окрашивается гораздо слабее нормального. Такие эритроциты называются гипохромными, а само явление — гипохромией.
Наконец, возможны случаи, когда эритроциты содержат больше гемоглобина, чем обычно. Такие эритроциты окрашиваются интенсивнее и называются гиперхромными (явление гиперхромии).
При изучении мазка с дополнительным подсчётом количества эритроцитов и определением количества гемоглобина можно установить очень важный показатель насыщенности каждого отдельного эритроцита гемоглобином — так называемый цветной индекс (показатель) крови.
Цветной показатель не может быть определен, даже весьма приближенно, по мазку крови. Казалось бы, интенсивность окраски красных кровяных телец эозином даёт основание для суждения о насыщенности эритроцитов гемоглобином. Однако это далеко не так. Густота окраски эритроцита зависит, кроме фактора интенсивности (концентрации гемоглобина), также и от фактора ёмкости (размеры эритроцита, его толщина). При некоторых анемиях (особенно при микроцитарной гиперхромной анемии) резко изменяется форма красных кровяных телец. Из плоских, относительно растянутых дисков они превращаются в толстые, гораздо меньшего диаметра, тельца. При этом значительно возрастает густота окраски таких, кажущихся более мелкими, эритроцитов. В действительности содержание гемоглобина в таких эритроцитах не изменяется или изменяется в гораздо меньшей степени, чем это представляется при рассматривании их в окрашенных мазках.
.Цветной показатель (У) обозначает не абсолютное содержание гемоглобина в одном эритроците, но некоторую пропорциональную абсолютному содержанию величину. Уровень гемоглобина в кровп дан в условных процентах по Сали. В норме цветной
показатель равен единице (У = 1,0). Число большее единицы указывает на избыток гемоглобина в эритроците (гиперхромия); цветной показатель меньше единицы указывает на пониженное содержание гемоглобина (гипохромия).
Цветной индекс для сельскохозяйственных п лабораторных животных нужно рассчитывать по следующей полной формуле:
NRxHb
J= AHbxR
где: J — цветной индекс; NR — нормальное для данного вида количество эритроцитов в 1 мм3 крови; NHb — нормальный для данного вида животных. Многие авторы считают, что в сосудах животного эритроциты имеют чашеобразную или даже колоколообразную форму (Геле, Вайденрайх, Крюков). Возможные прижизненные изменения
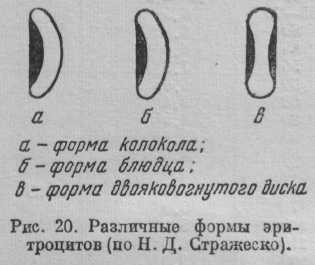
формы эритроцитов представлены на следующей схеме (рис. 20).
По величине эритроциты можно подразделить на собственно нормоциты (для лошади — 5,6 µ диаметром), микроциты и макроциты. Микроциты это эритроциты меньшего, чем в норме, диаметра (для лошади — менее 5 µ), макроциты — большего (7—6 µ). Внутренняя структура эритроцитов почти не выяснена, но самое наличие этой прижизненной структуры кажется весьма вероятным. Иначе было бы непостоянной формы эритроцитов, «теней эритроцитов» понятно наличие их эластичности, нахождение при гемолизе, проникновения в эритроцит трипанозом без выхода из него гемоглобина, несомненно до казанное наличие в нём особых специфически окрашивающихся образований, и т. д. С поверхности красное кровяное тельце отграничено липоидно-белковой мембраной (Крюков, Лепешинская). В какой степени она отдиференцирована гистологически, представляется
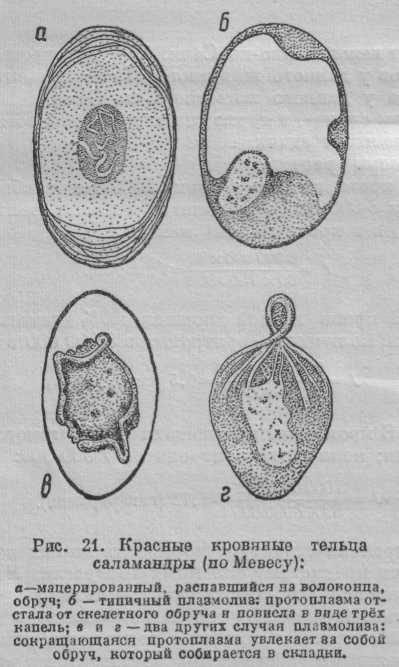
ещё спорным. Наличие чётко выраженной оболочки эритроцита защищается Немиловым и Лепешинской.
Под оболочкой предполагается наличие «краевых обручей» — эластических нитей, образующих остов эритроцита (рис. 21).
Весьма вероятно наличие в эритроцитах «внутренних тел», указываемых Максимовым, Арнольдом и др.
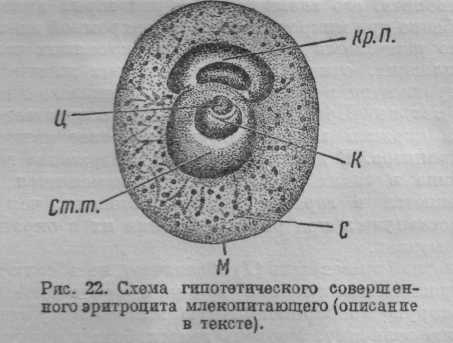
Ряд исследователей (в том числе Н. Д. Стражеско) развивают представление об очень сложной прижизненной структуре так называемого «совершенного эритроцита» млекопитающих. Эта, в значительной степени гипотетическая, структура представляется состоящей из:
1. Ядра, остатков ядра или кровяных пластинок (кр. п.).
2. Протоплазмы, состоящей из:
a) радиальной структуры, лишь редко видимой (С);
b) нагромождённой сверху в юном возрасте базофильной субстанции (полихромазия);
c) коркообразной сложной наружной оболочки (М).
3. Архоплазмы, состоящей из:
a) более светлого центрального вещества (ст. т.), соответственно вогнутости («стекловидное тело»);
b) микроцентра (центральное тельце) с соединением (ц); в микроцентре имеются два очень маленьких блестящих зёрнышка;
c) прилежащего, трудно изобразимого, величиною в 1—2 микрона, шаровидного, так называемого «капсулъного тела» (К).
Вряд ли, однако, можно признать такую сложную структуру достаточно экспериментально обоснованной. Более того, имеются высказывания об отсутствии такой сложной структуры в эритроците (Насонов). Не совсем понятно, какие физиологические функции могли бы быть связаны с такой сложной и в значительной степени искусственной структурой красного кровяного тельца (рис. 22).
Эритроциты птиц и низших позвоночных существенно отличаются от красных кровяных телец млекопитающих прежде всего тем, что даже в зрелом состоянии содержат ядра. Кроме того, они гораздо крупнее размером и имеют овальную форму.
Потеря зрелыми формами эритроцитов млекопитающих ядра произошла, вероятно, в процессе приспособления этих клеток к переносу кислорода
Ядерные эритроциты птиц и низших позвоночных являются полноценными клетками с интенсивным обменом веществ и поэтому значительное количество переносимого ими кислорода потребляют сами. Эритроциты же млекопитающих, теряя ядро, резко снижают свой газообмен и, следовательно, мало потребляют переносимый ими кислород. Безъядерные эритроциты, следовательно, более «экономные» переносчики кислорода, чем кариоциты птиц и низших позвоночных.
В мазках крови эритроциты видны иногда тесно наложенными друг на друга («монетные столбики»). Особенно резко эта способность выражена в крови лошади. Очень трудно получить мазок лошадиной крови, где бы эритроциты не образовывали, накладываясь друг на друга, густой сети. Отдельные красные кровяные тельца обычно находятся только на тонком, свободном краю мазка крови лошади.
При медленном подсыхании мазка резко повышается концентрация солей плазмы крови, и в таком гипертоническом растворе эритроциты, отдавая воду, принимают неправильную звёздчатую форму или форму тутовых ягод.
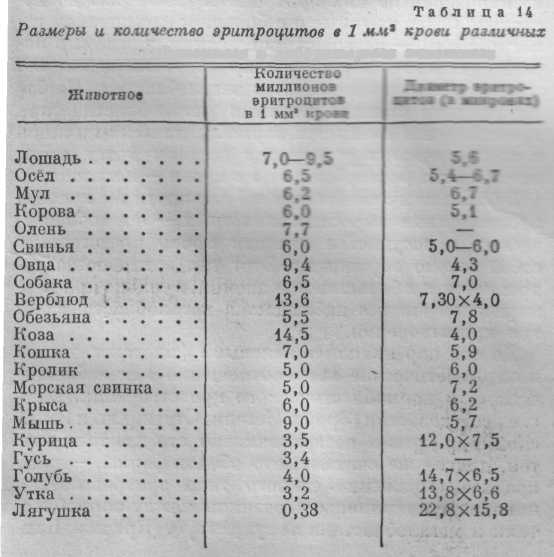
Размеры эритроцитов у различных видов животных значительно вариируют, так же как и их количество. В таблице 14 приведены средние данные о количестве и размерах зрелых эритроцитов у основных сельскохозяйственных и лабораторных животных. Общей закономерностью является обратная пропорциональность между размерами и количеством эритроцитов в 1 мм3 крови.
По В. П. Зайцеву, размер эритроцитов лошади зависит от типа конституции. Так, у астенических лошадей средний диаметр эритроцитов 5,12 µ у мускулярных 5,02 µ и у пикнических 4,9 µ.
В соответствии с этим, и количество эритроцитов, по В. П. Зайцеву, зависит от конституции: в 1 мм3 крови астенических лошадей содержится в среднем
9,97 млн. эритроцитов, у мускулярных 7,51 млн. и у пикников 7,98 млн.
Весьма мало известно о длительности жизни эритроцитов. В отношении безъядерных красных кровяных телец имеются данные о том, что их жизненный цикл составляет 3—4 недели. Они подвергаются фагоцитозу в селезёнке, в расширенных капиллярах её пульпы. Железо их гемоглобина, вместе с частью пиррольных колец гематнна, откладывается в селезёнке в виде железосодержащего пигмента — гемосидерина. Часть гемина, лишившегося железа, попадает в печень и превращается там в жёлчные пигменты. В печени же накопляется обычно и известное количество гемосидерина. Это количество доходит до громадных размеров в патологических условиях, когда происходит усиленный распад эритроцитов и гемоглобина. Образующийся при этом железосодержащий пигмент усиленно накопляется не только в печени и селезёнке, но и костном мозгу и лимфатических сосудах, обусловливая явления их гемосидероза.
Гемосидерин следует рассматривать, как резерв железа и пиррольных колец, который может быть использован для синтеза гемоглобина.
Б. ГЕНЕЗИС ЭРИТРОЦИТОВ
Постоянное новообразование эритроцитов происходит у млекопитающих в красном костном мозгу. Основной, исходной клеткой для развития эритроцитов является лимфоидный эритробласт (по А. Н. Крюкову, прогемобласт, или проэритробласт). Лимфоидный эритробласт является первой ступенью (этапом) диференциации лимфоидоцита (гемоцитобласта) в эритроцит. Из лимфоидного эритробласта возникает непосредственный предшественник эритроцита — эритробласт. За счёт размножения и диференциации эритробласта и происходит, при обычном, физиологически нормальном кроветворении, непрерывное новообразование эритроцитов.
Последовательное образование эритроцита представить в виде следущей схемы:
Схема эритропоэза
Индифферентная мезенхимная клетка.
Лимфоидоцит (гемоцитобласт)
Лимфоидный эритробласт (проэритробласт, прогемобласт)
Полихроматофильный эритробласт
Эритробласт (нормобласт)
Эритроцит (нормоцит)
Стадия лимфоидоцита (гемоцитобласта) может дать, диференцируясь под соответствующими гуморальными влияниями, все виды клеток крови: гранулоциты, агранулоциты и эритроциты. Лимфоидный эритробласт (проэритробласт, прогемобласт) уже начинает диференцироваться в направлении эри-тропоэза и является в этом отношении унипотенциальным.
Лимфоидный эритробласт (проэритробласт). Проэритробласт, эта материнская клетка эритроцитов, по своей структуре ещё весьма близок к родоначальным кровяным клеткам. Это большая клетка (до 20 µ в диаметре у лошади), с крупным, округлым ядром и резкобазофильной цитоплазмой, несколько более широкой, чем у гемоцитобласта. Крупное, почти правильной круглой или овальной формы ядро, при окраске по Романовскому, окрашивается в интенсивный красно-фиолетовый цвет. «Хроматиновая сеть ядра отличается необыкновенной правильностью своего сплетения, равномерностью составляющих сеть примитивных нитей и в то же время нежностью этого сплетения. В большинстве случаев примитивные нити более крупного калибра, чем у лимфоидных материнских клеток, резче красящиеся, и потому ядро получает более тёмную и более насыщенную окраску» (А. Н. Крюков). У более зрелых проэритробластов ядро имеет укрупнённую структуру, что создаёт впечатление зернистости или рубчатости. Иногда внутри ядра встречаются небольшие кругловатые или вытянутые участки, окрашивающиеся в синий или сине-фиолетовый цвет. Это нуклеоли или, вернее, псевдонуклеоли — участки протоплазмы, просвечивающей сквозь структуру ядра.
Цитоплазма проэритробластов окрашивается в интенсивно-синий, с лёгким оттенком ультрамарина, цвет. Она явственно нитчата и делится на две зоны: перинуклеарную, очень узкую, имеющую розоватый оттенок, и гораздо более широкую зону интенсивного фиолетово-синего или ультрамариново-синего цвета при окраске по Романовскому. Переход между этими зонами плавный, но отчётливо заметный.
Эритрпбласт. При дальнейшем созревании лимфоидный эритробласт превращается в эритробласт — клетку, постоянно продуцирующую в костном мозгу млекопитающих эритроциты. В физиологически нормальных условиях лимфоидные эритроциты являются покоящимися, резервными, малодиференцированными клетками, непосредственно не участвующими в текущем эритропоэзе. Только в патологических условиях они получают гуморальный стимул к дифференциации в эритробласты.
Эритробласты в костном мозгу размножаются посредством митотического (кариокинетического) деления. Однако при ряде патологических состояний эритробласты могут делиться и амитотически, но при этом получаются карликовые формы эритроцитов. Итак, начальной клеткой физиологически нормального эритропоэза является эритробласт.
Первоначальная, юная форма эритробласта, так называемый базофильный эритробласт, постепенно переходит в полихроматофильный, а этот — в ортохромный эритробласт.
По мере вызревания лимфоидного эритробласта, структура его ядра становится всё грубее, превращаясь постепенно в типичную для эритробласта радиарную, с большими, тёмными глыбками хроматина, со светлыми между ними промежутками, расположенными по типу спиц в колесе. Цитоплазма становится бледнее, блёклосинего цвета (базофильный эритробласт) с постепенным переходом к сине-фиолетовой окраске (полихроматофильный эритробласт). В дальнейшем, благодаря постепенному накоплению гемоглобина, цитоплазма, окрашенная по Романовскому, имеет сперва жёлто-розовый, а затем типичный для зрелого эритроцита медно-красный цвет (ортохромный эритробласт). На этой стадии созревания ядро эритробласта млекопитающих резко уменьшается и пикнотизируется, радиар-ная структура постепенно исчезает, всё ядро интенсивно окрашивается в вишнёво-фиолетовый цвет и принимает правильную круглую форму. Размеры созревающего эритробласта прогрессивно уменьшаются и, наконец, достигают размеров эритроцита.
Последнее изменение эритробластов (кариоцитов) млекопитающих перед превращением в эритроциты состоит в исчезновении ядра (энуклеации). До сих пор ещё неясно, как это происходит. А. Максимов и ряд других исследователей полагают, что пикнотизированное ядро эритробласта всё более сдвигается к периферии клетки и, наконец, выталкивается из неё. Некоторые думают, что вытолкнутое ядро превращается в кровяную пластинку. Иногда перед выталкиванием ядро, принимая сперва форму розетки и даже сегментов, соединённых между собою мостиками, подвергается распаду на отдельные осколки (кариорексис). При энуклеации эритробласта возникает эритроцит.
Большая часть исследователей считает, однако, что при физиологически нормальных условиях ядро или его осколки растворяются в клетке (кариолизис) (Паппенгейм, Негели, Заварзин).
Наконец, некоторые учёные склонны допустить наличие обоих путей освобождения эритробласта от ядра — и выталкивание его и растворение (Стражеско, Крюков, Вайденрайх, Феррата).
В. МЕГАЛОБЛАСТЫ И МЕГАЛОЦИТЫ
У молодых эмбрионов, а также в патологических условиях постэмбрионального кроветворения проэритробласты диференцируются в эритробласты несколько иного типа, обычно гораздо большего размера, с ядром, сохраняющим в известной степени нежную сетчатость более ранних стадий развития. Такие эритробласты называются мегалобластами, а возникающие из них эритроциты (тоже обычно несколько более крупные и с большим насыщением гемоглобином) — мегалоцитами. Таким образом, в период раннего эмбрионального кроветворения все эритробласты принадлежат к мегалобластам. На более поздних стадиях развития мегалобластнческое кроветворение сменяется нормобластическим и лишь в патологических условиях в костном мозгу снова встречаются мегалобласты, а в крови—мегалоциты.
В физиологической норме всё или почти всё красное кроветворение взрослых животных — нормобластическое, а сосудистая красная кровь представляет собой только нормоцитов. Этот тип эритропоэза сохраняется и в большинстве анемий, и только при пернициозной анемии наблюдается мегалобластический тип кроветворения.
До сих пор являлись неясными филогенетические и онтогенетические взаимоотношения мегалобластического и нормобластического кроветворения. Многие исследователи (Эрлих, Негели, Стражеско и Яновский и др.) резко разграничивают эти два типа клеток, другие же считают, что обе эти формы — лишь крайнее выражение единого типа эритропоэза, и никакой принципиальной разницы между нормобластами и мегалобластами не существует (Крюков, Паппенгейм). По А. Н. Крюкову, «мегалобластическое кроветворение является