Методические рекомендации к определению и выведению гемограммы у животных
3. Возрастные изменения количества эозинофилов выражены весьма чётко. В раннем периоде онтогенеза, до 1 года, наблюдается гипоэозинофилия. В годичном возрасте — резкое, скачкообразное увеличение, сохраняющееся на том же высоком уровне в течение всего дальнейшего онтогенеза.
4. Общей закономерностью для онтогенеза нейтрофилов (гетерофилов) является стремительное падение их содержания в самом раннем возрасте (от 52—53% у новорождённых до 17—18% у трёхмесячных телят) и медленный, но непрерывный подъём их количества в дальнейшем (до 38—39% у девятилетних и более старых животных).
5. Миелоциты встречаются только в самом раннем онтогенезе, юные довольно типичны для раннего возраста (6,94% у новорождённых и 5,3% у двухнедельных телят).
Количество палочкоядерных форм сравнительно велико у очень молодых телят (12,05% у новорождённых и 10,9% у двухнедельных телят). От месячного до двухгодичного возраста оно находится в минимуме (от 3,07 до 4,52%), затем несколько нарастает и, наконец, резко увеличивается в позднем онтогенезе (11,39% для восьмилетних коров и 16.5% для коров 9 лет и старше).
6. Возрастные изменения количества лимфоцитов представляют собой обратное отражение изменений нейтрофилов.
7. Наблюдающуюся у коров зозинофилию далеко не всегда можно считать патологической.
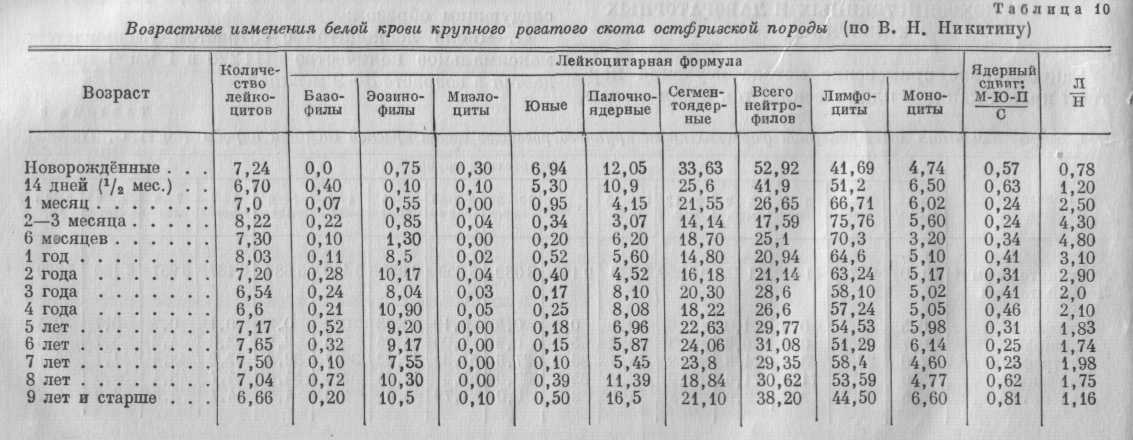
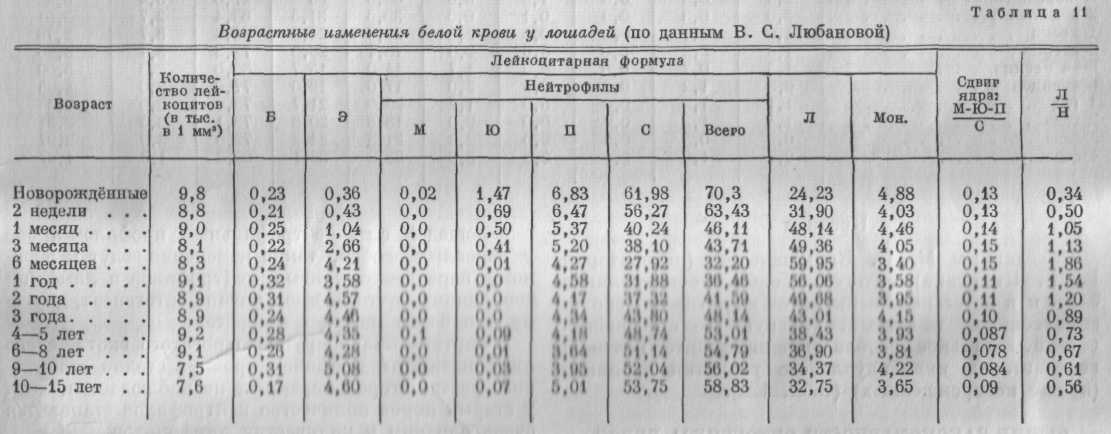
В возрастных изменениях белой крови лошади наблюдаются, по данным В. С. Любановой (лаборатория В. Н. Никитина, 1947 г.), те же основные закономерности, что и у крупного рогатого скота. Разница только в абсолютных числах гетерофилов и лимфоцитов, присущих лошадям, и в других переломных периодах онтогенеза. Это видно из диаграммы (рис. 10) и таблицы 11.
К числу особенностей онтогенеза белой крови лошади следует причислить:
а) ааметное снижение количества лейкоцитов к старости;
б) слабый лейкоцитоз новорождённых;
в) наименьшее количество нейтрофплов в возрасте 6 месяцев, т. е. несколько позднее, чем у коров;
г) сравнительно короткий период гипоэозинофилии в раннем онтогенезе.
Свиньи
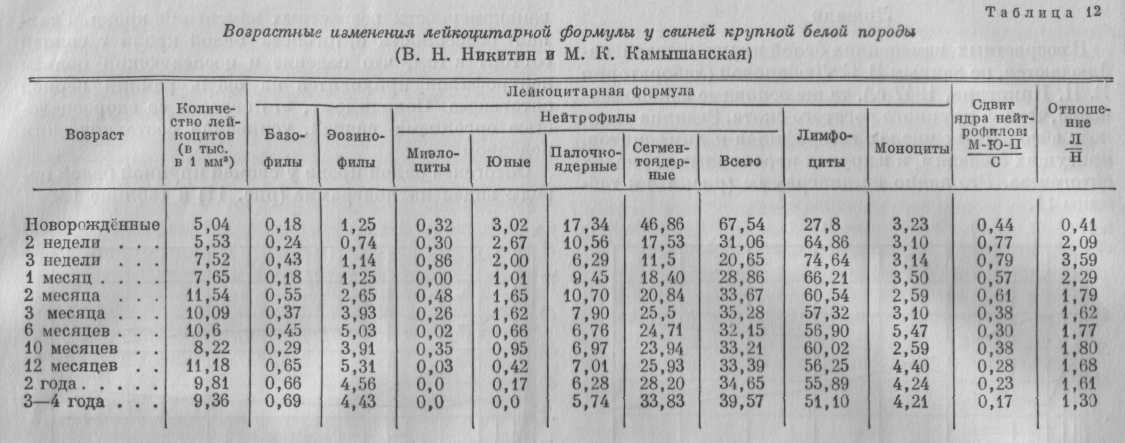
Онтогенез белой крови у свиней исследован В. Н. Никитиным и М. К. Камышанской. У свиней также наблюдаются общие для всех млекопитающих
закономерности возрастных изменений крови. Главная особенность онтогенеза белой крови у свиней состоит в том, что падение и последующий подъём нейтрофилов приходятся на очень ранний период онтогенеза. Повидимому, это связано со скороспелостью организма свиней, усиленной зоотехническим подбором.
Онтогенез белой крови у свиней крупной белой породы виден на диаграмме (рис. И) и таблице 12.
Кроме того:
а) В отличие от лошади и крупного рогатого скота, у свиней в начале онтогенеза количество лейкоцитов понижено (5,04 тыс. в 1 мм3 крови у новорождённых). Оно достигает нормы, характерной для взрослых, к 2-месячному возрасту.
б) Количество базофилов на всех стадиях онтогенеза у свиней заметно больше, чем у других сельскохозяйственных животных (кроме птиц).
в) Гппоэозинофилия очень раннего онтогенеза у свиней длится до 2-месячного возраста и выражена относительно слабо.
г) Минимальный уровень нейтрофилов наблюдается у поросят трёхнедельного возраста. На этот же период падает максимальный уровень лимфоцитов.
Кролики
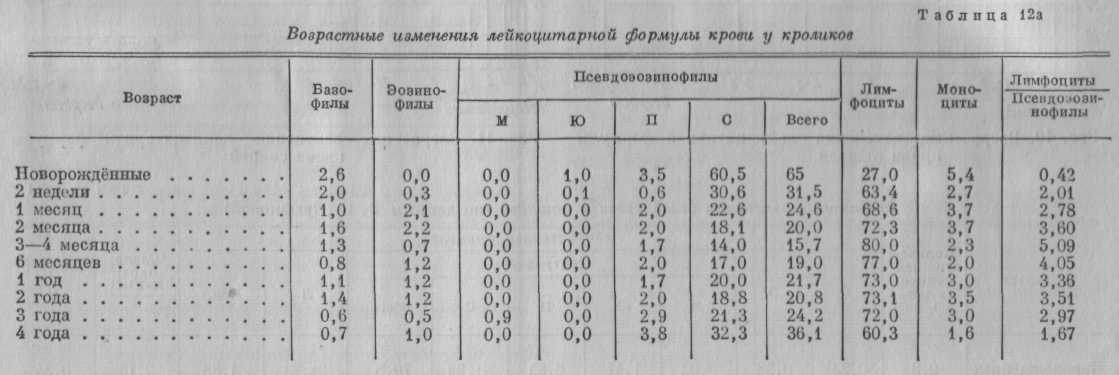
По данным М. К. Камышанской (лаборатория В. Н . Никитина), онтогенез белой крови кроликов близо к к онтогенезу лейкоцитов у других сельскохозяйственных животных. Главную его особенность состав ляет резкое преобладание лимфоцитов почти на всех этапах индивидуального развития кроликов (кроме новорождённых) (табл. 12а).
ОБЩИЕ ЗАКОНОМЕРНОСТИ ОНТОГЕНЕЗА БЕЛОЙ КРОВИ СЕЛЬСКОХОЗЯЙСТВЕННЫХ ЖИВОТНЫХ
Сопоставляя кривые возрастных изменений белой крови крупного рогатого скота, лошадей, свиней и кроликов, можно установить в онтогенезе белой крови всех этих животных некоторые общие закономерности.
Одной из таких основных общих закономерностей является изменение количества нейтрофилов: высокое содержание нейтрофилов в крови новорождённых сменяется быстрым падением его в первые дни жизни и нарастанием числа нейтрофилов в более позднем возрасте.
Обратную картину представляют изменения лимфоцитов.
У лошадей, с их нейтрофильным профилем крови у взрослых особей, такие изменения ведут к двойному перекресту кривых нейтрофилов и лимфоцитов: одному почти в самом начале онтогенеза, другому — в более позднем возрасте.
В картине крови крупного рогатого скота, с его лимфоцитарным профилем крови в стадии стабильного роста, второй перекрест не наблюдается, хотя у старых коров количество нейтрофилов становится очень близким к количеству лимфоцитов. То же самое наблюдается у свиней и кроликов. Общность динамики возрастных изменений отношения лимфоциты (Л) / нейтрофилы (Н) независимо от ее абсолютной
величины, хорошо видна на следующей диаграмме (рис. 12).
По вопросу об основных причинах возрастных изменений нейтрофилов и лимфоцитов пока можно высказать только некоторые предположения. Так, первоначальное богатство крови новорождённых ней-трофилами и быстрое падение их количества в первые дни жизни можно объяснить, например:
а) Явлениями синкаингенеза (Кон — Франк). По этой теории, гормоны, образующиеся в материнском организме, поступая в кровь при плацентарном кровообращении, вызывают у плода такие же изменения, как и в организме матери; к явлениям этого порядка надо отнести, например, увеличение надпочечников, увеличение матки, набухание грудных желез и некоторые другие явления, отмечаемые у новорождённых (А. Ф. Тур).
К этим же синкаингенетическим явлениям можно отнести и резкий нейтрофилёз новорождённых. В дальнейшем, с удалением из организма новорождённого гормонов матери, картина крови всё более определяется собственными гормонами и их соотношением у молодого организма. Отсюда резкое падение нейтрофилов в первые дни после рождения.
б) Нейтрофилёз новорождённых можно рассматривать как приспособление к защите организма от заражения в условиях, когда в первые дни в крови новорождённого имеется лишь очень мало антител (В. Н. Никитин). Дальнейшее падение нейтрофилов и обогащение крови лимфоцитами можно связать:
а) с повторением филогенеза белых кровяных телец на начальных стадиях онтогенеза. Лимфоциты, как наименее диференцированная и древняя форма белых кровяных телец, превалируют на ранних этапах онтогенеза;
б) с значительным развитием и активностью тимуса в раннем онтогенезе;
в) с высокими потенциями роста в равней онтогенезе; лимфоциты, по многим данным, играют известную роль в усвоении и синтезе белков.
За подъёмом количества лимфоцитов происходит
их медленное падение у всех четырёх видов животных. Другой общей закономерностью является нахождение в крови в раннем онтогенезе незрелых форм нейтрофилов. Это ведёт к сдвигу ядра нейтрофилов влево. Он хорошо выражен у крупного рогатого скота и менее заметен у лошадей и свиней.
Вероятно, вначале онтогенеза кроветворные органы функционируют ещё не в такой степени, чтобы нейтрофилы (так же как и другие формы лейкоцитов) успевали в них созреть. Функциональная полноценность миэлопоэтической системы достигается только значительно позднее.
С той же позиции можно рассматривать и некоторый сдвиг влево ядра нейтрофилов у старых животных. Здесь это — проявление уже недостаточной полноценности кроветворной системы. Более того, это своего рода физиологическая раздражённость миэлопоэза, вызванная уже нарушающимися нейро-гуморальными регуляциями в организме.
Третью общую (резко выраженную у всех исследованных животных) закономерность представляет гипоэозинофилия в ранней молодости.
ОСНОВНЫЕ БИОЛОГИЧЕСКИЕ ЗАКОНОМЕРНОСТИ ИЗМЕНЕНИИ БЕЛОЙ КРОВИ
При физиологически нормальном состоянии организма, кроветворные органы выбрасывают в сосудистую кровь достаточно зрелые формы лейкоцитов. В этом случае гемопоэз происходит под влиянием, в общем, довольно стабильных и хорошо сбалансированных нейрогуморальных факторов, обеспечивающих оптимальные условия для полноценного функционирования костного мозга, лимфатических узлов и т. д. Стабильность кроветворения и соответствующая ей стабильность уровня распада белых кровяных телец в организме определяют постоянство состава сосудистой белой крови и общего количества в ней лейкоцитов. Однако постоянство это весьма относительно: в составе белой крови сельскохозяйственных и, особенно, лабораторных животных даже в норме наблюдаются довольно заметные вариации («филогенетически менее устоявшаяся кровь», по А. Заварзину). Особенно вариабильна кровь таких лабораторных животных, как крысы, мыши, морские свинки. Менее изменчива кровь кролика.
Возможно, что на размах колебаний лейкоцитарной формулы сельскохозяйственных и лабораторных животных влияет также и то, что физиологическая норма у них встречается, в сущности, сравнительно редко. Помимо малоучитываемых патологических состояний, почти все сельскохозяйственные и лабораторные животные в той или иной степени инвазированы (гельминтозы, протозоозы и арахно-энтомозы). По мнению академика К. П. Скрябина, «...нигде в мире нельзя встретить ни одной головы крупного рогатого скота, ни одной овцы и лошади, свободной от паразитических червей» (1937 г.).
Наконец, необходимо иметь в виду наличие у сельскохозяйственных животных порою довольно значительных породных различий состава белой крови (а в известной степени и красной). Так, у шаговых пород лошадей лейкоцитарная формула имеет лимфо-цитарный профиль, а у скаковых нейтрофильный. Кровь рысистой лошади занимает промежуточное положение. Считается, что лимфопитарный профиль с наличием эозинофилии характеризует собой ваготоническое состояние, в противоположность выраженному нейтрофильному, свойственному симпатикотонии. Сухая конституция восточной лошади характеризуется симпатикотоническим комплексом, и ему чаще отвечает нейтрофильный профиль, в то время как тяжеловозы с рыхлой конституцией находят выражение ваготоничности в лимфоцитарном профиле.
При патологических процессах изменяется характер нейрогуморальных влияний на кроветворение. На гемопоэтическую систему воздействуют токсины, продукты распада и метаболизма бактерий, специфические антитела и продукты изменившегося катаболизма.
Отсюда двойное влияние на кроветворение в условиях патологии. С одной стороны, раздражённый костный мозг выбрасывает в кровяное русло не только зрелые, но и не закончившие свой цикл развития («вызревания») формы лейкоцитов (сдвиг лейкоцитарной формулы влево, появление в крови лимфобла-стов, монобластов, увеличение числа плазматических клеток).
С другой стороны, особенно при сильных интоксикациях, действие яда непосредственно сказывается на образующейся клетке: появляются дегенеративные формы белой и красной крови.
Основными биологическими закономерностями в изменениях белой крови при патологии являются следующие:
I. Слабые раздражения вызывают лишь функциональные изменения лейкоцитарной картины; средние раздражения, действуя через лейкопоэтические органы, являются формативными; сильные — влияют также на образование отдельной клетки; самые сильные раздражения действуют угнетающе, ослабляя центральные и разрушая периферические клетки кроветворных органов.
II. В большинстве инфекционных процессов первыми реагируют на раздражение нейтрофилы, затем моноциты и в последнюю очередь лимфоциты; различие инфекционных картин крови зависит от взаимного сдвига (во времени) этих трёх фаз и от колебания степени реакции отдельных групп, а также от появления наряду с ними более редких форменных элементов.
По отношению к общему количеству лейкоцитов слабое, умеренное и, в значительном большинстве случаев, сильное раздражение (интоксикация) вызывает нарастание лейкоцитов (лейкоцитоз); при очень сильных, «запредельных» раздражениях, кроветворение подавляется и возникает лейкопения.
Гораздо важнее, конечно, учитывать дифференцированные изменения отдельных групп лейкоцитов. Лейкоцитарная формула при подавляющем большинстве инфекционных заболеваний претерпевает три последовательные фазы изменений.
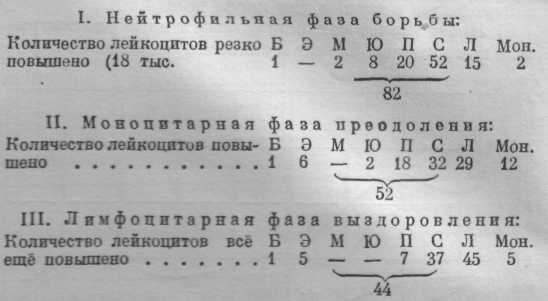
В начале б о л е з н и наблюдается нарастающий лейкоцитоз, нейтрофилия с резким регенеративным сдвигом ядра влево (до юных форм и даже до миэлоцитов), анэозннофилия, лимфо- и монопения. Это — нейтрофильная фаза борьбы.
Во второй стадии развития болезни, при кризисе и начинающемся выздоровлении, лейкоцитоз постепенно уменьшается, снижается количество нейтрофилов и ослабляется сдвиг ядра влево, появляются эозинофилы (восстановление эозинофилии), несколько увеличивается количество лимфоцитов и резко нарастает число моноцитов (моноцитоз). Это — моноцитарная защитная фаза, или фаза преодоления.
В третьей стадии болезни, при продолжающемся и заканчивающемся выздоровлении, наблюдаются: дальнейшее постепенное падение общего числа лейкоцитов, эозинофилия, резкий лимфоцитоз, несколько уменьшающийся моноцитоз, уменьшение числа нейтрофнлов и постепенное возвращение сдвига ядра до нормы. Это — л и м ф о ц и т а р-н а я фаза, или фаза выздоровления.
Наблюдающиеся при типичном течении болезни фазы изменения лейкоцитарной формулы можно видеть из смены трёх последовательных гемограмм лошади (заимствовано у А. В. Синева):
На следующей диаграмме (рис. 13) показан типичный ход изменений лейкоцитарной формулы крови в течение всей болезни.
Повышенное количество эозтгаофилов иногда удерживается долго после выздоровления. Так, ио данным А. Ф. Дорофеева (1928—1929 гг.), перипневмония у крупного рогатого скота оставляет по себе длительный след на лейкоцитарной формуле, и резко выраженная эозинофилия сохраняется до 3—6 месяцев после клинически установленного выздоровления.
При ряде заболеваний личная смена картин белой крови может существенно изменяться. Так, при крупозной пневмонии у лошадей и коров вначале имеется период лейкопении с уменьшенным количеством нейтрофилов. Затем—резко выраженный нейтрофильный лейкоцитоз. Хорошо выраженная лейкопения наблюдается при инфлуэнце лошадей, паратифе телят и чуме свиней. Интересно, что в то время как чума свиней связана с резко выраженной лейкопенией (всего 2—3 тыс. лейкоцитов в 1 мм3 крови), близкая к ней по начальным клиническим признакам рожа сопровождается не менее сильно выраженным лейкоцитозом (до 25 тыс. лейкоцитов в 1 мм3 крови). Таким образом, диференциальный диагноз рожи и чумы свиней значительно облегчается подсчётом количества лейкоцитов в сосудистой крови.
При гельминтозах, особенно у лошадей, собак и крупного рогатого скота, и при роже свиней наблюдается резкая эозинофилия (до 45—50 % эозинофилов). Гораздо менее выраженная, но всё же отчётливая эозинофилия наблюдается и при некоторых кожных заболеваниях, например, при различных формах экземы, при акариазе у собак.
Наличие значительных, характерных для отдельных болезней, специфических отклонений от типичной биологической реакции кроветворных органов всегда нужно иметь в виду при клиническом диагнозе. Кроме того, эта биологическая реакция даже и в обычных случаях далеко не стандартна.
РАННИЕ ФОРМЫ ОНТОГЕНЕЗА ЛЕПКОЦИТОВ
Для нормальной сосудистой крови характерно наличие в ней более или менее зрелых форменных элементов. В органах же кроветворения, например, в красном костном мозгу, наряду с различными клетками, находящимися на более поздних стадиях вызревания (миэлоцитами, юными, палочкоядерными и сегментоядерными формами), можно найти и самые ранние, исходные для пролиферации и развития, клеточные формы лейкоцитов. Сюда принадлежат (в порядке последовательного вызревания): а) гемоцитобласты (лимфоидоциты, миэлобласт— последний не во всех теориях лейкогенеза является синонимом гемоцитобласта); б) лейкобласты и в) промиэлоциты. В лимфопоэтической системе лейкобластам соответствуют г) лимфобласты.
Кроме того, в красном костном мозгу локализуются гигантские полиморфноядерные клетки д) мегакариоциты, из которых, по видимому, возникают кровяные пластинки млекопитающих. В очень редких случаях (при некоторых заболеваниях, например, хроническом миэлозе) мегакариоциты попадают в сосудистую кровь.
а) Гемоцитобласты (лимфоидоциты) — большие (12—20 µ диаметром) круглые или овальные клетки с базофильной тонкой цитоплазмой и крупным округлённым нерасчленённым, компактным ядром исключительно нежной структуры.
Окружность ядра иногда с бухтообразными углублениями. Хорошо заметна очень равномерная, сетчато-зернистая, без сколько-нибудь заметных сгущений (глыбок) сетка базихроматина. По А. Н. Крюкову, «ядро построено из тончайших примитивных нитей хроматина, отличающихся необыкновенной равномерностью калибра и окраски и дающих чрезвычайной правильности сплетение. Точки перекрещивания нитей ядерной сети воспринимаются как вернистость, откуда создаётся впечатление о нежнейшем микрогранулярном строении ядра. Вследствие малого содержания нуклеина в хроматиновых нитях, ядро получает лептохроматическую окраску, без ясного разделения субстанции ядра на хроматин и оксихроматин. В ядре имеются две-три (до шести) нуклеоли, красящиеся в синий цвет, переходящий в слегка красно-фиолетовый. Нуклеоли имеют характер округлых и более продолговатых образований; некоторые из них являются лишь псевдонуклеолями и представляют собой промежутки в хроматиновой сети ядра, через которые просвечивает синяя субстанция цитоплазмы».
Структура ядра гемоцитобластов может быть охарактеризована и иначе, как имеющая нежную сетчато-зернистую структуру, бледно окрашивающуюся благодаря малому количеству базихроматина (малой насыщенности ядра диффузно распределёнными нуклеотидами). Поэтому в ядре нет чередования отдельных участков с конденсацией бази- или оксихроматина (хроматина и парахроматина).
Нежную структуру поверхности ядра гемоцитобласта сравнивают то с нежной рябью на поверхности воды от слабого дуновения ветра (Крюков), то с поверхностью шагреневой кожи (Паппенгейм), то, наконец, с нежным нитчатым облачком.
Здесь необходимо подчеркнуть, что описание ядерных структур является правильным только по отношению к той искусственно полученной при фпкса-которая отражает коагулировавшие коллоиды ядра. Как показала исследования П. В. Макарова (1946—1948 гг.), покоящееся ядро при жизни не обладает никакими предсуществующими структурами, кроме ядрышка. Нити в ядре и цитоплазме, постулируемые А. Н. Крюковым, следует рассматривать, как артефакты, возникающие при фиксации.
Цитоплазма имеет различную степень базофилии; чем больше развита цитоплазма, тем она бледнее, т. е. менее базофильна. Периферия её окрашивается темнее, вокруг же ядра образуется более слабо окрашивающаяся перинуклеарная зона, иногда приобретающая розоватый оттенок. У тонкопротоплазменных клеток эта зона отсутствует.
Изредка в цитоплазме встречаются азурофильные гранулы.
Гемоцитобласт полипотентен и может развиваться, в зависимости от нейрогуморальных факторов, в направлении миэлопоэза, лимфопоэза, монопозза и еритропоэза.
По Аринкину, в пунктате костного мозга содержится от 1,0 до 1,4% мизлобластов (т. е. гемоцитобластов и последующей формы диференциации в направлении миэлопоэза — лейкобластов).
б) Лейкобласты — промежуточная клеточная форма между полипотентными гемоцитобластами и достаточно чётко диференцированными в сторону грануло-цитопоэза промиэлоцитами и миэлоцитами. Ряд исследователей сближает лейкобласты с миэлоцитами и не выделяет их в самостоятельную промежуточную форму (Максимов, Крюков, Заварзин, Нагели).
По Паппенгейму, лейкобласт характеризуется:
а) ядром, имеющим структуру, приближающуюся к миэлоциту, и иногда содержащим ядрышки;
б) базофильной, несколько более широкой, чем у гемоцитобласта, цитоплазмой, иногда содержащей тёмные, азурофильные зёрнышки, порою очень обильные.
Н. Д. Стражеско и Д. Н. Яновский следующие образом характеризуют особенности лейкобластов:
«Мы под лейкобластом понимаем лимфоидную клетку, ядро которой теряет специальную лимфоидоцитарную структуру. Это не значит, что она должна быть выраженно миэлоцитарной. Эта лимфоидная клетка имеет ядро более грубой структуры, чем ядро лимфоидоцита. Правильное густое сплетение тонких нитей заменяется более грубым сплетением тяжей хроматина с небольшими просветами парахроматина. В ядре части из этих клеток ещё сохраняются ядрышки. Протоплазма не резко базофильна. Ядро значительно отличается от ядра миэлоцита, где плотные участки хроматина чередуются с более светлыми участками, образуя пёструю мизлоцитарную структуру. Так как приобретение определённых биологических свойств идёт вместе с морфологическим созреванием клетки, то потеря специальной лимфоидоцитарной структуры ядра, огрубение его, должны служить доказательством дифрренциации не только морфологической, но и биологической, т. е. приобретения или потери клеткой ряда свойств, как, например, исчезновение полипотентной возможности, т. е. способность развиваться в сторону только лимфоидных или миелоидных клеток, появление ферментов и т. п. В таком понимании лейкобласт будет действительно соответствовать лимфобласту лимфатического ряда. Как раз лейкобласты наиболее трудно отличить от лимфобласта по морфологическим признакам».
Н. Д. Стражеско и Д. Н. Яновский считают, что лейкобласты, уже начавши диференцироваться в направлении гранулопитов ещё сохраняют возможность превратиться, при известных условиях, в моноциты, так же как и лимфобласты. Следующая ступень их развития — промиэлоциты — уже не обладает этой потентностью и может диференцироваться только в гранулоциты.
А. Н. Крюков, не считая возможным выделить лейкобласт в самостоятельную переходную клеточную форму, объединяет, как синонимы, гемоцитобласты, лимфоидоциты и миэлобласты. Н. Д. Стражеско и Д. Н. Яновский объединяют гемоцитобласт и его последующую стадию — лейкобласт — названием миэлобласт.
Выделение лейкобласта в самостоятельную клеточную форму характерно для многих умеренных унитаристов, по отрицается как сторонниками крайнего монизма, так и сторонниками полифилетизма.
в) Промиэлоциты — дальнейшая форма диферен-циации гемоцитобласта и лейкобласта в гранулоциты Она характеризуется:
1) выраженной миэлоцитарной структурой ядра с чередованием ясно выраженных тёмных и светлых участков;
2) отсутствием ядрышек в ядре;
3) появлением азурофильной, уже достаточно обильной, зернистости, которая впоследствии превращается, в зависимости от условий развития, то в эозинофильную, то в гетерофильную, то, наконец, в базофильную зернистость;
4) дальнейшим увеличением массы цитоплазмы Ядро проявляет уже некоторую тенденцию к образованию выступов и вдавлений.
Зёрна дают более или менее выраженную оксидазоположительную реакцию.
Промиэлоциты составляют 0,8—1.4% клеток в пунктате костного мозга (Аринкин).
г) Лимфобласты (макролимфоциты) — такие же промежуточные ступени в направлении развития гемоцитобласта в лимфоциты, как лейкобласты по отношению к миэлоцитам. Лимфобласты трудно отличимы от лейкобластов.
Это большие клетки, с несколько более широким, чем у гемоцитобласта, поясом базофильной цитоплазмы. Их диаметр колеблется между 10 и 15 µ, иногда и более. В отличие от лейкобласта, имеющего несколько дымчатую цитоплазму, у лимфобласта она ясно-голубая.
Большое, имеющее небольшие выступы и впадины, ядро окрашивается бледнее, чем у средних лимфоцитов. Его структура гораздо нежнее, чем у последних (более рыхлая), хотя, в отличие от гемоцитобластов, в нём становятся ясно заметными светлые и тёмные поля. Ядро содержит ядрышки (от одного до трёх), не так резко отграниченные, как в ядре лимфоидоцита.
В цитоплазме ясно выражена светлая перинуклеарная зона, и это служит добавочным отличием лимфобласта от лейкобласта. Базофилия цитоплазмы выражена гораздо слабее, чем у гемоцитобласта. Цвет цитоплазмы — ясноголубой.
Другим, весьма важным, отличием лимфобласта от лейкобластов является их разная оксидазная реакция: у лейкобластов она положительна, у лимфобластов отрицательна.
Лимфобласты находятся в периферической крови только при некоторых патологических состояниях, особенно при лимфатической лейкемии.
д) Гигантские клетки красного костного мозга — мегакариоциты.Мегакариоциты (и их родоначальная, не всеми признаваемая форма — мегакариобласты) представляют гигантские клетки костного мозга, имеющие размер в 20—40 µ и более.
Ядро мегакариоцитов обычно резко полиморфное, образует сложные изгибы (конволюты) и лишь очень редко имеет более простую форму, слегка напоминающую форму ядра моноцитов. Иногда встречаются мегакариоциты с кольцеобразными, сложно извитыми ядрами.
Ядро мегакариоцитов, по Крюкову, «в общем бедно хроматином, дающим явственную сеть из тонких и более толстых нитей с утолщениями в виде частиц, лежащих на разном расстоянии друг от друга. В ядре могут находиться многочисленные нуклеоли».
В ядре мегакариоблаетов видны нуклеоли.
Цитоплазма гигантских клеток костного мозга весьма объёмиста, окрашивается базофильно, мутна. У более зрелых форм в цитоплазме находятся многочисленные мелкие азурофильные зёрнышки.
Особенностью цитоплазмы мегакариоцитов является наличие в ней очень большого количества цент-риоль (по А. Максимову, нескольких сотен).
От цитоплазмы зрелых мегакариоцитов постоянно отделяются небольшие комочки, содержащие азуро-фильную зернистость. Это явление, а также наблюдающийся параллелизм между изменением количества мегакариоцитов в костном мозгу и изменением количества кровяных пластинок в сосудистой крови дали Райту (Wright) основание рассматривать кровяные пластинки как продукт распада мегакариоцитов. В костном мозгу содержится около 0,2% мегакариоцитов (Аринкин).
Мегакариоциты никогда не встречаются в периферической крови физиологически нормального организма. Довольно часто их находят при лейкемиях (преимущественно малые, бедные цитоплазмой, клетки). Н. Д. Стражеско и Д. Н. Яновский считают их не мегакариоцитами, а мегакариобластами.
ГЕНЕЗИС КРОВЯНЫХ КЛЕТОК
ТЕОРИИ КРОВЕТВОРЕНИЯ И ФИЛОГЕНЕТИЧЕСКИЕ И ОНТОГЕНЕТИЧЕСКИЕ ОТНОШЕНИЯ РАЗЛИЧНЫХ ФОРМ ЛЕЙКОЦИТОВ
Картина крови теснейшим образом зависит от функционального состояния органов кроветворения, отражая в той или иной степени происходящие в гемопоэтической системе изменения. Поэтому для правильного истолкования картины крови большое значение имеет знание закономерностей кроветворения в норме и в патологических условиях и, прежде всего, генеза кровяных клеток.
К сожалению, до сих пор ещё нет единой, безупречно обоснованной теории кроветворения. Известно, что у беспозвоночных и низших позвоночных животных, не имеющих кроветворных органов и дифференцированных белых кровяных телец, все элементы крови возникают из индиферентных мезенхимных клеток. Нечто подобное наблюдается и на самых ранних стадиях эмбриогенеза млекопитающих. Однако и в филогенезе (у более высоко организованных животных) и в онтогенезе (на более поздних стадиях эмбриогенеза) отношения значительно усложняются. Возникают специальные органы кроветворения (миэлоидная и лимфоидная системы), диференцируются белые кровяные тельца. Генезис клеток крови у высших животных оказывается гораздо более сложным, чем у животных примитивных. Он изучен далеко не в достаточной степени. В настоящее время существуют три основные теории генезиса клеток крови:
а) монистическая, или унитаристическая, монофилетическая теория (Усов, Вайденрайх, Максимов, Немилов, Доминичи, Феррата, Хлопин, Мясоедов, Алёшин и др.);
б) дуалистическая теория (Эрлих, Негели и др.);
в) триалистическая теория (Ашоф и др.). Особую теорию представляет собой умеренный
унитаризм пли монофилетический дуализм (Крюков, Паппенгейм, Стражеско и Яновский, Тимофеевский), объединяющий унитаризм и дуализм, устраняя их крайние положения.
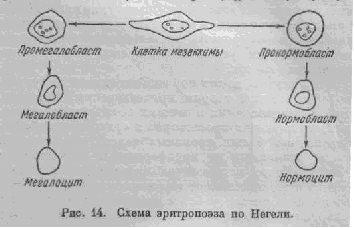
Некоторые основные положения признаются почти всеми исследователями. Считается, например, установленным, что в эмбриональном кроветворении недиференцированные клетки мезенхимы в процессе диференциации (и пролиферации) образуют первые островки кроветворения, продуцирующие все основные виды клеток крови и в дальнейшем развивающиеся в кроветворные органы. При этом возникают две кроветворные системы: миэлоидная (костный мозг) и лимфоидная (лимфатические узлы и селезёнка). Обе системы диференцируются уже в эмбриогенезе и образуют при физиологически нормальных условиях различные клетки крови: миэлоидная—кровяные пластинки, красные кровяные тельца и гранулоциты, а лимфатическая — лимфоциты. Диференциация мезенхимальных элементов в этих тканях зашла так далеко, что превращение одной ткани в другую (или обратное развитие) в обычных физиологических условиях встречается редко (унитаристы) или исключено (дуалисты и триалисты). Морфологическая диференциация сочеталась здесь с диференциацией биохимической; одно из самых ярких проявлений последней — наличие оксидаз в миэлоидных элементах и отсутствие этих ферментов в лимфоидных клетках (только моноциты иногда слабо оксидазо-положительны). Различны и условия внутриклеточного пищеварения у гранулоцитов и моноцитов; у первых пищеварительные ферменты действуют в слабощелочной среде, а у вторых в слабокислой. Окислительный обмен у гранулоцитов сдвинут в сторону гликолиза, а у агранулоцитов гликолиз выражен очень слабо.
Однако у взрослых организмов, как в кроветворных органах, так и вне их, сохраняются и мало изменившиеся индиферентные мезенхимные клетки. Под влиянием особых физиологических и патологических воздействий они могут развиваться в любые кровяные клетки — как миэлоидного, так и лимфоидного ряда.
При физиологически нормальных условиях лейкопоэз обеспечивается не этими индиферентными мезенхимными клетками и даже не первыми формами их начинающейся диференциации — миэлобластами и лимфобластами, а размножением ещё более диференцированных форм — миэлоцитов и соответствующих им по степени зрелости форм агранулоцитов.
Основная проблема теории кроветворения состоит в том, до какой стадии созревания сохраняется у взрослого позвоночного полипотентность клеток кроветворной ткани, иначе говоря, насколько далеко зашла диференциация миэлоидной и лимфоидной тканей.
По представлению унитаристов (Максимов), грань между миэлоидной и лимфоидной тканью очень относительна, резкого обособления между ними нет, и в обычных физиологических условиях возможно образование лимфоидных элементов из мало диференци-рованных элементов миэлоидной ткани и наоборот. Унитаристы считают, что все агранулоциты крови и кроветворных органов (малые и большие лимфоциты и моноциты) являются недиференцировашшми или лишь очень мало диференцированными клетками, которые при некоторых условиях могут развиться в гранулоциты, эритроциты и мегакариоциты.
По А. Максимову, «соотношения между всеми... формами незернистых лейкоцитов в циркулирующей крови гораздо более тесные и простые, они не только происходят из одной общей родоначальной клетки, что, конечно, несомненно, но они и в самой крови и в других тканях могут в известных пределах прямо превращаться друг в друга. По крайней мере, в крови животных... очень часто вообще не удаётся провести резкой границы между ними, а, наоборот, удаётся подобрать непрерывный ряд постепенных переходных форм от малого лимфоцита к большому (где последний циркулирует в крови) и к моноциту, который является как бы наиболее зрелой формой лейкоцитов. Большой же лимфоцит или моноцит, размножаясь делением, могут опять дать начало малым лимфоцитам».
 «На
основании этой
нерезкой
отграниченности
друг от друга
разных видов
незернистых
лейкоцитов,
они и могут
быть объединены...
под общим названием
«лимфоциты»
или «агранулоциты>.
Это всегда в
основе одна
и та же равнозначная
клетка. Внешний
вид её, величина,
отношение
между массой
протоплазмы
и ядра, степень
базофильности
протоплазмы,
отношение к
прижизненной
окраске и т.
п. могут значительно
колебаться,
и клетка может
соответственно
этому более
или менее
приближаться
то к одному,
то к другому
из описанных
трёх типов, но
внутренние
потенциальные
её качества
при этом остаются
неизменными».
«Это учение
признаёт, что
все вообще
лимфоидные
элементы в
организме по
существу совершенно
равнозначны,
хотя в гистологическом
отношении
могут быть
очень разнообразны.
Как бы они ни
были различны
по виду, величине,
отношению
между объёмом
ядра и протоплазмы,
по базофильности
последней
и т. д., это всё-таки
всегда те же
самые индифферентные
блуждающие
клетки, мезенхимные
амёбоциты,
лимфоциты в
широком смысле»,
с очень большой
«потенцией
развития; малые
лимфоциты,
большие лимфоциты,
моноциты
представляют
собою лишь
некоторые
наиболее типичные
внешние формы,
которые может
принимать этот
элемент в
организме...
все эти клеточные
типы постепенно
переходят друг
в друга и связаны
промежуточными
формами. То,
что описывается
под именем
гистиоцитов,
лейкобластов
и т. д., также не
может считаться
определёнными
и резко ограниченными
клеточными
типами. Сказанное
относится
затем и к миэлобластам
и лимфобластам
дуалистов, т.
е. к незернистым
родоначальным
клеткам миэлоидной
и лимфоидной
ткани. Они должны
рассматриваться
не как две различные
клеточные
формы, а как
один и тот же
индиферентный,
мезенхимный
амёбоцит, который
можно в данных
двух случаях
по гистологическому
виду назвать
просто большим
лимфоцитом.
Если этот