Нейрокомпьютерные системы
Обучение с учителем. В работах [3] и [8] описано самоорганизующееся неуправляемое обучение. Наряду с этими впечатляющими результатами, были опубликованы отчеты о других экспериментах, использующих обучение с учителем [9]. Здесь требуемая реакция каждого слоя заранее определяется экспериментатором. Затем веса настраиваются с использованием обычных методов для выработки требуемой реакции. Например, входной слой настраивался для распознавания отрезков линий в различных ориентациях во многом аналогично первому слою обработки зрительной коры. Последующие слои обучались реагировать на более сложные и абстрактные свойства до тех пор, пока в выходном слое требуемый образ не будет выделен. При обработке сети, превосходно распознающей рукописные арабские цифры, экспериментаторы отказались от достижения биологического правдоподобия, обращая внимание только на достижение максимальной точности результатов системы.
Реализация обучения. В обычных конфигурациях рецептивное поле каждого нейрона возрастает при переходе к следующему слою. Однако количество нейронов в слое будет уменьшаться при переходе от входных к выходным слоям. Наконец, выходной слой имеет только один нейрон в плоскости сложных узлов. Каждый такой нейрон представляет определенный входной образ, которому сеть была обучена. В процессе классификации входной образ подается на вход неокогнитрона и вычисляются выходы слой за слоем, начиная с входного слоя. Так как только небольшая часть входного образа подается на i вход каждого простого узла входного слоя, некоторые простые узлы регистрируют наличие характеристик, которым они обучены, и возбуждаются. В следующем слое выделяются более сложные характеристики как определенные комбинации выходов комплексных узлов. Слой за слоем свойства комбинируются во все возрастающем диапазоне; выделяются более общие характеристики и уменьшается позиционная чувствительность. В идеальном случае только один нейрон выходного слоя должен возбудиться. В действительности обычно будет возбуждаться несколько нейронов с различной силой, и входной образ должен быть определен с учетом соотношения их выходов. Если используется сила латерального торможения, возбуждаться будет только нейрон с максимальным выходом. Однако это часто является не лучшим вариантом. На практике простая функция от небольшой группы наиболее сильно возбужденных нейронов будет часто улучшать точность классификации.
ЗАКЛЮЧЕНИЕ
Как когнитрон, так и неокогнитрон производят большое впечатление с точки зрения точности, с которой они моделируют биологическую нервную систему. Тот факт, что эти системы показывают результаты, имитирующие некоторые аспекты способностей человека к обучению и познанию, наводит на мысль, что наше понимание функций мозга приближается к уровню, способному принести практическую пользу. Неокогнитрон является сложной системой и требует существенных вычислительных ресурсов. По этим причинам кажется маловероятным, что такие системы реализуют оптимальное инженерное решение сегодняшних проблем распознавания образов. Однако с 1960 г. стоимость вычислений уменьшалась в два раза каждые два-три года, тенденция, которая, по всей вероятности, сохранится в течение как минимум ближайших десяти лет. Несмотря на то, что многие подходы, казавшиеся нереализуемыми несколько лет назад, являются общепринятыми сегодня и могут оказаться тривиальными через несколько лет, реализация моделей неокогнитрона на универсальных компьютерах является бесперспективной. Необходимо достигнуть тысячекратных улучшений стоимости и производительности компьютеров за счет специализации архитектуры и внедрения технологии СБИС, чтобы сделать неокогнитрон практической системой для решения сложных проблем распознавания образов, однако ни эта, ни какая- либо другая модель искусственных нейронных сетей не должны отвергаться только на основании их высоких вычислительных требований.
Приложение А Биологические нейронные сети
ЧЕЛОВЕЧЕСКИЙ МОЗГ: БИОЛОГИЧЕСКАЯ МОДЕЛЬ ДЛЯ ИСКУССТВЕННЫХ НЕЙРОННЫХ СЕТЕЙ
Структура искусственных нейронных сетей была смоделирована как результат изучения человеческого мозга. Как мы отмечали выше, сходство между ними в действительности очень незначительно, однако даже эта скромная эмуляция мозга приносит ощутимые результаты. Например, искусственные нейронные сети имеют такие аналогичные мозгу свойства, как способность обучаться на опыте, основанном на знаниях, делать абстрактные умозаключения и совершать ошибки, что является более характерным для человеческой мысли, чем для созданных человеком компьютеров.
Учитывая успехи, достигнутые при использовании грубой модели мозга, кажется естественным ожидать дальнейшего продвижения вперед при использовании более точной модели. Разработка такой модели требует детального понимания структуры и функций мозга. Это в свою очередь требует определения точных характеристик нейронов, включая их вычислительные элементы и элементы связи. К сожалению, информация не является полной; большая часть мозга остается тайной для понимания. Основные исследования проведены в области идентификации функций мозга, однако и здесь отсутствуют подходы, отличающиеся от чисто «схематических». Биохимия нейронов, фундаментальных строительных блоков мозга, очень неохотно раскрывает свои секреты. Каждый год приносит новую информацию относительно электрохимического поведения нейронов, причем всегда в направлении раскрытия новых уровней сложности. Ясно одно: нейрон является намного более сложным, чем представлялось несколько лет назад, и нет полного понимания процесса его функционирования.
Однако, несмотря на наши ограниченные познания, мозг может быть использован в качестве ценной модели в вопросах развития искусственных нейронных сетей. Используя метод проб и ошибок, эволюция, вероятно, привела к структурам, оптимальным образом пригодным для решения проблем, более характерных для человека. Кажется маловероятным, что мы получим более хорошее решение. Тщательно моделируя мозг, мы продвигаемся в исследовании природы и в будущем будем, вероятно, воспроизводить больше возможностей мозга.
Данное приложение содержит штриховые наброски современных знаний относительно структуры и функций мозга. Хотя изложение этих сведений очень краткое, мы пытались сохранить точность. Следующие разделы иллюстрируют текст данной работы и, возможно, будут стимулировать интерес к биологическим системам, что приведет к развитию искусственных нейронных сетей.
ОРГАНИЗАЦИЯ ЧЕЛОВЕЧЕСКОГО МОЗГА
Человеческий мозг содержит свыше тысячи миллиардов вычислительных элементов, называемых нейронами. Превышая по количеству число звезд в Млечном Пути галактики, эти нейроны связаны сотнями триллионов нервных нитей, называемых синапсами. Эта сеть нейронов отвечает за все явления, которые мы называем мыслями, эмоциями, познанием, а также и за совершение мириадов сенсомоторных и автономных функций. Пока мало понятно, каким образом все это происходит, но уже исследовано много вопросов физиологической структуры и определенные функциональные области постепенно изучаются исследователями.
Мозг также содержит густую сеть кровеносных сосудов, которые обеспечивают кислородом и питательными веществами нейроны и другие ткани. Эта система кровоснабжения связана с главной системой кровообращения посредством высокоэффективной фильтрующей системы, называемой гематоэнцефалическим барьером, этот барьер является механизмом защиты, который предохраняет мозг от возможных токсичных веществ, находящихся в крови.
Защита обеспечивается низкой проницаемостью кровеносных сосудов мозга, а также плотным перекрытием глиальных клеток, окружающих нейроны. Кроме этого, глиальные клетки обеспечивают структурную основу мозга. Фактически весь объем мозга, не занятый нейронами и кровеносными сосудами, заполнен глиальными клетками.
Гематоэнцефалический барьер является основой для обеспечения сохранности мозга, но он значительно осложняет лечение терапевтическими лекарствами. Он также мешает исследованиям, изучающим влияние различных химических веществ на функции мозга. Лишь небольшая часть лекарств, созданных с целью влияния на мозг, может преодолевать этот барьер. Лекарства состоят из небольших молекул, способных проникать через крошечные поры в кровеносных сосудах. Чтобы воздействовать на функции мозга, они должны затем пройти через глиальные клетки или раствориться в их мембране. Лишь некоторые молекулы интересующих нас лекарств удовлетворяют этим требованиям; молекулы многих терапевтических лекарств задерживаются этим барьером.
Мозг является основным потребителем энергии тела. Включая в себя лишь 2% массы тела, в состоянии покоя он использует приблизительно 20% кислорода тела. Даже когда мы спим, расходование энергии продолжается. В действительности существуют доказательства возможности увеличения расходования энергии во время фазы сна, сопровождаемой движением глаз. Потребляя только 20 Вт, мозг с энергетической точки зрения невероятно эффективен. Компьютеры с одной крошечной долей вычислительных возможностей мозга потребляют много тысяч ватт и требуют сложных средств для охлаждения, предохраняющего их от температурного саморазрушения.
Нейрон
Нейрон является основным строительным блоком нервной системы. Он является клеткой, подобной всем другим клеткам тела; однако определенные существенные отличия позволяют ему выполнять все вычислительные функции и функции связи внутри мозга.
Функционально дендриты получают сигналы от других клеток через контакты, называемые синапсами. Отсюда сигналы проходят в тело клетки, где они суммируются с другими такими же сигналами. Если суммарный сигнал в течение короткого промежутка времени является достаточно большим, клетка возбуждается, вырабатывая в аксоне импульс, который передается на следующие клетки. Несмотря на очевидное упрощение, эта схема функционирования объясняет большинство известных процессов мозга.
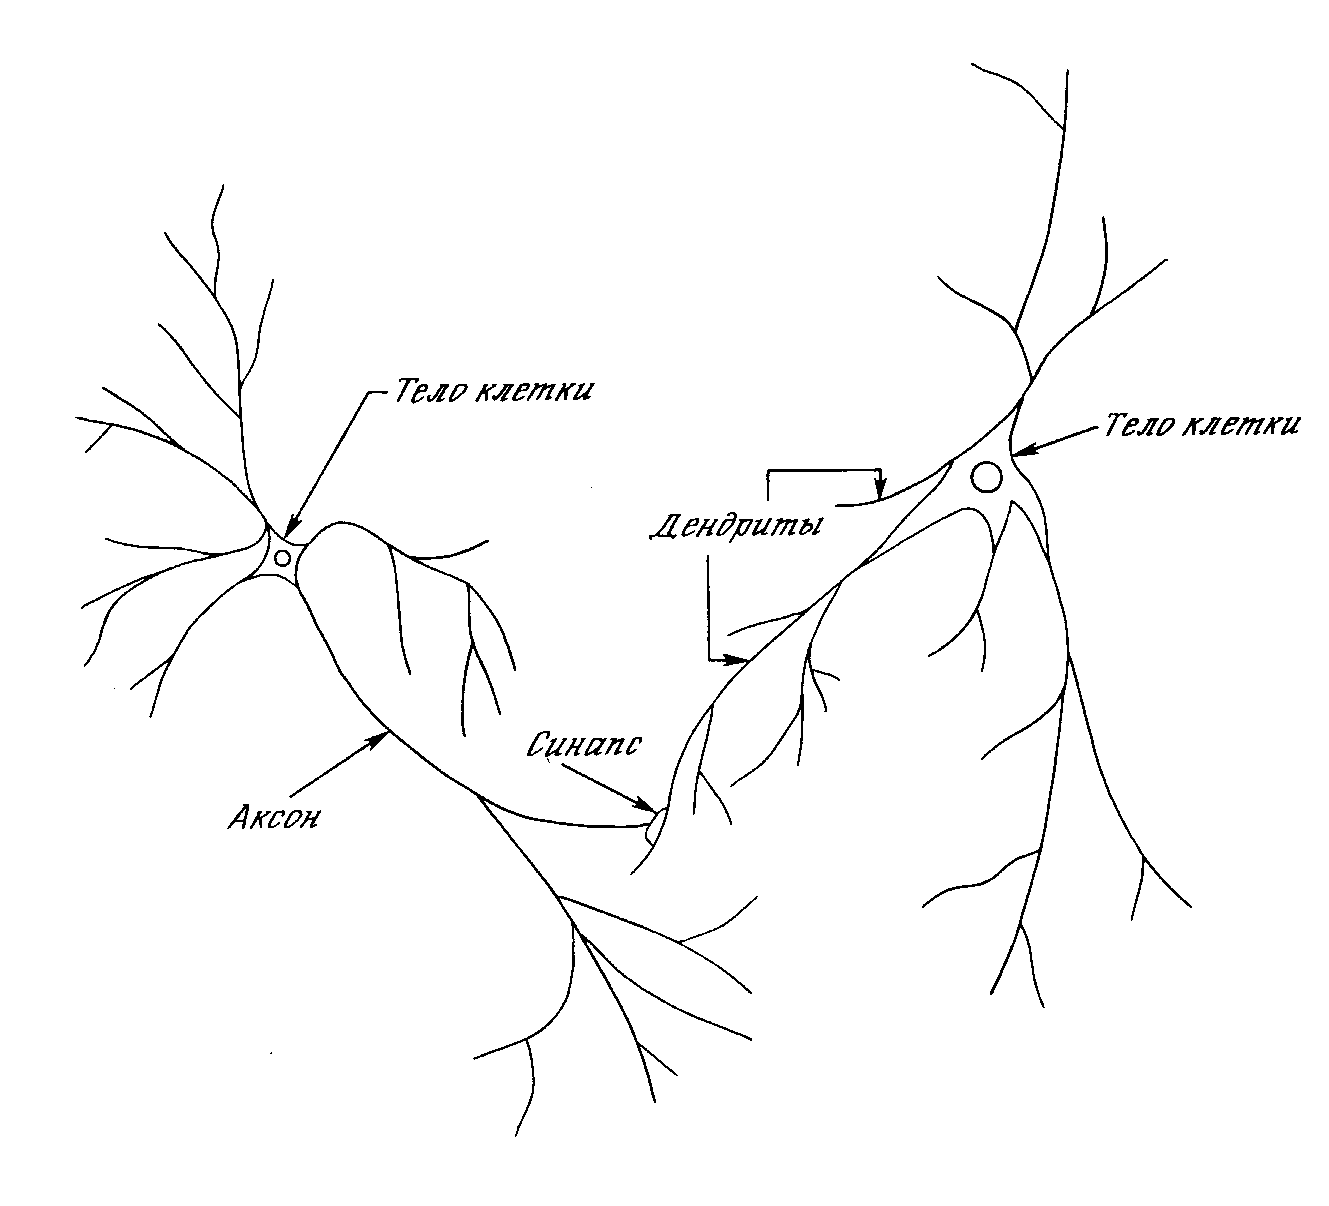
Тело ячейки. Нейроны в мозгу взрослого человека не восстанавливаются; они отмирают. Это означает, что все компоненты должны непрерывно заменяться, а материалы обновляться по мере необходимости. Большинство этих процессов происходит в теле клетки, где изменение химических факторов приводит к большим изменениям сложных молекул. Кроме этого, тело клетки управляет расходом энергии нейрона и регулирует множество других процессов в клетке. Внешняя мембрана тела клетки нейрона имеет уникальную способность генерировать нервные импульсы (потенциалы действия), являющиеся жизненными функциями нервной системы и центром ее вычислительных способностей.
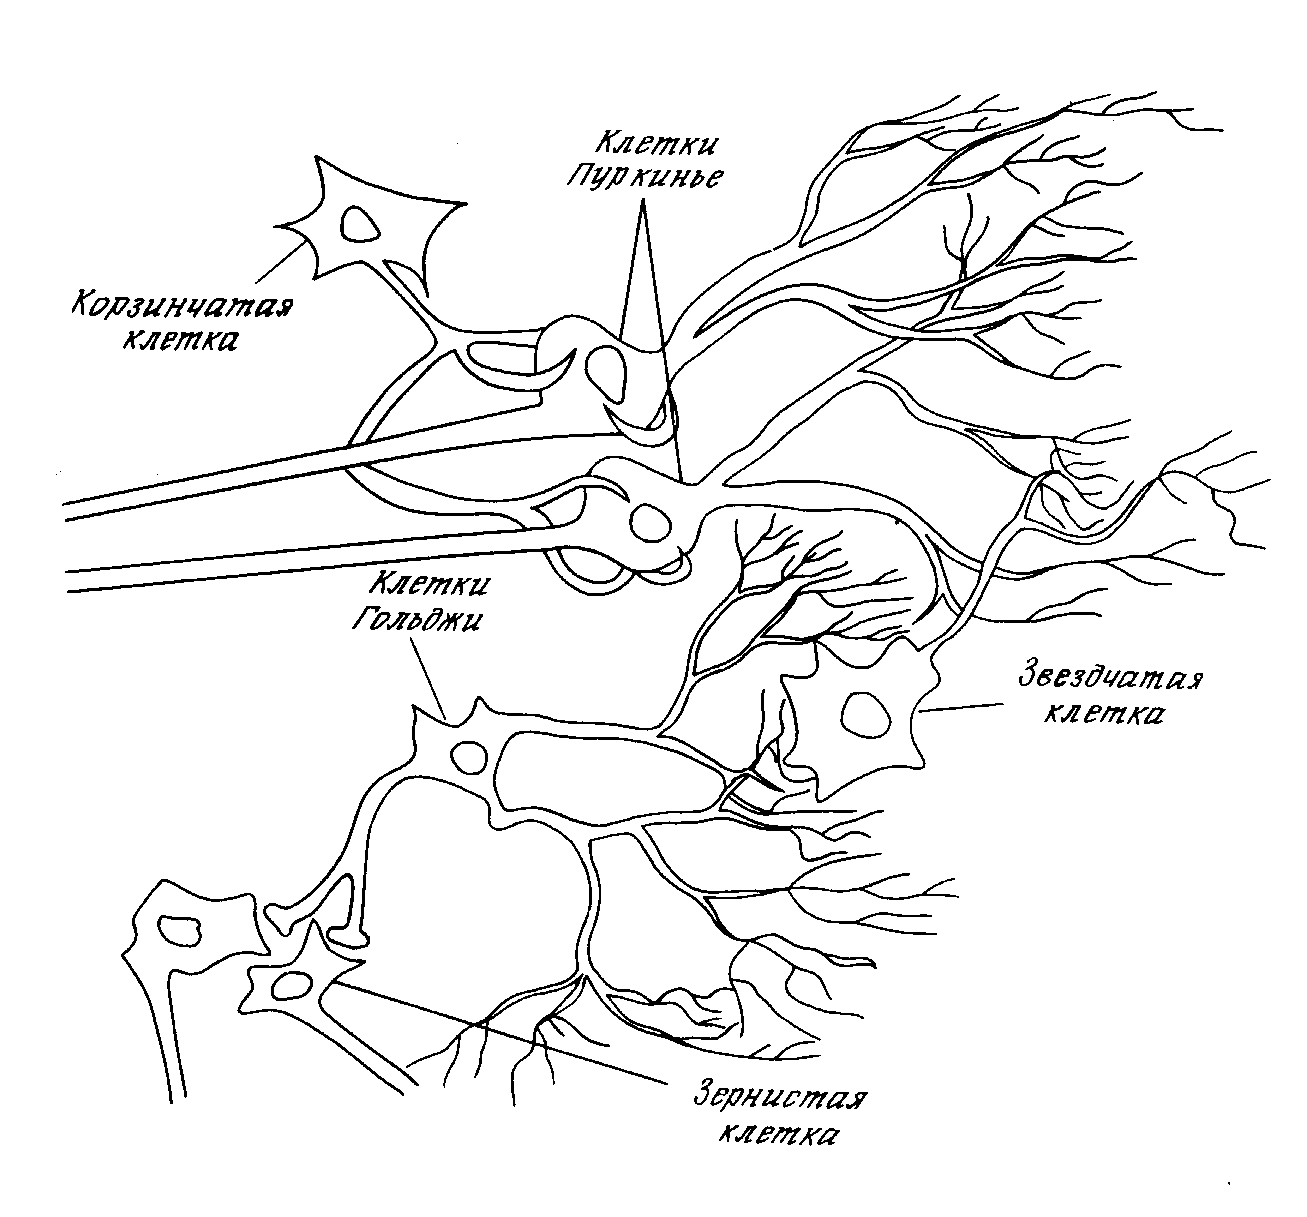
Были идентифицированы сотни типов нейронов, каждый со своей характерной формой тела клетки (рис. А.2), имеющей обычно от 5 до 100 мкм в диаметре. В настоящее время этот факт рассматривается как проявление случайности, однако могут быть найдены различные морфологические конфигурации, отражающие важную функциональную специализацию. Определение функций различных типов клеток является в настоящее время предметом интенсивных исследований и основой понимания обрабатывающих механизмов мозга.
Дендриты. Большинство входных сигналов от других нейронов попадают в клетку через дендриты, представляющие собой густо ветвящуюся структуру, исходящую от тела клетки. На дедритах располагаются синаптические соединения, которые получают сигналы от других аксонов. Кроме этого, существует огромное количество синаптичес-ких связей от аксона к аксону, от аксона к телу клетки и от дендрита к дендриту; их функции не очень ясны, но они слишком широко распространены, чтобы не считаться с ними.
В отличие от электрических цепей, синаптические контакты обычно не являются физическими или электрическими соединениями. Вместо этого имеется узкое пространство, называемое синаптической щелью, отделяющее дендрит от передающего аксона. Специальные химические вещества, выбрасываемые аксоном в синаптическую щель, диффундируют к дендриту. Эти химические вещества, называемые нейротрансмиттерами, улавливаются специальными рецепторами на дендрите и внедряются в тело клетки.
Определено более 30 видов нейротрансмиттеров. Некоторые из них являются возбуждающими и стремятся вызывать возбуждение клетки и выработать выходной импульс. Другие являются тормозящими и стремятся подавить такой импульс. Тело клетки суммирует сигналы, полученные от дендритов, и если их результирующий сигнал выше порогового значения, вырабатывается импульс, проходящий по аксону к другим нейронам.
Аксон. Аксон может быть как коротким (0,1 мм), так и превышать длину 1 м, распространяясь в другую часть тела человека. На конце аксон имеет множество ветвей, каждая из которых завершается синапсом, откуда сигнал передается в другие нейроны через дендриты, а в некоторых случаях прямо в тело клетки. Таким образом, всего один нейрон может генерировать импульс, который возбуждает или затормаживает сотни или тысячи других нейронов, каждый из которых, в свою очередь, через свои дендриты может воздействовать на сотни или тысячи других нейронов. Таким образом, эта высокая степень связанности, а не функциональная сложность самого нейрона, обеспечивает нейрону его вычислительную мощность.
Синаптическая связь, завершающая ветвь аксона, представляет собой маленькие утолщения, содержащие сферические структуры, называемые синаптическими пузырьками, каждый из которых содержит большое число нейротрансмиттерных молекул. Когда нервный импульс приходит в аксон, некоторые из этих пузырьков высвобождают свое содержимое в синаптическую щель, тем самым инициализируя процесс взаимодействия нейронов (рис. А.З).
Кроме распространения такого бинарного сигнала, обеспечиваемого возбуждением первого импульса, в нейронах при слабой стимуляции могут также распространяться электрохимические сигналы с последовательной реакцией. Локальные по своей природе, эти сигналы быстро затухают с удалением от места возбуждения, если не будут усилены. Природа использует это свойство первых клеток путем создания вокруг аксонов изолирующей оболочки из шванковских клеток. Эта оболочка, называемая миелиновой, прерывается приблизительно через каждый миллиметр вдоль аксона узкими разрывами, называемыми узлами, или перехватами Ранвье. Нервные импульсы, приходящие в аксон, передаются екачкообразно от узла к узлу. Таким образом, аксону нет нужды расходовать энергию для поддержания своего химического градиента по всей своей длине. Только оставшиеся неизолированными перехваты Ранвье являются объектом генерации первого импульса; для передачи сигнала от узла к узлу более эффективными являются градуальные реакции. Кроме этого свойства оболочки, обеспечивающего сохранение энергии, известны ее другие свойства. Например, миелинизирован-ные нервные окончания передают сигналы значительно быстрее немиелинизированных. Обнаружено, что некоторые болезни приводят к ухудшению этой изоляции, что, по-видимому, является причиной других болезней.
Мембрана клетки
В мозгу существует 2 типа связей: передача химических сигналов через синапсы и передача электрических сигналов внутри нейрона. Великолепное сложное действие мембраны создает способность клетки вырабатывать и передавать оба типа этих сигналов.
Мембрана клетки имеет около 5 нм толщины и состоит из двух слоев липидных молекул. Встроенные в мембрану различные специальные протеины можно разделить на пять классов: насосы, каналы, рецепторы, энзимы и структурные протеины.
Насосы активно перемещают ионы через мембрану клетки для поддержания градиентов концентрации. Каналы пропускают ионы выборочно и управляют их прохождением через мембрану. Некоторые каналы открываются или закрываются распространяющимся через мембрану электрическим потенциалом, тем самым обеспечивая быстрое и чувствительное средство изменения ионных градиентов. Другие типы каналов управляются химически, изменяя свою проницаемость при получении химических носителей.
Рецепторами являются протеины, которые распознают и присоединяют многие типы молекул из окружения клетки с большой точностью. Энзимы оболочки ускоряют разнообразные химические реакции внутри или около клеточной мембраны. Структурные протеины соединяют клетки и помогают поддерживать структуру самой клетки.
Внутренняя концентрация натрия в клетке в 10 раз ниже, чем в ее окружении, а концентрация калия в 10 раз выше. Эти концентрации стремятся к выравниванию с помощью утечки через поры в мембране клетки. Чтобы сохранить необходимую концентрацию, протеиновые молекулы мембраны, называемые натриевыми насосами, постоянно отсасывают натрий из клетки и подкачивают калий в клетку. Каждый насос перемещает приблизительно две сотни ионов натрия и около ста тридцати ионов калия в секунду. Нейрон может иметь миллионы таких насосов, перемещающих сотни миллионов ионов калия и натрия через мембрану клетки в каждую секунду. На концентрацию калия внутри ячейки влияет также наличие большого числа постоянно открытых калиевых каналов, т.е. протеиновых молекул, которые хорошо пропускают ионы калия в клетку, но препятствуют прохождению натрия. Комбинация этих двух механизмов отвечает за создание и поддержание динамического равновесия, соответствующего состоянию нейрона в покое.
Градиент ионной концентрации в мембране клетки вырабатывает внутри клетки электрический потенциал -70 мВ относительно ее окружения. Чтобы возбудить клетку (стимулировать возникновение потенциала действия) синаптические входы должны уменьшить этот уровень до приблизительно -50 мВ. При этом потоки натрия и калия сразу направляются в обратную сторону; в течение миллисекунд внутренний потенциал клетки становится +50 мВ относительно внешнего окружения. Это изменение полярности быстро распространится через клетку, заставляя нервный импульс распространиться по всему аксону до его пресинаптических окончаний. Когда импульс достигнет окончания аксона, открываются управляемые напряжением кальциевые каналы. Это вызывает освобождение нейротран-смиттерных молекул в синаптическую щель и процесс распространяется на другие нейроны. После генерации потенциала действия клетка войдет в рефракторный период на несколько миллисекунд, в течении которого она восстановит свой первоначальный потенциал для подготовки к генерации следующего импульса.
Рассмотрим этот процесс более детально. Первоначальное получение нейротрансмиттерных молекул снижает внутренний потенциал клетки с -70 до -50 мВ. При этом зависимые от потенциала натриевые каналы открываются, позволяя натрию проникнуть в клетку. Это еще более уменьшает потенциал, увеличивая приток натрия в клетку, и создает самоусиливающийся процесс, который быстро распространяется в соседние области, изменяя локальный потенциал клетки с отрицательного до положительного.
Через некоторое время после открытия натриевые каналы закрываются, а калиевые каналы открываются. Это создает усиленный поток ионов калия из клетки, что восстанавливает внутренний потенциал -70 мВ. Это быстрое изменение напряжения образует потенциал действия, который быстро распространяется по всей длине аксона подобно лавине.
Натриевые и калиевые каналы реагируют на потенциал клетки и, следовательно, можно сказать, что они управляют напряжением. Другой тип каналов является химически управляемым. Эти каналы открываются только тогда, когда специальная нейротрансмиттерная молекула попадает на рецептор, и они совсем не чувствительны к напряжению.
Такие каналы обнаруживаются в постсинаптических мембранах на дендритах и ответственны за реакцию нейронов на воздействие различных нейротрансмиттерных молекул. Чувствительный к ацетилхолину белок (ацетилхолиновый рецептор) является одним из таких химических каналов. Когда молекулы ацетилхолина выделяются в синаптическую щель, они диффундируют к ацетилхолиновым рецепторам, входящим в постсинаптическую мембрану. Эти рецепторы (которые также являются каналами) затем открываются, обеспечивая свободный проход как калия, так и натрия через мембрану. Это приводит к кратковременному локальному уменьшению отрицательного внутреннего потенциала клетки (формируя положительный импульс). Так как импульсы являются короткими и слабыми, то чтобы заставить клетку выработать необходимый электрический потенциал, требуется открытие многих таких каналов.
Ацетилхолиновые рецепторы-каналы пропускают и натрий, и калий, вырабатывая тем самым положительные импульсы. Такие импульсы являются возбуждающими, поскольку они способствуют появлению необходимого потенциала. Другие химически управляемые каналы пропускают только калиевые ионы из клетки, производя отрицательный импульс; эти импульсы являются тормозящими, поскольку они препятствуют возбуждению клетки.
Гамма-аминомасляная кислота (ГАМК) является одним из более общих тормозных нейротрансмиттеров. Обнаруженная почти исключительно в головном и спинном мозге, она попадает на рецептор канала, который выборочно пропускает ионы хлора. После входа эти ионы увеличивают отрицательный потенциал клетки и тем самым препятствуют ее возбуждению. Дефицит ГАМК связан с хореей Хантингтона, имеющей нейрологический синдром, вызывающий бесконтрольное движение мускулатуры. К несчастью, гематоэнцефалический барьер препятствует увеличению снабжения ГАМК, и как выйти из этого положения, пока неизвестно. Вероятно, что и другие нейрологические и умственные растройства будут наблюдаться при подобных нарушениях в нейротрансмиттерах или других химических носителях. Уровень возбуждеия нейрона определяется кумулятивным эффектом большого числа возбуждающих и тормозящих входов, суммируемых телом клетки в течение короткого временного интервала. Получение возбуждающей нейротрансмиттерной молекулы будет увеличивать уровень возбуждения нейрона; их меньшее количество или смесь тормозящих молекул уменьшает уровень возбуждения. Таким образом, нейронный сигнал является импульсным или частотно-модулируемым (ЧМ). Этот метод модуляции, широко используемый в технике (например, ЧМ-радио), имеет значительные преимущества при наличии помех по сравнению с другими способами. Исследования показали изумляющую сложность биохимических процессов в мозге. Например, предполагается наличие свыше 30 вешеств, являющихся нейротрансмиттерами, и большое количество рецепторов с различными ответными реакциями. Более того, действие определенных нейротрансмиттерных молекул зависит от типа рецептора в постсинаптической мембране, некоторые нейротрансмиттеры могут быть возбуждающими для одного синапса и тормозящими для другого. Кроме того, внутри клетки существует система «вторичного переносчика», которая включается при получении нейротрансмиттера, что приводит к выработке большого количества молекул циклического аденозинтрифосфата, тем самым производя значительное усиление физиологических
реакций.
Исследователи всегда надеются найти простые образы для унификации сложных и многообразных наблюдений. Для нейробиологических исследований такие простые образы до сих пор не найдены. Большинство результатов исследований подвергаются большому сомнению прежде, чем ими воспользуются. Одним из таких результатов в изучении мозга явилось открытие множества видов электрохимической деятельности, обнаруженных в работе мозга; задачей является их объединение в связанную функциональную модель.
КОМПЬЮТЕРЫ И ЧЕЛОВЕЧЕСКИЙ МОЗГ
Существует подобие между мозгом и цифровым компьютером: оба оперируют электронными сигналами, оба состоят из большого количества простых элементов, оба выполняют функции, являющиеся, грубо говоря, вычислительными. Тем не менее существуют и фундаментальные отличия. По сравнению с микросекундными и даже наносекундными интервалами вычислений современных компьютеров нервные импульсы являются слишком медленными. Хотя каждый нейрон требует наличия миллисекундного интервала между передаваемыми сигналами, высокая скорость вычислений мозга обеспечивается огромным числом параллельных вычислительных блоков, причем количество их намного превышает доступное современным ЭВМ. Диапазон ошибок представляет другое фундаментальное отличие: ЭВМ присуща свобода от ошибок, если входные сигналы безупречно точны и ее аппаратное и программное обеспечение не повреждены. Мозг же часто производит лучшее угадывание и приближение при частично незавершенных и неточных входных сигналах. Часто он ошибается, но величина ошибки должна гарантировать наше выживание в течение миллионов лет.
Первые цифровые вычислители часто рассматривались как «электронный мозг». С точки зрения наших текущих знаний о сложности мозга, такое заявление оптимистично, да и просто не соответствует истине. Эти две системы явно различаются в каждой своей части. Они оптимизированы для решения различных типов проблем, имеют существенные различия в структуре и их работа оценивается различными критериями.
Некоторые говорят, что искусственные нейронные сети когда-нибудь будут дублировать функции человеческого мозга. Прежде чем добиться этого, необходимо понять организацию и функции мозга. Эта задача, вероятно, не будет решена в ближайшем будущем. Надо отметить то, что современные нейросети базируются на очень упрощенной модели, игнорирующей большинство тех знаний, которые мы имеем о детальном функционировании мозга. Поэтому необходимо разработать более точную модель, которая могла бы качественнее моделировать работу мозга.
Прорыв в области искусственных нейронных сетей будет требовать развития их теоретического фундамента. Теоретические выкладки, в свою очередь, должны предваряться улучшением математических методов, поскольку исследования серьезно тормозятся