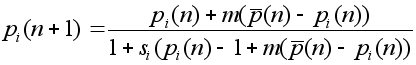Математические модели естествознания
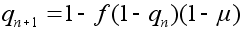 .
Выше
было показано,
что
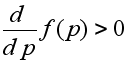 для всех
 .
Поскольку
параметр
 ,
правая часть
отображения
(24) является также
монотонно
растущей функцией
для
.
На основе этого
факта выше было
доказано, что
все траектории
одномерного
отображения
стремятся к
состояниям
равновесия.
Рассмотрим
некоторые
частные случаи.
Пусть отбор
действует
против особей
рецессивного
гомозиготного
генотипа
 .
Будем считать,
что относительные
приспособленности
генотипов
 и
 равны между
собой и выше
относительной
приспособленности
генотипа
.
Положим:
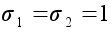 и
 .
Отображение
(24) приобретает
вид:
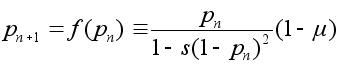 .
(25)
Его
неподвижные
точки суть
 и
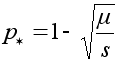 .
Второе состояние
равновесия
существует
только в случае
 .
Для малой окрестности
нуля имеем:
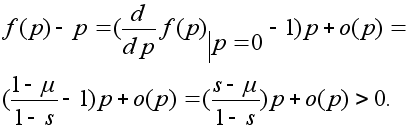
Поскольку
на интервале
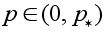 нет состояний
равновесия,
то
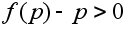 для всех
.
В результате,
траектории
с начальным
условием
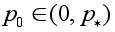 стремятся
к состоянию
равновесия
 ,
т.е.
 при
 .
Далее,
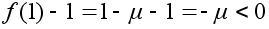 .
Следовательно,
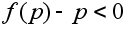 для всех
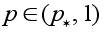 .
Траектории
с начальным
условием
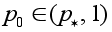 также стремятся
к этому состоянию
равновесия,
которое оказывается
глобально
устойчивым.
Напомним, что
устойчивое
состояние
равновесия,
для которого
частоты обоих
аллелей ненулевые,
называется
балансированным
полиморфизмом.
Выше было показано,
что для случая,
когда отбор
действует
против рецессивных
гамет и отсутствуют
мутации, полиморфизм
невозможен
(рецессивный
аллель вытесняется
из популяции).
Если рецессивный
аллели
 летальны
 ,
то значения
равновесных
частот суть
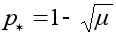 и
 .
При достаточно
типичном темпе
мутирования
 получаем равновесную
частоту рецессивного
летального
аллеля
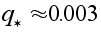 .
Это достаточно
высокая вероятность
возникновения
генетического
заболевания
( в среднем три
особи на тысячу).
Если
 (отбор против
рецессивных
гомозигот менее
интенсивен
нежели мутации),
то состояние
равновесия
отсутствует
и отображение
(25) имеет единственную
неподвижную
точку
,
к которой,
естественно,
сходятся все
траектории.
Таким образом,
несмотря на
лучшую приспособленность
обладателей
аллеля
 ,
засчет мутаций
происходит
вытеснение
этого аллеля.
Рассмотрим
теперь случай,
когда гомозиготный
геннотип
имеет самую
высокую относительную
приспособленность.
Пусть
 ,
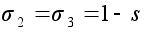 ,
где
 .
Преобразуем
правую часть
уравнение
эволюции (24).
Последовательно
получаем
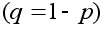 :
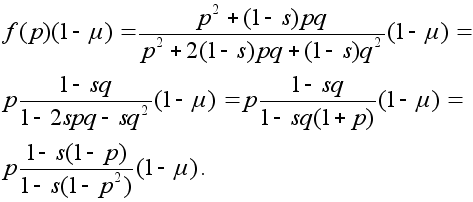
Далее,
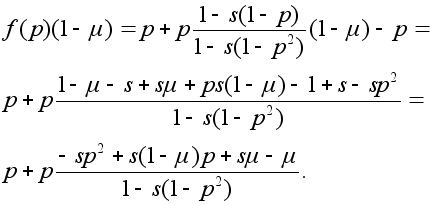
Тем самым, отображение (24) приобретает вид:
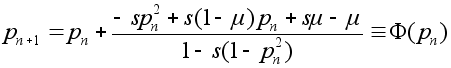 .
Одна
из неподвижных
точек отображения,
очевидно,
.
Две другие
определяются
из уравнения:
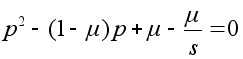 .
Получаем:
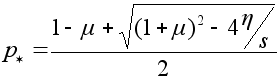 ,
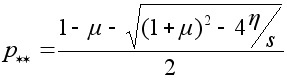 .
Оба
корня существуют
поскольку
 .Здесь
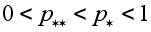 .
Поскольку
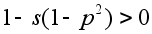 для
 ,
то знак разности
 определяется
знаком квадратного
трехчлена
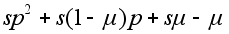 .
Если
,
то
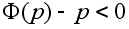 .
Если же
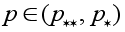 ,
то
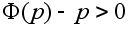 .
Наконец,
для
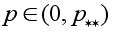 .
(См. Рисунок.)Тем
самым, при начальной
точке
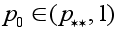 траектории
при
.
Состояние
полиморфизма
,
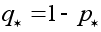 устойчиво
(полиморфизм
балансирован).
Соответственно,
состояние
равновесия
 неустойчиво.
Если начальная
точка
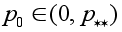 ,
то соответствующая
траектория
стремится к
нулю. Однако,
нужно заметить,
что здесь мы
выходим за
рамки применимости
модели. При
больших концентрациях
аллеля
нужно учитывать
мутации от
аллелей
к аллелям
.
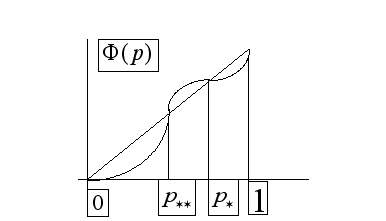
-
Миграции
Миграции, или поток генов возникают, когда особи одной популяции перемещаются в другую и скрещиваются с членами второй популяции. Поток генов не меняют частоты аллелей у вида в целом. Однако, частоты могут меняться в локальных популяциях, если исходные частоты различны у старожилов и пришельцев.
Рассмотрим
простейшую
модель, описывающую
локальную
популяцию, в
которую с
определенной
частотой мигрируют
особи из окружающей
популяции и
скрещиваются
со старожилами.
Предположим,
что частота
аллеля
 в окружающей
популяции
постоянна и
равна
 .
Пусть
 -вероятность
обнаружения
пришельца среди
особей текущего
поколения (доля
мигрантов). Эта
вероятность
характеризует
интенсивность
миграции. Считаем,
что доля пришельцев
для всех поколений
одна и та же.
Обозначим
частоту аллеля
для локальной
популяции через
 .
Тогда частота
для следующего
поколения суть:
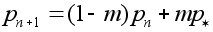 .
Здесь
 -вероятность
того, что гамета
 -ого поколения
является старожилом
и обладает
аллелем
.
Соответственно,
 -вероятность
того, что гамета
является пришельцем
и имеет аллель
.
Положим:
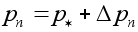 .
В результате
получим:
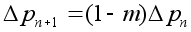 ,
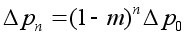 .
Поскольку
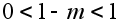 ,
то то с ростом
номера поколения
 и
 .
Частота аллеля
в
локальной
популяции
уравниваетсяс
его частотой
во внешней
популяции.
Полученную
формулу можно
использовать
для оценки
интенсивности
потока генов.
Рассмотрим
пример.
В
США потомство
от смешанных
браков между
белыми и темнокожими
принято относить
к темнокожему
населению.
Следовательно,
смешанные браки
можно рассматривать
как поток генов
из белой в темнокожую
популяцию.
Частота аллеля
 ,
контролирующего
резус фактор,
у белого населения
США составляет
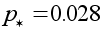 .
В африканских
племенах, от
которых происходит
современное
темнокожее
население США,
частота этого
аллеля
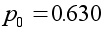 .
Предки современных
темнокожих
США были вывезены
из Африки примерно
 лет назад (около
 поколений),
следовательно
на данный момент
 .
Частота аллеля
у современного
темнокожего
населения США
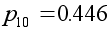 .
Получаем:
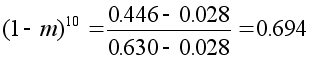 .
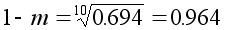 ,
 .
Число
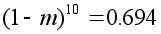 -вероятность
того, что данный
аллель не являлся
мигрантом ни
в одном из десяти
предшествующих
поколений. Тем
самым, современное
темнокожее
население США
наследовало
около
 генов от своих
африканских
предков, а
 генов получило
от белых предков.
Неудивительно,
что темнокожие
американцы
по внешнему
виду существенно
отличаются
от африканцев.
Отметим, что
число
 примерно
соответствует
проценту смешанных
браков.
Приведенные вкладки носят приближенный характер. Если в аналогичных расчетах использовать частоты других аллелей, то получатся несколько другие результаты. Кроме того, интенсивность потока генов в разных регионах США различна. Однако, тенденция к выравниванию частот аллелей между темнокожим и белым населением сохраняется.
Рассмотрим
островную
модель Райта.
Эта модель
учитывает как
миграции, так
и процессы
отбора. Она
описывает
популяцию
аллелей
и
 ,
которая состоит
из
 субпопуляций.
Обозначим через
 ,
где
 ,
доли субпопуляций
(вероятности
того, что что
выбранный
аллель принадлежит
 -ой популяции).
Будем считать,
что эти доли
из поколения
в поколение
неизменны.
Субпопуляции
связаны между
собой меграционными
процессами.
Непосредственно
после появления
на свет нового
поколения из
каждой субполяции
с вероятностью
аллели (их носители)
совершают
путешествие
в некий “общий
котел” аллелей
(внешний мир).
Считаем, что
вероятность
миграции для
всех субпопуляций
одна и та же. В
“общем котле”
аллели перемешиваются,
“забывают”
о своем “географическом”
происхождении
и мигрируют
в субпопуляции.
Пусть вероятность
обнаружить
вернувшихся
путешественников
(доля мигрантов)
для всех субпопуляций
одна и та же и
равна
,
т.е. совпадает
с вероятностью
исхода юных
аллелй из
субпопуляций.
Далее, в субпопуляциях
начинается
процесс отбора.
Он происходит
на уровне аллелей
(для генотипов
имеет место
отбор геометрического
типа). Пусть
 и
 -вероятности
того, что в
-ой субпопуляции
соответственно
аллели
и
доживают до
этапа размножения
(эти числа также
называются
коэффициентами
отбора).
Получим
эволюционные
уравнения.
Пусть
 и

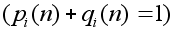 -частоты аллелей
и
в
-ой субпопуляции
в момент появления
на свет
-ого поколения.
Средние частоты
аллелей
и
во всей популяции
в момент рождения
-ого поколения
суть:
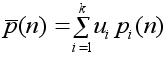 ,
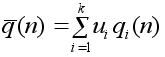 .
(26)
Эти
же числа -частоты
аллелей в “общем
котле”. Для
произвольной
-ой субпопуляции
после завершения
миграционных
процессов имеют
место следующие
частоты аллелей
и
:
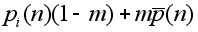 ,
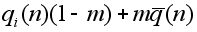 .
Полная
вероятность
того, что после
завершения
миграции в
-ой субпопуляции
аллель
-ого поколения
доживет до
этапа размножения
определяется
следующим
образом:
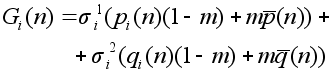 .
(27)
Используя
формулу Бейеса
(теорема гипотез)
получим частоты
и
в
-ом поколении
для
-ой субпопуляции
к моменту начала
этапа размножения:
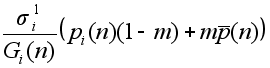 ,
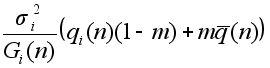 .
Такие
же частоты
имеют гаметы
-ого поколения
и вновь появившиеся
аллели
и
следующего
 -ого поколения.
Тем самым, получаем
эволюцинные
уравнения для
частот:
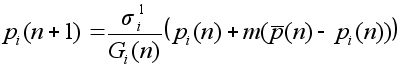 ,
(28)
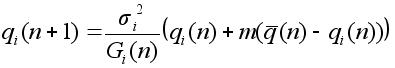 .
(29)
где
 -номера субпопуляций.
В (28), (29) средние
частоты
 и
 заданы формулами
(26), а нормировочные
коэффициенты
 -формулами
(27). Отметим, что
отображение
(28), (29) не меняет
вид после замены
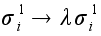 и
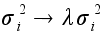 .
В связи с этим
положим
 и
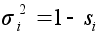 ,
где
 .
Если
 ,
то аллель
имеет преимущество
в борьбе за
существование
перед аллелем
.
Если же
 ,
то преимущество
- за аллелем
.
Коэффициент
легко преобразовать
к виду:
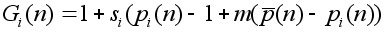 .
В результате формулы (28) приобретают вид: