Математические модели естествознания
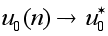 и
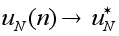 при
 .
В предельной
точке приращения
нет, поэтому
 для
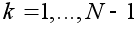 .
Полученные
результаты
означают, что
в пределе в
популяции
остается либо
аллель
 ,
либо аллель
 .
Действительно,
вероятность
события, что
в популяции
присутствуют
оба аллеля
равна нулю.
Вычислим
значения
 и
 .
Рассмотрим
математическое
ожидание числа
аллелей
в
 -ом
эффективном
поколении:
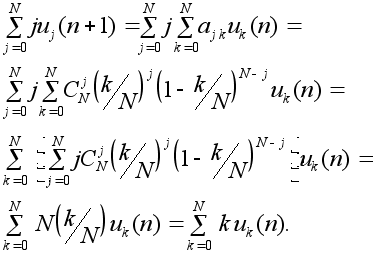
Таким образом, имеет место важнейшее соотношение для математического ожидания:
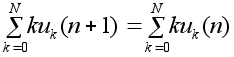 ,
(37)
Отметим, что цепи Маркова, для которых выполнено данное соотношение , называются мартингалами. (Совершенно наивно интерпретировать (37), как то, что в среднем число аллелей сохраняется, т.к. один из аллелей вытесняется из популяции.)
Напомним,
что для родителей,
давших начало
нулевому поколению,
аллели
наблюдались
с априорной
частотой
 .
Следовательно,
математическое
ожидание числа
аллелей
в
нулевом поколении
суть
 .
В предельном
состоянии
математическое
ожидание равно
 .
В результате
получает вероятность
 события, что
из популяции
будет вытеснен
аллель
и, соответственно,
будет фиксирован
аллель
.
Сделаем
следующее
замечание.
Пусть эффективная
популяция
нулевого поколения
оказалась в
состоянии
 ,
т.е. число аллелей
равно
 .
Тогда вероятность
фиксации аллеля
будет равна
 .
Таким образом,
результаты
опыта позволяют
уточнить априорную
вероятность.
Можно
вычислить
математическое
ожидание числа
поколений, по
прошествии
которого один
из аллелей
будет вытеснен
из популяции.
Оказывается,
что это число
 задается формулой:
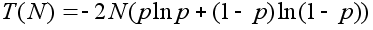 ,
где
-априорная
частота аллеля
у
родителей,
давших начало
нулевому поколению.
Кумулятивные
эффекты, или
эффекты накопления
изменений в
процессе дрейфа
генов изучались
экспериментально.
Питер Ф. Бьюри
работал со 107
изолированными
популяциями
мух -дрозофил.
В каждой из них
случайным
образом отбиралось
8 самцов и 8 самок,
которые давали
начало следующему
поколению. Тем
самым, эффективная
численность
популяции
составляла
16 особей, или
же 32 аллеля. В
начале эксперимента
все особи были
гетерозиготны,
т.е. априорные
частоты аллелей
были равны 0.5.
Фиксация аллеля
в одной из популяций
впервые произошла
в четвертом
поколении.
Число популяций
с фиксированными
аллелями постепенно
расло на протяжении
19 поколений.
Затем эксперимент
был прекращен.
В 19 -ом поколении
в 30 популяциях
был фиксирован
один аллель,
а 28 популяциях
-другой. Если
бы эксперимент
продолжался
дальше, то в
конце концов
аллели были
бы фиксированы
во всех популяциях.
Для обоих аллелей
число популяций,
в которых они
фиксированы,
было бы одинаковым.
Отметим, что
математическое
ожидание числа
поколений, по
прошествии
которого один
из аллелей
фиксируется,
для данного
случая суть
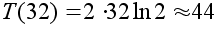 .
Если популяция многочисленна, то фактор дрейфа генов оказывает весьма незначительное влияние на частоты аллелей по сравнению с процессами отбора, мутации и миграции. Для маллых популяций, наоборот, дрейф генов существенен.
Предельный случай дрейфа генов возникновение новой популяции, первоначально состоявшей лишь из нескольких особей. Такой процесс Эрнст Майр назвал эффектом основателя. Популяции многих видов, обитающих на океанических островах, в настоящее насчитывают миллионы особей. Однако они происходят от нескольких, случайно попавших туда особей. В результате ошибок выборки частоты аллелей у основателей новой популяции могут существенно отличаться от частот аллелей в популяции, из которой произошли основатели. Это может наложить отпечаток на дальнейшую эволюцию.
Случайные изменения частот аллелей возникают также в случае, если популяция в своем развитии проходит “бутылочное горлышко”. Когда природные условия существования становятся неблагоприятными, численность популяции резко сокращается. В дальнейшем популяция может восстановить свою численность. Во время прохождения “бутылочного горлышка” частоты аллелей могут сильно измениться вследствие дрейфа. В дальнейшем эти изменения сохраняются на протяжении поколений. Естественно, особенно они заметны, если популяция находится в изоляции, т.е. отсутствует миграция генов извне. Известны сообщества такого рода в человеческом обществе.
Вопросы экзамена
Основные понятия и определения генетики.
Законы Менделя
Закон Харди- Вайнберга
Принцип стационарности. Кадрильный закон. Неизбежность концепции гена. Вопрос о группах крови.
Инбридинг.
Сцепление и кроссинговер.
Наследование признаков, сцепленных с полом.
Отбор в менделевской бесполой диплоидной популяции.
Исследование эволюционных уравнений.
Возрастание средней приспособленности.
Мутации
Взаимодействие отбора и мутаций.
Миграции.
Дрейф генов
Возбудимые системы.
Натриево - калиевый цикл.
Аксон Ходжкина - Хаксли.
Структура и функции нейронов.
Формальный нейрон Мак-Каллока - Питтса.
Однослойный персептрон - простейшая модель ассоциативной памяти.