Математические модели естествознания
 .
Однако, чуть
позже начинает
уменьшаться
величина
 .
Это замедляет
рост
,
тем более, что
уменьшается
разность
 .
Одновременно
растет величина
 .
Соответствующее
слагаемое
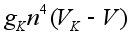 в уравнении
(6) отрицательно,
т.к.
 и
 .
Существует
момент времени
 ,
где
 .
Это точка максимума
потенциала
действия. Значение
мембранного
потенциала
 относительно
близко к
 .
После прохождения
точки максимума
значение производной
 определяется
значением
слагаемого
и становится
отрицательным.
Скорость убывания
мембранного
потенциала
на нисходящем
участке спайка
меньше по абсолютной
величине, чем
скорость роста
на восходящем
участке. Нисходящий
участок продолжительнее
восходящего.
В дальнейшем
значение
становится
отрицательным,
а после этого
 .
Величины
 ,
 ,
также стремятся
к своим равновесным
значениям.
Процесс генерации
спайка закончен.
Особо
подчеркнем
значимость
факта, что система
(6) -(7) обладает
пороговыми
свойствами.
Существует
такое критическое
значение
 мембранного
потенциала,
что при начальном
отклонении
мембранного
потенциала
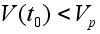 с течением
времени значение
.
Если же
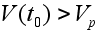 ,
то через некоторое
время (его называют
скрытым, или
латентным
периодом)
генерируется
спайк. Мадель
адекватно
отражает пороговые
свойства реального
аксона. Если
воздействовать
на мембрану
кратковременным
толчком деполяризующего
тока (отклоняющего
мембранный
потенциал в
положительном
направлении),
то после слабого
воздействия
мембранный
потенциал
возвращается
в равновесное
состояние.
Вследствие
достаточно
сильного воздействия
спустя латентный
период генерируется
спайк.
Обсудим еще одно свойство аксона. Гигантские аксоны достигают длины нескольких десятков сантиметров. Мебранный потенциал на разных участках аксона может различаться. Аксон представляет собой так называемую распределенную систему. Если подействовать на некоторый участок аксона допороговым деполяризующим толчком тока, то мембранный потенциал на этом и некотором примыкаюшем к нему участке отклонится от равновесного состояния в положительном направлении. Такое отклонение называется локальным ответом. Возмущение с течением времени затухает, одновременно, как капля, растекаясь по аксону. В результате локальные ответы, возникшие при стимулировании различных участков, могут накладываться друг на друга, т.е., как говорят, суммироваться по пространству. Если же на участок аксона повторно подается деполяризирующий ток, то новый локальный ответ накладывается на предыдущий. Говорят, что происходит временное суммирование. Локальные ответы градуальны. Их амплитуда зависит от силы стимула (точнее, силы -длительности). В случае, когда локальный ответ в результате суммации, или же после достаточно сильного одноразового локального воздействия достигает порогового уровня, запускаются механизмы генерации потенциала действия. Зародившись локально, потенциал действия распространяется по аксону.
Явление распространения объясняется следующим образом. Цитоплазма - электролит, а, следовательно, хороший проводник. Если между точками существуют ненулевые разности потенциалов, то вдоль мембраны возникают токи (вблизи поверхности). Они направлены от точек с более высоким потенциалом к точкам, где он меньше, и подчиняются закону Ома. Вследствие этого потенциал на участках, прилегающих, к области генерации спайка, растет и достигает порогового значения. В результате эти участки сами генерируют потенциалы действия. Процесс распространяется вдель аксона.
Проведение нервных импульсов обладает важной особенностью. При “столкновении” они аннигилируют, т.е. уничтожаются. С помощью локального воздействия возбудим аксон в двух точках. По нему будут распространяться четыре импульса, два из которых движутся во встречных направлениях. Данные импульсы встретятся и не пропустят друг друга. Это связано с тем, что мембрана обладает следующим свойством. Во время потенциала действия и некоторое время после его завершения она не реагирует на воздействие. В частности, после завершения спайка некоторое время не способна сгенерировать нового потенциала действия. Данное состояние называется абсолютной рефрактерностью. Отметим, что постепенно абсолютная рефрактерность сменяется относительной. Для того, чтобы инициировать потенциал действия в состоянии относительной рефрактерности, нужно применить более мощный стимул, нежели в состоянии покоя.
Для
описания процесса
распространения
потенциала
действия вдоль
аксона А. Ходжкин
и А. Хксли модернизировали
уравнение (6).
Пусть
 -координата
точки вдоль
аксона, а
 -значение мембранного
потенциала
в этой точке.
Используется
закон Ома, согласно
которому ток
через сечение
пропорционален
градиенту
напряжения
(в одномерном
случае -производной).
Ток через сечение
равен
 ,
где направление
выбрано в сторону
возрастания
,
коэффициент
 -проводимость.
Выделим участок
аксона, координаты
точек которого
заключены в
интервале
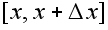 .
Суммарный ток
через сечения
и
 равен
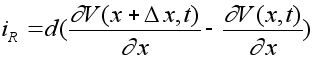 .
Используя
формулу Лагранжа
получим:
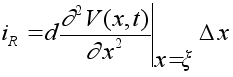 ,
где
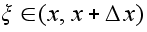 .
Через поверхность
мембраны выбранного
участка аксона
проходят емкостной
 ,
натриевый
 ,
калиевый
 токи, а также
ток утечки
 .
Пусть
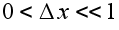 .
Суммарный
мембранный
ток приближенно
равен
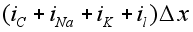 .
Привлекая закон
Кирхгофа, получим:
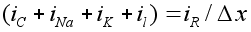 .
Используя
приведенные
ранее формулы
(4), (5) для мембранных
токов и устремляя
 к нулю, приходим
к уравнению:
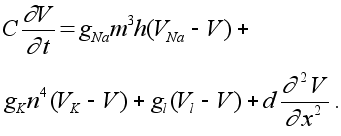 (10)
Его
часто называют
уравнением
аксона Ходжкина
-Хаксли. В (10) функции
 ,
 ,
 как и выше
подчиняются
уравнениям
(7) -(9).
А.
Ходжкин и А.
Хаксли исследовали
так называемые
автоволновые
решения системы
уравнений, т.
е. решения типа
бегущих волн:
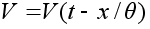 (аналогично
для
,
,
).
Здесь параметр
 -скорость
распространения
волны. После
подстановки
в (11) для
получается
обыкновенное
дифференциальное
уравнение:
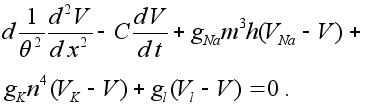 (11)
Система
(7) -(9), (11) исследовалась
численно. Методом
подбора было
найдено значение
скорости
,
при которой
система уравнений
имела приемлемое
по мнению авторов
решение. Параметры
полученного
при исследовании
системы уравнений
распространяющегося
потенциала
действия оказались
близкими к
реально надлюдаемым
в эксперименте.
Скорость распространения импульса по гигантскому аксону относительно не велика (по сравнению с аналогичными по назначению проводниками нервных импульсов у человека). Она растет с увеличением диаметра аксона. Увеличение диаметров аксонов избрала природа для высокоскоростного проведения импульсов у беспозвоночных. Однако, когда организму нужна не только быстрота реакции, но и огромное количество связей, гигантские аксона становятся не приемлимыми. Например, в зрительном нерве, где больше миллиона связей, для больших аксонов не хватило бы места. Длинные аксоны у человека и позвоночных животных покрыты достаточно толстым липидным слоем -миелиновой оболочкой (точнее, они обвиты клетками содержащими и вырабатывающими миелин). В миелиновой оболочке присутствуют регулярно расположенные разрывы, где мембрана аскона оголена. Разрывы называются перехватами Ранвье. Миелинизированные участки иеют длину порядка 1 -2 мм. Протяженность перехватов Ранвье около 1 мкм. Перехваты Равье способны генерировать спайки. Миелинизиро-ванные участки обладают емкостью и омическим сопротивлением, но они не генерируют спайков. Импульсы по миелинизированным участкам рапространяются пассивно, т.е. с затратами энергии на омическое сопротивление и на перезаряд участка, предствляющего собой конденсатор (обратимые потери). Суммарно затраты энергии не велики.
Рассмотрим миелинизированный участок, ограниченный двумя перехватами. Пусть левый перехват генерирует спайк. Возмущение (положительное) по миелинизированному участку передается правому перехвату. Когда отклонение мембранного потенциала правого участка достигает порогового значения, он генерирует спайк. Этот импульс не может вызвать генерацию нового спайка левым перехватом Ранвье, поскольку тот находится в рефрактерном состоянии (в состояниии невосприимчивости). Однако, данный перехват по той же схеме возбуждает перехват, следуюший за ним справа. По миелинизированному аксону, перескакивая от перехвата к перехвату, будет распространяться импульс. Процесс называется сальтаторным проведением возбуждения (saltare - прыгать). Оно обеспечивает скорость распространения импульсов в 20- 25 раз более высокую, чем в гигантских аксонах того же диаметра.
Описанный
процесс сальтаторного
проведения
импульсов легко
формализуется.
В простейшем
случае это
выглядит следующим
образом. Пусть
 и
 - мембранные
потенцилы
левого и правого
перехвотов
Ранвье, а
 -потенциал
миелинизированного
участка (считаем
его во всех
точках участка
одинаковым).
Тогда между
участком и
соответствующими
перехватами
проходят токи:
 и
 ,
где
 -сопротивление
перехода от
перехвата к
миелинизированному
участку. Через
миелиновую
оболочку проходят
емостной ток
 и ток утечки
 ,
где
 - суммарная
емкость, а
 суммарное
сопротивление
миелиновой
оболочки. В
силу первого
закона Кирхгофа
получаем:
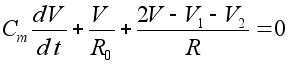 .
Для
описания мембранных
потенциалов
и
перехватов
служит уравнение
(6), в правую часть
которого согласно
закону Кирхгофа
следует добавить
для левого
перехвата
слагаемое
,
а для правого
-слагаемое
.
Это токи, проходящие
между соответствующими
перехватами
и миелинизированным
участком. В
результате
получим уравнения:
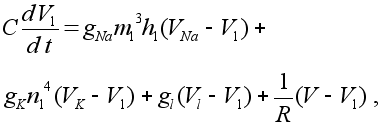
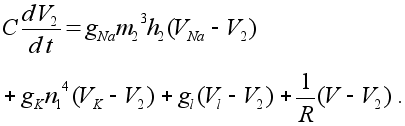
Величины
 ,
 и

 удовлетворяют
уравнениям
(7) -(9), в которых
для левого и
правого перехватов
следует положить
 и
 соответственно.
-
Структура и функции нейронов
Нервные
клетки различаются
как по форме,
так и по размерам.
Существуют
разные способы
их классификации.
Один из важнейших
критериев
-наличие или
отсутствие
аксона. Знаменитый
физиолог Камилью
Гольджи назвал
нервные клетки
с аксонами
клетками типа
 ,
а без аксонов
-типа
 .
Последние
образуют лишь
локальные
связи, т.е. только
с непосредственно
прилегающими
к ним клетками.
Кроме нервных
клеток в мозге
присутствуют
так называемые
глиальные
клетки. Их число
примерно в
десять раз
больше, чем
нервных клеток,
но их размеры
в три -четыре
раза меньше,
чем у нервных
клеток. Глиальные
клетки не генерируют
потенциалов
действия. В
настоящий
момент считается,
что они в целом
выполняют
вспомогательные
функции (некоторые
из них хорошо
изучены). Ниже
будем говорить
о клетках типа
. Именно их будем
называть нейронами.
В
каждом нейроне
различают
центральную
часть -тело
(оно же -сома)
и отростки.
Многочисленные,
относительно
короткие, сильно
ветвящиеся
отростки называются
дендритами.
Они проводят
импульс, как
правило, к телу
нейрона. Единственный
длинный отросток
называется
аксоном.
Он также сильно
ветвится. Аксон
проводит нервные
импульсы от
нейрона к другим
клеткам. Место
отхождения
аксона от тела
называется
аксонным холмиком.
На протяжении
первых
 мкм. аксон не
имеет миелинового
покрытия. Этот
участок вместе
с аксонным
холмиком называется
начальным
сегментом
аксона. Последний
значительно
чувствительнее
к воздействию,
чем остальные
участки нейрона.
Для возникновения
потенциала
действия достаточно
деполяризовать
мембрану в
начальном
сегменте на
 мвт. В теле клетки
потенциал
действия возникает
при деполяризации
мембраны на
 мв.
Разветвления аксона заканчиваются вблизи тел, дендритов и аксонов других нейронов. Места контактов Ч.Шерингтон назвал синапсами. По способу передачи возбуждения синапсы делятс на химические и электрические. Последние представляют собой участки непосредственного контакта мембран. Электрический импульс распросраняется через них в соответствии с законами электрических цепей ( проходят омический и емкостной токи).
Рассмотрим подробнее химические синапсы. Они различаются по своему местоположению: аксо -соматические, аксо- аксонные, аксо- дендритные (аксон заканчивается на соме, т.е. теле, аксоне, дендрите). Синапсы различаются по анатомической структуре, например, бывают пуговичные и шипиковые синапсы. В первом случае аксон заканчивается образованием похожим на пуговицу. Во втором - синапс напоминает кнопку, надетую на штырек (выступ мембраны нейрона). Несмотря на различия, химические синапсы объединяет ряд общих признаков и сам принцип функционирования.
Каждый синапс состоит из трех частей. Окончание аксона (пуговица, или “ кнопочка” для шипикового синапса) называется пресинаптической частью. Участок нейрона, на котором расположен контакт, называется постсинаптической частью. Эти части разделены синаптической щелью. В цитоплазме пресинаптической части постоянно накапливатся специльное вещество -медиатор, которое служит посредником при передаче воздействия. В результате спайка, пришедшего в пресинаптическую часть от нейрона -передатчика (пресинаптического нейрона), происходит выброс в синаптическую часть медиатора, заключенного в пузырьки. Количество выделившегося медиатора быстро нарастает, относительно стабилизируется, а затем медиатор распадается. Пересекая синаптическую щель, пузырьки достигают постсинаптической мембраны. Медиатор связывается с молекулами -рецепторами (запускается целый комплекс биохимических реакций). В постсинаптической мембране активируются специальные ионные каналы. Они называются медиатор -зависимыми. Происходит локальное изменение мембранного потенциала.
В
открытом состоянии
медиатор -зависимым
каналам отвечает
свое равновесное
значение мембранного
потенциала
 , которое называют
потенциалом
реверсии. Для
моделирования
влияния открытых
медиатор -зависимых
каналов в правую
часть уравнения
(6) Ходжкина -Хаксли
следует добавить
слагаемое
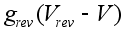 ,
где
 -коэффициент
проводимости.
Если
 ,
то значение
локального
мембранного
потенциала
отклоняется
в положительную
сторону. Когда
это отклонение
превышеет
пороговое
значение, запускаются
механизмы
генерации
спайка. Если
же
 ,
то, наоборот,
локальный
мембранный
потенциал
отклоняется
в отрицательную
сторону. Генерация
спайка затруднена.
В первом случае говорят, что медиатор обладает возбуждающим, а во втором -тормозным действием. Аксон образует тысячи синапсов. Однако, в каждом из них выделяется один и тот же медиатор (правило Дейла). В этой связи нейроны делят на возбудительные и тормозные.
Следует
сделать следующее
замечание. Выше
потенциал
реверсии отсчитывался
от мембранного
потенциала
в состоянии
покоя, т.е.
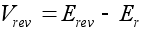 ,
где
 -отклонение
потенциала
реверсии от
нуля,
 -аналогичное
отклонение
потенциала
покоя. Считается,
что потенциал
реверсии
для данного
медиатора во
всех нейронах
один и тот же.
Однако, разные
нейроны могут
иметь различный
потенциал покоя
.
Для одних нейронов
величина
может оказаться
положительной,
а для других
-отрицательной.
Медиатор может
оказывать как
возбуждающее,
так и тормозное
действие. Это
явление наблюдается
в природе. У
простейших
набор медиаторов
не велик. Один
из самых распространенных
- ацетилхолин
может быть как
возбуждающим,
так и тормозным
медиатором.
На каждый синапс поступает импульс -сигнал “все, или ничего”. Однако, синапсы вносят разный вклад в суммарный мембранный потенциал. Он зависит от площади синаптического контакта, от количества медиатора, выделяющегося единовременно, а также от расположения синапса. Как уже говорилось, области, примыкающие к аксонному холмику, более чувствительны к воздействию. Влияние синапса на мембранный потенциал характеризуют синаптическим весом. Говорить о его числовом значении, естественно, можно только в рамках конкретной модели нейрона.
Отметим, что связь между нейронами посредством химических синапсов однонаправлена: возбуждение проводится от пресинаптического к постсинаптическому нейрону.
Синапсы обладают пластичностью. По экспериментальным данным синапс, часто принимающий участие в проведении возбуждения, увеличивается в размерах, а следовательно растет его влияние на постсинаптический нейрон (нейрон, на котором он расположен).
Еще одно важное свойство синаптического воздействия -явление рефрактерности (невосприимчивости к воздействию). О нем уже говорилось выше при описании гигантского аксона. Во время генерации спайка и некоторое время после него (это уже не бесспорно) постсинаптический нейрон не реагирует на воздействие медиатора. Данное явление называется абсолютной рефрактерностью, а соответствующий промежуток времени -периодом рефрактерности. Считается, что во время абсолютной рефрактерности никакое воздействие не способно индуцировать спайк нейрона. Постепенно абсолютная рефрактерность сменяется относительной. Достаточно сильное воздействие приводит с спайку. Затем способность реагировать на воздействие полностью восстанавливается.
Несмотря на малые размеры нейронов на каждом из них располагаются тысячи синапсов. Возбуждение, поступившее на синапс, вызывает локальное отклонение мембранного потенциала от состояния покоя. Как уже говорилось при описании гигантского аксона, эти локальные отклонения, если они не превышают пороговый уровень генерации спайка, “растекаются” по мембране, затухая как по пространству так и по времени. Чем дальше расположена точка от пропустившего воздействие синапса, тем меньше отклонение мембранного потенциала. Чем больше времени прошло с момента отклонения мембранного потенциала в зоне синаптического контакта, тем менее заметно возмущение мембранного потенциала в других точках.
Затухая, локальные отклонения складываются в зоне аксонного холмика. Если отклонение мембранного потенциала в зоне холмика превышает пороговое значение, то генерируется спайк, который распространяется по аксону. В случае, когда нейрон постоянно находится под интенсивным воздействием других нейронов, мембранный потенциал в зоне холмика часто превышает пороговое значение. На такое воздействие нейрон отвечает группой спайков -берстом. Промежутки между спайками не короче рефрактерного периода.
Тем самым, нейрон выполняет интегративные функции, суммируя поступающие к нему сигналы (импульсы) других нейронов (пространственное суммирование). Особеность суммирования заключается в том, что с течением времени результат воздействия накапливается (временное суммирование), но вклад каждого ранее поступившего импульса уменьшается. Нейрон генерирует битовый сигнал (импульс “все, или ничего”). Однако, частоту следования импульсов (или число импульсов в берсте) можно интерпретировать как аналоговый сигнал (точнее, его дискретное представление).
Потоки
импульсов не
являются единственным
фактором, действующим
на нейроны.
Между точками
межклеточной
жидкости существует
разность
электрических
потенциалов.
Типичный объем,
в котором потенциал
межклеточной
жидкости можно
считать практически
постоянным
(местный потенциал),
значительно
превышает
размеры нейрона.
Местные потенциалы
колебательным
образом меняются
во времени. Это
медленные
потенциалы.
Достаточно
типичный период
их осциляций
-порядка
 сек. (напомним,
для нейрона
длительность
импульса порядка
 мсек.). В изменение
местных потенциалов
вносят вклад
сами нервные
клетки (не только
нейроны), а также
омические токи,
обусловленные
электрическим
градиентом
во внеклеточной
жидкости (такая
связь называется
электротонической).
Местные
потенциалы
влияют на импульсацию
нейронов. Этому
есть доказательства.
Изменение
местных потенциалов
отражает сигнал
электроэнцефалограммы
(ЭЭГ), который
регистрируется
на поверхности
кожи, покрывающей
череп. В спокойном
состоянии у
человека сигнал
ЭЭГ осцилирует
с периодом
порядка
сек. Замечено,
что положительная
полуволна ЭЭГ
сопровождается
учащением
импульсации
нейронов. Тем
самым, быстрые
импульсные
потенциалы
наблюдаются
на фоне и связаны
с медленными
местными
потенциалами.
Механизмы связи
и ее роль в целом
в настоящее
время не ясны.
По одной из
гипотез именно
постоянно
меняющиеся
узоры местных
потенциалов
кодируют информацию
в мозге. Потоки
же импульсов
служат для
передачи
информационных
сообщений из
одной области
мозга в другую.
Однослойный персептрон - простейшая модель ассоциативной памяти
Однослойным
персептроном
назовем множество
нейронов Мак-Каллока
- Питтса, которые
имеют общие
входы. Пусть
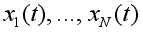 - входные сигналы,
а
 - выходной сигнал
 -ого нейрона,
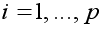 ,
где
 - число нейронов.
Тогда
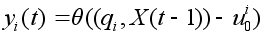 .
Здесь
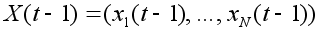 - общий вектор
входных сигналов,
 - синаптический
вектор
- ого нейрона,
 -
его пороговое
значение. Выходные
сигналы принимают
либо нулевое,
либо единичное
значения (бинарны).
Предположения
о