Математические модели естествознания
 .
Далее, Бернштейн
предположил,
что в жизни
нейрона иногда
наступает
особый момент
-состояние
возбуждения,
когда на короткое
время мембрана
становится
проницаемой
и для других
ионов, в частности,
для натрия и
хлора. В результате
притока внутрь
клетки положительных
ионов величина
мембранного
потенциала
падает, а затем,
после восстановления
избирательных
свойств мембраны,
снова входит
в норму. Так
впервые была
объснена генерация
спайка.
Натриево - калиевый цикл
Гипотеза Бернштейна хорошо объясняла многие известные физиологам того времени факты. В частности, зависимость потенциала покоя от концентрации калия в межклеточной среде, а также от температуры. Однако в то время гипотезу нельзя было подвергнуть экспериментальной проверке. В распоряжении исследователей не было методики непосредственного изменения мембранного потенциала и концентраций ионов. Гипотеза Бернштейна вызывала массу споров.
Ситуация изменилась после сообщения английского зоолога Дж. Юнга, сделанного в 1936 г. Он обнаружил, что длинные тяжи у кальмаров и каракатиц являются не кровеносными сосудами, как это считалось ранее, а необычайно толстыми аксонами (отростками нервных клеток). Они получили название гигантских аксонов и стали естественным объектом для изучения мембран. Диаметр аксонов достигает 1 мм и дает возможность вводить в них электроды и капилляры. В результате можно измерить как мембранный потенциал, так и концентрацию внутриклеточного раствора.
Выяснилось,
что мембранная
теория Бернштейна
в целом верна,
хотя и нуждается
во внесении
ряда существенных
дополнений
и изменений.
В частности
верным оказалось
утверждение,
что потенциал
покоя обусловлен
в
основном
электрохимическим
потенциалом
ионов
.
Наоборот, согласно
теории Бернштейна
в точке максимума
потенциала
действия (спайка)
мембранный
потенциал
должен быть
равен нулю (ток
ионов прекращается,
когда напряжение
равно нулю).
Однако, английские
физиологи А.
Ходжкин и А.
Хаксли в 1939 г.
показали, что
на максимуме
потенциала
действия мембранный
потенциал не
уничтожается,
а меняет знак.
Внешняя поверхность
мембраны заряжается
положительно
по отношению
к внутренней.
Явление получило
название “овершут”
и
не имело объяснений
в рамках теории
Бернштейна.
Оно связано
с неравномерным
распределением
ионов натрия.
Оказалось, что
концентрация
ионов
 внутри клетки
примерно в
десять раз ниже
чем в межклеточной
жидкости. В
начале спайка
ионы натрия
под действием
электрического
поля и концентрационного
градиента
устремляются
из межклеточной
среды в клетку
(в клетке их
концентрация
ниже, а внутренняя
поверхность
мембраны заряжена
отрицательно
по отношению
к внешней). В
этом гипотеза
Бернштейна
оказалась
верной. После
смены знака
мембранного
потенциала
ионы натрия
продолжают
перемещаться
в клетку только
под действием
концентрационного
градиента.
Мебранный
потенциал на
максимуме
овершута приближается
к равновесному
электрохимическому
потенциалу
для ионов
.
В дальнейшем
пронуцаемость
мембраны для
ионов натрия
падает и активируется
проводимость
для ионов колия,
которые движутся
из клетки, где
их концентрация
выше. Ионы калия
уносят из клетки
положительный
заряд. Внутренняя
поверхность
мембраны заряжается
отрицательно.
Этот
натриево -калиевый
цикл
ниже будет
рассмотрен
подробнее.
В течение цикла ионы натрия заходят в клетку, а ионы калия ее покидают. Такое замещение должно выравнивать концентрации ионов. Казалось бы, что после ряда циклов нервная клеткане должна генерировать спайков (концентрации ионов внутри и вне клетки уравняются). В действительности это не так. Неравномерное распределение ионов внутри и вне клетки поддерживается активным транспортом ионов. Механизмы, осуществляющие транспорт ионов через мембрану в сторону повышенной концентрации, называются мембранными насосами (помпами). Они потребляют энергию, которая освобождается в результате окисления аминокислот.
Наиболее
изучен натриевый
насос. Он выводит
ионы
из клетки и
одновременно
транспортирует
ионы
внутрь клетки.
Этот процесс
включает в себя
обязательный
обмен двух
ионов
во внешней
среде на три
иона
в клетке (если
удалить из
среды ионы
,
то ионы
из клетки выводиться
уже не будут).
Если мембранный
потенциал
отрицателен
(внутренняя
поверхность
мембраны заряжена
отрицательно),
то натриевый
насос выполняет
электрическую
работу, выводя
из клетки суммарно
один положительный
заряд. Натриевый
насос действует
избирательно.
Например, он
не способен
переносить
ионы лития.
Молекулярный
механизм активного
транспорта
в настоящее
время до конца
не ясен.
Натриевый
насос - один из
главных механизмов,
благодаря
которому внутри
клетки поддерживается
избыточная
по сравнению
с внешней средой
концентрация
ионов
и недостаточная,
примерно в
десять раз
меньшая, чем
во внеклеточной
жидкости,
концентрация
ионов
.
Для исследования процесса генерации спайка А.Ходжкиным и А.Хаксли был разработан оригинальный прием, который называется методом фиксации потенциала. Внутриклеточно водятся электроды и используется система с обраной связью, позволяющая позволяющая поддерживать мембранный потенциал на любом заданном уровне. Тем самым, можно имитировать различные фазы потенцила действия, как-бы “замораживая” его. Система позволяет измерять ионные токи. Изменяя ионный состав среды (так же через микрокапилляры меняют состав внутриклеточной жидкости) можно можно итентифицировать ионы, которые обуславливают ток. Исследования обнаружили, что даже пассивный транспорт ионов (в соответствии с градиентом концентраций и направлением электрического поля) подчиняется специфическим закономерностям. Для их объяснения А.Ходжкиным и А.Хаксли была высказана гипотеза о наличии в мембране специальных ионных каналов, служащих для их транспортировки.
При
положительном
отклонении
мембранного
потенциала
от потенциала
в состоянии
покоя (значение
потенциала
уменьшается
по абсолютной
величине)
активируются,
т.е. открываются
каналы для
,
пропускающие
эти ионы внутрь
клетки. Ионы
движутся в
соответствии
с направлением
электрического
поля, причем
в область с
меньшей концентрацией.
Каналы играют
роль селективных
(избирательных)
фильтров,
пропускающих
ионы
и
непроницаемых
для других
ионов. Механизмы,
приводящие
к открытию и
закрытию каналов,
называются
воротами.
При деполяризации
(уменьшении
абсолютной
величины мембранного
потенциала)
открываются
активационные
так называемые
 -ворота для
натриевых
каналов. Чем
силнее деполяризована
мембрана, тем
больше
-ворот открыто,
что в свою очередь
уделичивает
деполяризацию.
Процесс открытия
ворот протекает
лавинообразно.
При
относительно
длительной
деполяризации
натриевые
каналы инативируются.
Срабатывают
так называемые
 -ворота, которые
блокируют
каналы через
время порядка
1 мсек после
открытия
-ворот. В 1980 г. Ф.
Сигворс и Э.
Неер зарегистрировали
токи через
единичные
натриевые
каналы. Оказалось,
что они подчиняются
закону “все
или ничего”,
Открываются
практически
мгновенно, а
через время
около 1 мсек.
так же практически
мгновенно
закрываются.
Ионные каналы
представляют
собой молекулы
бека, вкрапленные
в липидный слой
мембраны.
В
районы максимума
пика потенциала
действия большинство
натриевых
каналов инактивируется,
т.е. закрываются
-ворота. Встает
вопрос:
каким образом
мембранный
потенциал
возвращается
к исходному
уровню -состоянию
покоя?
Экспериментально
А. Ходжкин и А.
Хаксли обнаружили,
что с некоторым
запаздыванием
по отношению
к началу натриевого
тока возникает
калиевый ток.
Ионы калия
начинают покидать
клетку, поскольку
активируются
калиевые каналы.
Гипотеза связывает
это с открытием
так называемых
 -ворот. Ионы
калия движутся
в область с
меньшей концентрацией
(пассивный
транспорт). При
этом в районе
овершута (мембранный
потенциал
положителен)
движение
осуществляется
в соответствии
с направлением
электрического
поля. Калиевый
ток уносит из
клетки (точнее
с внутренней
поверхности
мембраны)
отрицательный
заряд. Мембрана
снова поляризуется.
Считается,
что в отличие
от натриевых
каналов, для
калиевых каналов
нет инактивационных
ворот. Активационные
-ворота сами
закрываются,
когда мембрана
возвращается
к уровню потенциала
покоя (реполяризуется).
Важна
отметить, что
количество
ионов, которое
проходит через
мембрану при
одиночном
потенциале
действия, практически
не вызывает
изменения
внутриклеточных
концентраций
ионов. Исключение
могут составлять
лишь мельчайшие
нервные клетки.
По некоторым
оценкам при
одном потенциале
действия содержание
внутри гигантского
аксона кальмара
изменяется
всего лишь на
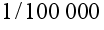 от исходного.
Если блокировать
активные натриевые
насосы каким-нибудь
ядом, то аксон
все равно сможет
сгенерировать
несколько тысяч
импульсов.
Непосредственно
активный транспорт
не участвует
в генерации
спайков. Однако,
он поддерживает
на должном
уровне концентрационные
градиенты,
наличие которых
приводит к
возникновению
потенциалов
действия.
После описания механизма генерации спайка, обратимся к системе уравнений, описывающей это процесс. Она предложена А. Ходжкиным и А. Хаксли.
-
Аксон Ходжкина - Хаксли
Модель
базируется
на электрохимическом
уравнении (3).
Мембранный
потенциал будем
отсчитывать
от его уровня
 в состоянии
покоя, т.е. положим
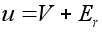 ,
или же
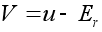 .
Аналогично
введем обозначения
для отсчитываемых
от
равновесных
электрохимических
потенциалов
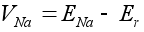 и
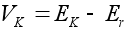 .
Ясно, что сохраняются
разности:
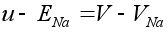 и
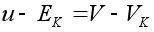 .
В создании
мембранного
потенциала
кроме ионов
 и
 принимают
участие и другие
ионы, в частности,
ионы
 .
Обозначим их
суммарный
электрохимический
потенциал через
 ,
соответственно
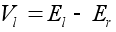 .
В уравнение
(3) для баланса
мембранных
токов следует
добавить слагаемое
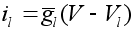 .
Данный ток
называется
током утечки.
Для гигантского
аксона кальмара
А. Ходжкиным
и А. Хаксли были
экспериментально
найдены значения:
 мв,
 мвт,
 мвт.
Электрохимическое
уравнение (3)
суть обыкновенное
дифференциальное
уравнение
первого порядка.
Как показано
выше, его коэффициенты
следует считать
функциями от
мембранного
потенциала
 .
По биологическому
смыслу решения
уравнения
ограничены
на положительной
полуоси
 .
Можно доказать,
что все решения
такого уравнения
монотонно
стремятся к
состояниям
равновесия.
Объяснить в
рамках одного
электрохимического
уравнения
генерацию
потенциала
действия невозможно.
Из
приведенных
выше построений
следует, проводимости
 и
 следует считать
функциями не
только мембранного
потенциала
,
но и времени.
Нижеследующие
построения
А. Ходжкина и
А. Хаксли во
многом носят
феноменологический
характер, т.е.
не имееют под
собой прочной
теоретической
основы и опираются
на ряд допущений
и догадок. Рассмотрим
натриевую
проводимость.
Для описания
ее зависимости
от времени и
мембранного
потенциала
А. Ходжкин и А.
Хаксли ввели
две новые переменные
 и
 ,
которые характеризуют
процессы активации
и инактивации
натриевых
каналов. В
интерпретации
авторов
 -вероятность
открытия
-ворот,
 -вероятность
закрытия
-ворот, или же
-отношение
числа открытых
и закрытых
ворот соответствующего
типа к числу
каналов на
поверхности
мембраны единичной
площади. Авторы
модели положили:
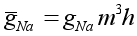 ,
где коэффициент
 был назван
максимальной
натриевой
проводимостью.
Предложенное
А. Ходжкиным
и А. Хаксли
обоснование
вида зависимости
в настоящее
время выглядит
искуственным.
Методом подбора
были выписаны
линейные обыкновенные
уравнения
первого порядка
для переменных
и
.
При этом в уравнение
для
не входит переменная
,
а в уравнение
для
не входит
.
Коэффициенты
уравнений
зависят только
от мембранного
потенциала
.
Более менее
убедительное
обоснование
необходимости
именно такой
зависимости
отсутствует.
Для
описания изменения
калиевой проводимости
А. Ходжкиным
и А. Хаксли была
введена функция
 .
Она интерпретировалась
как вероятность
открытия
 -ворот для каливых
каналов, т.е.
как вероятность
активации
последних.
Напомним, что
по гипотезе
А. Ходжкина и
А. Хаксли инактивационные
ворота для
каливых каналов
отсутствуют.
Авторы опытным
путем подобрали
линейное обыкновенное
дифференциальное
уравнение для
и положили
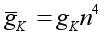 .
Коэффициенты
уравнения
зависят только
от мембранного
потенциала
.
Коэффициент
 называется
максимальной
калиевой
проводимостью.
Относительно
проводимости
 для тока утечки
А. Ходжкин и А.
Хаксли предложили
считать его
постоянным:
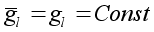 .
В результате
для описания
процесса генерации
потенциала
действия была
предложена
система четырех
уравнений,
Первое из них
-электрохимическое
уравнение для
баласа мембранных
токов токов:
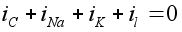 .
Напомним, что
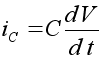 ,
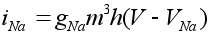 ,
(4)
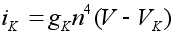 ,
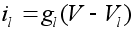 .
(5)
Второе
и третье уравнения
описывают
соответственно
процессы открытия
и закрытия
-ворот для натриевых
каналов. Наконец,
четвертое
уравнение
отражает процесс
открытия
-ворот для калиевых
каналов. Система
уравнений
Ходжкина -Хаксли
имеет следующий
вид:
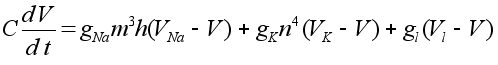 ,
(6)
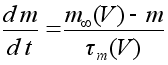 ,
(7)
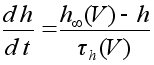 ,
(8)
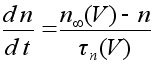 ,
(9)
где,
напомним,
,
,
.
В (7) -(9) функции
 ,
 ,
 ,
 ,
 ,
 положительны
и непрерывны.
Функции
,
,
относятся к
классу так
называемых
сигмоидных
функций, т.е.
они монотонны
обладают следующими
свойствами:
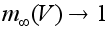 ,
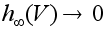 ,
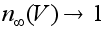 при
 и
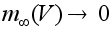 ,
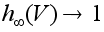 ,
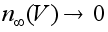 при
 .
В работах А.
Ходжкина и А.
Хаксли указан
их конкретный
вид. Функции
весьма сложно
устроены. Реально
система уравнений
допускает
только численное
исследование.
Ограничимся
рядом замечаний
на качественном
уровне, иллюстрирующих
впечатления
от численного
исследования.
Входящие в
систему (6) -(9) функции
подобраны так,
что выполнен
ряд свойств.
Она имеет устойчивое
состояние
равновесия
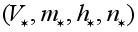 ,
где
 ,
 -положительны.
Пусть
 ,
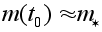 ,
 ,
 .
Если значение
 не слишком
велико, то в
силу устойчивости
состояния
равновесия
с течением
времени
 .
Существует
такое пороговое
значение
 ,
что при
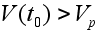 решения системы
ведут себя по
другому. Первоначально
 убывает. Однако
начинает расти
величина
 .
Слагаемое
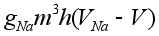 уравнении (6)
положительно,
т.к.
 ,
а
близко к нулю.
В результате
производная
 становится
положительной.
Мембранный
потенциал
начинает расти
(момент начала
генерации
спайка). Вместе
с ним растет
и величина
,
что приводит
к дальнейшему
увеличению