Принципы эволюции
С помощью этих распределений нетрудно найти оптимальное решение: это та реально осуществимая комбинация 1а и п, которая лежит на самой высокой r-изоклине, то есть максимизирует г, или приспособленность. Для «компромиссной кривой», изображенной на рис. 3.4, этот оптимум приходится на крайнюю правую часть кривой; в этом случае отбор благоприятствует высокому уровню репродукции за счет родительской особи. Такой тип размножения называют семелопарией — родительская особь дает потомство один раз, после чего гибнет подобно лососю.
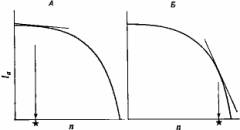
Рис. 3.4. Возможная форма истинной зависимости между 1а и п. А. Выживаемость потомков (//) низкая, "и поэтому отбор благоприятствует небольшому п (оптимум помечен звездочкой) при продолжительном выживании взрослых особей (высокое 1а). Значение // высокое, и поэтому отбор благоприятствует высокому п при низком 1а. Ситуация А ведет к итеропарии, а ситуация Б — к семелопарии (см. текст).
При альтернативном типе размножения, когда достигается некий компромисс между п и 1а, отбор благоприятствует многократному размножению, или итеропарии.
Перейдем теперь к предсказанию. С уменьшением шансов потомков на выживание (то есть с уменьшением /у) наклон г-изо-клин уменьшается и отбор благоприятствует итеропарии. При возрастании // справедливо обратное. (Точный результат зависит от формы «компромиссной» кривой, однако мы продолжаем допускать, что применима только кривая, изображенная на рис. 3.4.) Для того чтобы проверить это предсказание, нам необходимо найти популяции либо того же самого, либо других, но близкородственных видов с различными значениями //. На самом деле точных данных о возрастной специфичности выживаемости для популяций, находящихся в природных условиях, удивительно мало, однако имеются некоторые более или менее эпизодические данные, в общем подтверждающие эти предсказания. Например, пресноводные планарии (трехветвистокишечные тур-беллярии), вылупляясь из яиц, в природе попадают в плохие трофические условия, и, как показали наблюдения (6), молодые особи семелопарических видов гибнут не так быстро, как молодь итеропарических видов, голодающих в лабораторных условиях. Блауэр (3) описал семелопарические и итеропарические виды многоножек фауны Британских островов: число потомков на одну родительскую особь у первых было больше, чем у вторых. Семелопарические виды питаются листьями, которые равномерно покрывают землю в лесу, тогда как итеропарические виды более специализированы, и по крайней мере один из них питается и откладывает яйца на поваленных деревьях, которые разбросаны по лесу неравномерно. Расселение молоди по этим пятнисто распределенным ресурсам носит случайный характер, а поэтому значение // у этого вида ниже, чем у видов, питающихся листьями. Вероятно, по тем же причинам итеропарические виды с непрерывным или полунепрерывным размножением возникли у эндопаразитов, но в этом случае, поскольку родительская особь окружена сверхобильными пищевыми ресурсами — в виде тканей своего хозяина, — она может производить огромное число потомков и не должна расплачиваться за это сокращением продолжительности жизни, о котором говорилось выше.
3.4.2. Приложение теории игр к поведению животных.
Другого рода ограничение, налагаемое на действия особей, направленные на то, чтобы максимизировать приспособленность, связано с активностью других особей, принадлежащих к той же популяции. Можно представить себе, что организмы или по крайней мере признаки, которыми они обладают, как бы играют друг с другом в игры, причем ставка в этих играх—само существование организмов; определить оптимальные стратегии в этих играх может помочь теория игр — один из разделов теории оптимального управления. Используя такой подход, Мэйнард Смит (26) дал определение эволюционно стабильных стратегий (ЭСС) как тех стратегий в эволюционной игре, которые исключают возможность поражения, то есть признаки или сочетания признаков, которые не могут быть вытеснены каким-либо отдельным мутантом. Теория ЭСС оказалась очень полезной для анализа поведения животных.
Наиболее наглядное представление о «поведенческой игре» можно получить, рассмотрев агрессивные взаимодействия между игроками. Возьмем в качестве примера такую игру, в которой возможны только две стратегии (генетически детерминированные наборы признаков, от которых зависит определенный тип поведения, то есть тактика в поведенческой игре) — стратегия ястреба и стратегия голубя. Ястребы всегда дерутся, стремясь поранить и убить своих противников, даже если сами рискуют получить при этом серьезные повреждения, а голуби только разыгрывают агрессивное поведение и никогда не вступают в драку. Какая же стратегия окажется оптимальной? Этот вопрос был досконально изучен Мэйнардом Смитом (27). Допустим, что мы можем численно оценить воздействие данной стратегии на приспособленность и примем для определенности, что эта оценка равна +50 для победителя и 0 для побежденного. Пусть цена времени, затраченного на демонстрацию агрессивного поведения, равна —10, а цена полученного повреждения —100. Если ястреб встречается с ястребом, то в одной половине случаев он, вероятно, окажется победителем, а в другой — будет побежден и получит повреждения, так что в целом плата составит 0,5(50) + + 0,5(—100) =—25. При встрече ястреба с голубем ястреб всегда побеждает, и его плата равна +50; голубь проигрывает, т. е его плата равна 0. Когда голубь встречается с голубем, то оба они демонстрируют агрессивное поведение и каждый из них побеждает в одной половине случаев и оказывается побежденным:—в другой/ Следовательно, плата составит при этом 0,5(50—10)+0,5(—10) == + 15. Эти вычисления можно суммировать в виде следующей матрицы плат (в которой представлены средние платы на одного нападающего):
| Нападающий / Противник | Ястреб | Голубь |
| Ястреб | —25 | +50 |
| Голубь | 0 | +15 |
Какого рода система поведения возникнет в процессе эволюции? В популяции, состоящей из одних голубей (средняя плата — + 15), любые вторгающиеся в нее мутанты-ястребы будут действовать весьма успешно: их плата при каждой встрече с голубем будет равна +50. Следовательно, стратегия голубя не может быть ЭСС. Ястребы распространятся и возьмут верх в популяции, однако при этом средняя плата от каждой встречи превратится в —25 и мутант-голубь окажется в весьма благоприятном положении, поскольку, хотя при каждой встрече с ястребом плата будет равна 0, это все же лучше, чем —25. Следовательно, стратегия ястреба тоже не является ЭСС.
Интуитивно представляется, что стабильной должна быть смешанная стратегия. Пусть Я— доля ястребов в популяции, а 1 —Н — доля голубей. Средняя плата (Ря) для ястреба равна плате для встречи каждого типа, умноженной на
вероятность встретить каждого из противников:
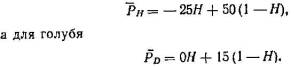
Из этого уравнения можно найти Я, приняв Р0 = Рн (что соответствует ЭСС); отсюда Я=7/12, а 1—Я=5/12. Это стабильное состояние может быть достигнуто при условии, что: 1) каждая особь в данной популяции неизменно придерживается либо стратегии ястреба, либо стратегии голубя, а популяция состоит на 7/12 из ястребов и на 5/12 из голубей; 2) каждая особь выступает в роли как ястреба, так и голубя (смешанная стратегия) с вероятностью 7/12 в первой и с вероятностью 5/12 во второй роли при каждом конфликте.
Игра «ястреб—голубь» иллюстрирует применение теории ЭСС на примере простой и возможно нереалистичной ситуации. Так, по-видимому, лишь в редких случаях «поведенческие игры» состоят всего из двух резко различающихся тактик. Кроме того, приписывать определенное число очков отдельным исходам игры, хотя в принципе это и не сложно, крайне трудно на практике и нередко бывает связано с необходимостью создания сложных вспомогательных гипотез. Тем не менее теория ЭСС широко используется в экологии поведения и оказывает значительную помощь в изучении сложных «поведенческих игр» (23). Мы вернемся к ней в разд. 3.7.
3.5. Изменчивость в природных популяциях; ее значение для адаптации.
Изменчивость вносится в популяцию в результате мутационного процесса (или иммиграции). С возникновением изменчивости общий набор генотипов может значительно увеличиться в результате рекомбинации (некоторые авторы считают это главным преимуществом полового размножения по сравнению с бесполым; см. разд. 3.7), но эта генетическая изменчивость полностью ограничена изменчивостью аллелей, которые могут участвовать в рекомбинации. Дарвин считал, что естественный отбор ограничивает эту изменчивость до уровня адаптивного подмножества, а основная теорема Фишера также подразумевает эволюцию, ведущую от большей изменчивости к меньшей. Исходя из этого, следует ожидать, что популяции эволюционируют в направлении гомозиготного дикого типа и мало отклоняются от этого адаптивного оптимума. Между тем в природных популяциях существует значительная изменчивость, то есть генетический полиморфизм, и экогенетики потратили немало времени и усилий, чтобы собрать соответствующие фактические данные.
Существуют две главные группы доказательств генетического полиморфизма.
1. Прямое наблюдение полиморфизма по признакам, генетическая детерминированность которых известна
(например, меланизм у бабочек, характер полос и цвет раковины у улиток, хромосомные аберрации у дрозофилы, группы крови у человека). 2. Данные о
структуре ферментов, полученные методом электрофореза. Замещения отдельных аминокислот в молекуле фермента могут изменить ее суммарный заряд в достаточной
степени, чтобы изменить скорость перемещения молекулы в электрическом поле. Это позволяет сравнивать сходные молекулы, выделенные из разных особей, и оценивать
их изменчивость.
Поскольку замещения в молекуле аминокислоты отражают замещения в молекуле
нуклеиновой кислоты, они могут служить показателем генетической изменчивости. Этот метод и его объяснение иллюстрирует рис. 3.5. В табл. 3.3 приведены данные
о полиморфизме и гетерозиготности у ряда видов, полученные методом электрофореза.
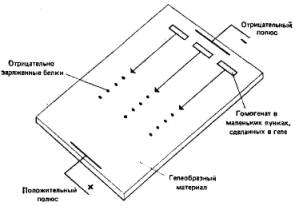
Рис. 3.5. Горизонтальный гель-электрофорез. Пластмассовую пластинку с гелем помещают в сосуд, содержащий соответствующий буфер. Го-могенаты вносят в лунки, сделанные в геле, и пропускают через него электрический ток, под действием которого находящиеся в лунках белки мигрируют на определенные расстояния, зависящие от их аминокислотного состава (см. текст). Затем, используя специфичные красители, можно выявить определенные белки. Одни и те же белки, выделенные из разных животных, могут слегка различаться по аминокислотному составу и поэтому мигрируют на разные расстояния (36).
Таблица 3.3. Доля локусов, в которых наблюдалась изменчивость по ферментам, и доля локусов, в которых была обнаружена гетерозиготность (по данным Шоррокса (36)).
| Вид | Число популяций | Число локусов | Доля полиморфных локусов | Гетерози-готность на 1 локус |
| Человек | 1 | 71 | 0,28 | 0,067 |
| Мышь | 4 | 41 | 0,29 | 0,091 |
| Гольян | 1 | 24 | 0,25 | 0,068 |
| Морская звезда (Nearch-aster aciculosus) | 2 | 24 | 0,71 | 0,213 |
| Мечехвост (Limulus poly phemus) | 4 | 25 | 0,25 | 0,061 |
| Drosophila pseudoobscura | 10 | 24 | 0,43 | 0,128 |
| Drosophila willistoni | 10 | 20 | 0,81 | 0,175 |
Как результаты наблюдений, так и электрофоретические данные позволяют считать, что в популяциях существует значительный полиморфизм и что он, по-видимому, относительно стабилен. Но и классический дарвинизм, и неодарвинизм предсказывают разрушение изменчивости, и в связи с этим между теоретической популяционной генетикой и экогенетикой возникло некоторое напряжение. Существует две возможности справиться с этим парадоксом.
1. Балансовая теория утверждает, что естественный отбор может стабилизировать изменчивость, если существуют гетерозиготность и расщепление генов (Дарвин, придерживавшийся теории слитной наследственности, не мог этого предвидеть). Так называемый уравновешивающий отбор может быть обусловлен: а) преимуществом гетерозигот — гетерозигота, обладающая превосходством (WAA < WAa > Waa), будет, по определению, способствовать сохранению гомозигот; б) отбором, зависящим от частоты; в этом случае приспособленность является функцией частоты генов, так что по мере возрастания частоты данного гена его приспособленность снижается и отбор начинает благоприятствовать другому гену до тех пор, пока частота последнего не возрастет и не произойдет