Принципы эволюции
2.3. Неодарвинизм и популяционная генетика.
Разрешив отдельные проблемы, с которыми столкнулась теория Дарвина, менделизм вместе с тем породил и ряд новых. Во-первых, стали высказываться предположения, что такие генетические явления, как доминирование, возможно, играют более важную роль в определении признаков популяции, чем сам естественный отбор. Ведь проводимые в лаборатории скрещивания между особями, гомозиготными по доминантным и особями, го-мозиготными по рецессивным генам, приводят к численному превосходству доминант (см. разд. 2.1.1). Во-вторых, дискретная, корпускулярная природа наследственных факторов должна означать, что изменения этих факторов также дискретны и что каждое изменение, по всей вероятности, будет иметь значительный эффект. Изменчивость, следовательно, носит характер больших скачков, а не мелких непрерывных изменений, как это представлял себе Дарвин.
Де Фриз в своей книге «Мутационная теория» (De Vries, The Mutation Theory, Open Court Publ. Co., 1909) проводил различие между непрерывной индивидуальной изменчивостью и дискретными скачкообразными изменениями. Он применял термин- мутация только к последним (однако, как должно было стать очевидным из всего сказанного выше, этот термин применяется теперь в более общем смысле для обозначения любого спонтанного случайного изменения, большого или малого). Как считал де Фриз, именно эти мутации контролируют эволюционное изменение и играют более важную роль, чем сам естественный отбор.
Ранние менделисты, подобно де Фризу, преуменьшали эффективность естественного отбора и подчеркивали первостепенное значение менделевских соотношений и мутаций в формовке эволюции. На некоторых дарвинистов это произвело такое впечатление, что они начали высказывать сомнения в обоснованности менделизма, и между этими двумя группами начались ожесточенные дебаты. Другие эволюционисты, понимая важность менделизма и таящиеся в нем возможности, вознамерились примирить его с дарвиновской теорией. Поскольку возникшая в результате их усилий синтетическая теория эволюции выходила за рамки механизмов, предложенных Дарвином, ее часто называют неодарвинизмом. Немалую роль в решении этой проблемы сыграл переход от рассмотрения последствий скрещивания между двумя особями к последствиям скрещивания между особями в популяциях; менделевские соотношения превратились, таким образом, в частоты различных генотипов в дайной популяции, а генетические и эволюционные изменения выражались в изменениях частот соответствующих генов. В результате генетика превратилась в популяционную генетику, которая развивалась параллельно с неодарвинизмом. В дальнейших разделах настоящей главы дан обзор основных моментов этого развития л показано, как популяционная генетика пыталась ответить на ключевые вопросы, поставленные менделистами.
2.3.1. Уравнение Харди—Вайнберга
В 1908 г. Дж. Харди (G. H. Hardy) и В. Вайнберг (W. Wein-berg) независимо друг от друга занялись изучением следующего вопроса, поднятого менделистами: могут ли изменения генных частот происходить под влиянием одних только ограничений, налагаемых законами Менделя? Для того чтобы ответить на этот вопрос, они представили себе популяцию, в которой происходит случайное скрещивание (панмиксия) и численность которой достаточно велика, чтобы полученные результаты можно было считать статистически достоверными. Отметим, что в подобной ситуации (в отличие от экспериментов Менделя) нельзя точно знать, какие именно будут происходить скрещивания, однако можно строить предположения о вероятности тех или иных скрещиваний на основе частоты особей, несущих определенные гены. Харди и Вайнберг допустили, что в их воображаемой популяции имеются два аллеля, Л и а, с первоначальными частотами соответственно р и q, так чт p + q= (то есть это условие позволяет описать все возможные случаи, поскольку в данном локусе нет других аллелей). При этом могут образоваться следующие дишюидные генотипы: АА, Аа и аа. Харди и Вайнберг допускали свободное скрещивание, так что вероятность встречи двух А-гамет и образования особи АА равна р2. Это следует из основной теоремы теории вероятностей, согласно которой вероятность совместного появления двух последовательных событий (скажем, выпадения два раза подряд орла при бросании монеты) равно произведению вероятностей каждого из них, то есть
вероятность выпадения орла равна ~- •_-, или (g-)2. Рассуждая
подобным же образом, получим, что вероятность aa=q2, а вероятность Aa=pq. Согласно правилу Менделя, частота гетерозигот должна быть вдвое выше частоты каждой из гомозигот, так что ожидаемые частоты будут следующими: p2 + 2pq + qz. Частота гена А в новом поколении выражается формулой (p2+pq)/(p2 + + 2pq + q2), которую можно преобразовать к виду (p(p + q))f J(p + q)2, а поскольку p + q = l, она сводится к р. Однако общая частота генов в этом локусе равна, согласно определению, 1, так что частота " аллелей а составляет (1 — р), то есть q (опять-таки по определению). Итак, частоты генов остались в точности прежними и будут продолжать оставаться такими в каждом из последующих поколений. Следовательно, менделевские механизмы сами по себе не вызывают изменений в частотах генов и поэтому не могут быть важным фактором, направляющим эволюционное изменение. Очевидно, в этом должны участвовать другие факторы.
2.3.2. Холдейн, Фишер и значение отбора
Может ли естественный отбор распознавать мелкие различия в генетически детерминированных признаках, оказывающие лишь небольшое воздействие на выживание и размножение их носителей? Могли ли эти мелкие случайные различия сами по себе вызывать существенные изменения? Или же нам следует допустить, что основным материалом для эволюции служат крупные скачкообразные изменения? Эти вопросы поставили Дж. Б. С. Холдейн в своей книге «Генетическая теория эволюции» (J. В. S. Haldane, Genetlcal Theory of Evolution, Longmans, 1930) и Р. А. Фишер в «Факторах эволюции» (R. A. Fisher, The •Causes of Evolution, Oxford, 1932). Эти две книги сыграли чрезвычайно важную формирующую роль в дальнейшем развитии неодарвинизма. Еще одной важной фигурой в его развитии был Сьюэлл Райт (Sewall Wright). Однако, подход Райта к этим вопросам настолько отличался от позиций Холдейна и Фишера, что мы рассмотрим его отдельно в разд. 2.3.3.
И Фишер, и Холдейн выражали интенсивность отбора через изменения в частотах генов. Те аллели, частота которых относительно других аллелей выше, считаются более приспособленными, поэтому изменение относительных частот аллелей служит мерой «неодарвиновской» приспособленности. (Обратите внимание, что нельзя ограничиваться рассмотрением абсолютных изменений, так как при понижении абсолютной плотности данного аллеля в популяции он все же может оставлять больше своих представителей, чем другие аллели, если плотность этих других аллелей уменьшается быстрее. В таком случае он все еще более приспособлен, поскольку в преобладающих в данной среде условиях он по сравнению с другими аллелями оказался более преуспевающим.)
Проще всего начать анализ с динамики генов в гаплоидных популяциях (то есть в популяциях, в которых каждая особь содержит по одному аллелю на локус); в табл. 2.2 представлены основные расчеты для двух аллелей (Л и а) в такой популяции. Холдейн измерял приспособленность, сравнивая чистые скорости прироста R, то есть делил значение R для каждого аллеля на максимальное значение R, так что приспособленность наиболее преуспевающего аллеля становится равной 1, а приспособленность других аллелей — какой-то доле 1. Этот индекс обычно обозначают буквой w и называют селективной или адаптивной ценностью. В некоторых случаях эту величину можно записать в виде 1 —w ( = s), что выражает степень, в которой данный ген подвергается отрицательному отбору; s называют коэффициентом отбора.
Таблица 2.2. Вычисление приспособленности в гаплоидной популяции
| Аллель | Численность в одном поколении | Численность в одновременном следующем поколении | Чистый прирост за период между нулевым временем и временем t | Показатель приспособленности ' Холдейна (относительно Л) |
| А | N0 | Nt | Nt --- = RA N0 | 1 |
| а | N0 | nt | nt ---- = Ra n0 | Ra/RA |
Это крайне упрощенный пример. Время генерации у аллелей А и а может быть различным, и в таком случае придется вносить поправку путем деления всех величин на время генерации. Если поколения перекрываются (то есть особи, составляющие популяцию в данный момент времени, имеют разный возраст) и размножение у разных поколений происходит несинхронно, то положение еще более осложняется, потому что в этом случае нет стандартных интервалов, которые можно было бы использовать для сравнения изменений частоты аллелей А и а. Поэтому Фишер предпочел использовать в качестве меры приспособленности относительные скорости размножения генов в данной популяции, так как в экстремальном случае непрерывного размножения (какие-то особи из тех или иных поколений приносят потомков все время) эту скорость можно вычислить из изменений абсолютной численности (например, N для аллеля А и п для аллеля а) на протяжении какого-либо промежутка времени. Подобный мультипликативный рост описывается уравнениями dN/dt—rAN и dn/dt = ran, которые после интегрирования приобретают вид Nt = N0erAt и п( = поега( (е — основание натуральных логарифмов, r — константа, t — время, А к а — аллели, к которым относится данный параметр). Коэффициент г, который Фишер назвал «мальтузианским параметром» (поскольку Мальтус был одним из первых, создавших модель мультипликативного роста), представляет собой меру скорости распространения каждого гена и поэтому служит показателем приспособленности. Обратите внимание, что если мы примем t за среднее время генерации, как в случае прерывистого роста, то тогда
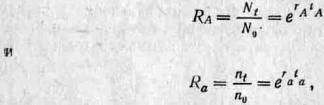
и если, из соображений удобства, мы примем tA = ta=, то RalRA = era~-rAn поэтому In wa=ra—га- Следовательно, эти два показателя приспособленности связаны друг с другом. Популицонные генетики обычно предпочитают пользоваться холдейновской мерой приспособленности, тогда как эволюционные экологи часто используют меру, предложенную Фишером. В этом разделе мы в дальнейшем будем пользоваться параметрами w и s, а к коэффициенту r вернемся в разд. 3.4. (Более подробное рассмотрение коэффициента r и его ограничений в качестве меры приспособленности можно найти у Чарлзуорта (3).)
Уравнения для диплоидного случая гораздо сложнее, чем для гаплоидного, потому что степень распространения или сокращения данного аллеля в популяции зависит от того, с какими аллелями он становится связанным в гетерозиготах. Так, например, вредный рецессивный ген будет защищен от элиминации отбором, если он в гетерозиготном состоянии связан с благоприятными доминантными аллелями. И напротив, отбор, направленный против вредного доминантного аллеля, ведет к элиминации благоприятных рецессивных аллелей, если они связаны с ними в гетерозиготах.
Приспособленность генотипов можно вычислить в основном таким же способом, как и приспособленность составляющих их аллелей. Это довольно искусственный способ, потому что гомо-зиготы одного поколения могут вносить вклад в гетерозиготы другого и наоборот (то есть поставляются последующим поколениям гены, а не генотипы). Тем не менее из этих частот генотипов можно вывести изменение частоты аллелей при условии, что мы располагаем дополнительной информацией: а) о начальных частотах аллелей и б) о степени доминирования. Мы делаем это, используя адаптивные ценности и коэффициенты отбора, а не мальтузианские параметры, однако аналогичным образом можно использовать и последние (9).
Простейший возможный случай относится к одному локусу с двумя аллелями, например Л и а, с частотами соответственно р и q. Большая часть рассуждений в популяционной генетике основана на системе именно такого типа. Допустим, что в результате отбора равновесие Харди—Вайнберга в некоей воображаемой популяции сдвигается следующим образом:
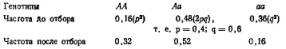
Изменение, происшедшее с каждым генотипом (то есть эквивалент R в табл. 2.2), составит поэтому АА = 0,32/0,16 = 2; Аа — = 0,52/0,48=1,08; аа = 0,16/0,36=0,44; на основе этого можно получить значение приспособленности для каждого генотипа, разделив каждое из полученных чисел на 2 (то есть на самое большое значение).
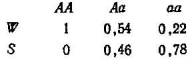
Отсюда (W и S набраны прописными, так как они обозначают генотипы, а не свойства генов; этого мы будем придерживаться по всей книге). Возвращаясь к начальным данным, можно получить новые частоты генотипов, установившиеся после отбора, из произведения исходных частот и значений W, приведя каждое из них к долям единицы путем деления на сумму этих отдельных членов. Эту сумму иногда обозначают через W, и она равна средней, по всем W.
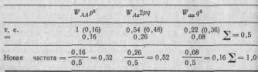
В табл. 2.3 эти результаты представлены в обобщенном виде.| Из первоначальных частот генов и значений W мы можем теперь! вычислить конечные частоты аллелей (то есть q' и р'). Отсюда час-| тота аллеля а после отбора будет равна
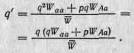
Изменение частоты (А2) за одно поколение равно поэтому q'—q. Приведенные выше уравнения обычно записывают не через W, a через 5, но это лишь обычная замена переменных. Аналогичным образом р' — это просто 1 — q'.
Таблица 2.3. Обобщение результатов вычисления изменений в частотах генотипов, рассмотренных в тексте
| АА |