Принципы эволюции
Поскольку гены объединены в организмах, нетрудно понять, почему они должны сотрудничать друг с другом; однако теория эгоистичного гена ставит и другой вопрос: почему организмы? Почему, спрашивает Доукинс (13) в заключительной главе своей книги «Расширенные границы фенотипа», гены собираются в ге-номы, а клетки — в многоклеточные тела? Ответить на это в общей форме несложно: гены, входящие в группы, передаются более эффективно, чем гены, которые в них не входят, однако объяснить причины этого более детально не так просто, и адаптационистской программе следует теперь ими заняться. Кроме того, если интеграция, кооперация и коадаптация так важны, то почему они не привели к чему-то большему, чем сцепление генов? Почему, — и здесь мы вновь возвращаемся к разд. 3.7,— механизмы, связанные с половым размножением, которые в такой же степени склонны разрушать благоприятные сочетания генов, как и создавать их, получили возможность сохраниться? Почему, говоря словами Тренера (41), геном не застывает? Это трудные, но тем не менее важные и глубокие вопросы, к которым адаптационистская программа только начинает приступать.
3.9. Рекомендуемая литература.
Критическое рассмотрение адаптационистской программы см. у Гоулда и Левонтина (18). Обоснование этой программы дает Доукинс (13). Использование принципа оптимальности иллюстрирует Александер (1), а теории игр —Мэйнард Смит (29). Приложение адаптационистской программы к физиологической экологии рассматривают Таунсенд и Кейлоу (40), а к экологии поведения— Кребс и Девис (23).
Глава 4. ЭВОЛЮЦИЯ И РАЗВИТИЕ.
4.1. Введение.
При неодарвинистском подходе к эволюционной биологии главное внимание уделяется генетическим основам изменения и постоянства популяций, тогда как адаптационисты сосредоточили внимание на фенотипах. Однако эти два аспекта эволюции разделять не следует, ибо выражение фенотипа частично зависит от генотипа, а распространение генов зависит от того, сколь успешно фенотипы взаимодействуют со своей средой. Эти взаимозависимости иллюстрирует рис. 4.1. Экспрессия генов осуществляется через посредство морфогенетической системы, на которую оказывают также влияние изменяющиеся факторы среды. Уоддингтон (12) назвал изучение этих взаимодействий эпи-генетикой. В гл. 3 мы уже коснулись экологических и реверти-рованных эпигенетических законов, показанных на рис. 4.1.
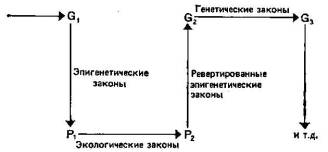
Рис. 4.1. Некое исходное распределение генов (Gi) дает определенные фенотипы (Pi) в соответствии с эпигенетическими законами. Распределение фенотипов изменяется в соответствии с экологическими законами (переходя в pz)- Эти фенотипы вносят в генофонд (Gj) гены, которые распределяются в соответствии с генетическими законами (Оз). В этой главе основное внимание уделено рассмотрению пути от генов (G) к фенотипам (Р).
Здесь мы обратимся к самим эпигенетическим законам. Будут рассмотрены лишь два из наиболее важных принципов: как мелкие мутации могут амплифицироваться в процессе развития и как морфогенетическая система противодействует некоторым типам генетических изменений.
4.2. Амплификация в процессе развития.
Джозеф Нидхем (9) различал в онтогенезе три основных процесса: 1) рост — увеличение объема и веса; 2) развитие — диф-ференцировка и возрастание сложности организации (морфогенез); 3) созревание — прекращение развития и роста и наступление репродуктивных процессов. Джулиан Хаксли (7) изучал, каким образом второй из этих процессов взаимодействует с первым, направляя и регулируя изменения размеров органов и соотнося их друг с другом и с изменениями величины организма в целом. Такие взаимоотношения часто описываются простым математическим уравнением

где У — размеры данной части, X — размеры другой части или организма в целом, а и р — константы (но ср. Смит (11)).
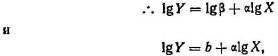
где b=lg(бета). Эти соотношения известны под названием алломет-рических зависимостей, где а — константа аллометрии: если а>1, то У увеличивается в размерах быстрее, чем X, если же <х<1, то наоборот, если а=1, то X и У растут пропорционально одна другой, и этот особый случай называют изометрией. Соответствующие примеры приведены на рис. 4.2. Эти зависимости могут отражать лежащие в их основе морфогенетические ограничения, и (или) скейлинг-эффект, и (или) конкуренцию между отдельными частями организма за ограниченные ресурсы, поступающие с пищей (11).
Нидхем (9) указывал, что как в принципе, так и практически относительные скорости и сроки наступления трех выделенных им фундаментальных процессов можно изменять и что такие регулировки оказывают глубокое влияние на конечный результат развития. Можно, например, экспериментально ускорить дифференцировку по отношению к росту и получить карликов (экспериментальная карликовость). У некоторых беспозвоночных можно подавить размножение и получить великанов (паразиты нередко кастрируют своих хозяев, что приводит к тому же результату). Если возможно искусственно разделить рост и развитие, то можно предполагать, что такая гетерохрония играет важную роль в эволюции. Мелкие мутации могли бы оказывать некоторое влияние на скорости и сроки роста органов и тканей, но сильно воздействовать на конечный результат — иными словами, небольшие изменения в а и (или) b могут иметь очень важные последствия для организации и морфологии взрослого организма.
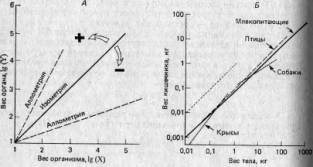
Рис. 4.2. Примеры аллометрии в теории (Л) и на практике (Б). Построенные в логарифмическом масштабе графики зависимости размеров одного органа (Y) от другого или от размеров организма в целом (X) часто имеют вид прямых. Если наклон этих прямых равен единице, то зависимость называют изометрической (для сравнения на рис. Б она изображена пунктиром); в этом случае X и Y увеличиваются в размерах с одинаковыми скоростями. Зависимость между весом кишечника и общим весом тела у млекопитающих и птиц примерно изометрична. Если наклон больше единицы, то зависимость положительно аллометрична и размеры Y увеличиваются быстрее, чем размеры X (например, данные по крысам). Когда наклон меньше единицы, то зависимость отрицательно аллометрична и Y увеличивается медленнее, чем X (например, данные по собакам). Такие графики можно строить для особей, принадлежащих к одному виду (например, данные по собакам и крысам), или для особей, принадлежащих к нескольким разным видам (например, данные по млекопитающим и птицам).
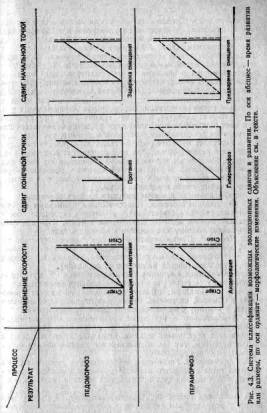
Олберч и др. (2) систематизировали возможные способы возникновения таких регулировок по отношению к некой временной компоненте, определяющей инициацию развития, возраст и начало созревания (то есть 3-й процесс из триады Нидхема). На рис. 4.3 эта система представлена графически. В каждом квадрате заключена некая траектория развития, то есть некий показатель формы в зависимости от размеров или возраста. (Если используются размеры, то эти графики можно рассматривать как эквиваленты зависимостей, которые исследовал Хаксли.) Сплошными линиями изображены траектории предков, а прерывистыми — потомков. Вертикальная линия «Старт» указывает начало развития, а линия «Стоп» — его прекращение. При всех изменениях в верхнем ряду развитие замедляется или урезывается по сравнению с развитием предков, так что зрелость наступает на более ранней стадии развития. Этот процесс называется педоморфозом. При всех изменениях в нижнем ряду развитие, напротив, ускоряется или удлиняется, и это носит название пераморфоза. В этих случаях потомки проходят через предковые стадии на более раннем этапе развития, то есть имеет место рекапитуляция предковых форм.
Можно привести примеры каждого из этих процессов.
1. Ретардация/неотения. Классическими примерами служат некоторые амфибии (хвостатые), у которых взрослые особи сохраняют жабры и другие личиночные органы. Взрослая форма выглядит поэтому как личинка и обитает в воде.
2. Прогенез. Самцы некоторых ракообразных достигают половой зрелости в то время, когда их общие размеры невелики. Эти миниатюрные самцы «паразитируют» на самках, которые гораздо крупнее (иногда на несколько порядков).
3. Предварение смещения (predisplacement). У мутантных «ползающих» (screeper) кур кости ног дифференцируются позднее, чем у нормальных цыплят, но дальнейший их рост происходит с обычной скоростью. Время вылупления также не изменяется, а поэтому у вылупляющихся цыплят ноги короткие.
4. Акселерация. У некоторых сравнительно молодых видов аммонитов рост лопастных линий на раковинах ускорен по сравнению с предковыми видами. Однако в этом замешаны и другие процессы, так что в дальнейшем данный пример будет рассмотрен более подробно.
5. Гиперморфоз. Гигантские по сравнению с другими видами размеры ныне вымершего оленя Megaloceros giganteus достигались, возможно, за счет продолжения роста и задержки размножения.
6. Задержка смещения (postdisplacement). Этот процесс вместе с предварением смещения, возможно, участвует в регуляции типов полосатости у зебры. Бард (3) считает, что у зародыша имеется единственный механизм, создающий вертикальные полосы. В зависимости от того, на какой стадии роста он вступает в действие, полосы на голове будут шире (процесс начинается раньше — предварение смещения) или уже (процесс начинается позднее — задержка смещения) и расположение полос может быть весьма разнообразным. Наблюдается несколько типов полосатости, которые можно объяснить инициацией процесса образования полос в течение третьей (Equus burchelli), четвертой (Е. zebra) или пятой (Е. grevyi) недель развития.
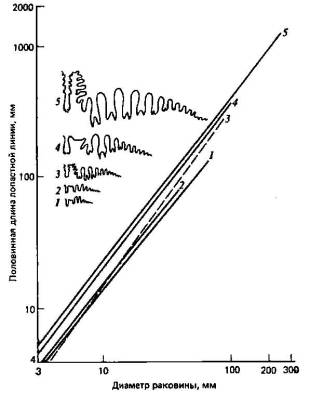
Рис. 4.4. Участие нескольких морфогенетических явлений в эволюции аммонитов (8). Изображены лопастные линии предковых (/) и происходящих от них видов (2—5). Самая древняя часть лопастной линии — небольшой участок справа. Более подробные объяснения см. в тексте.
Не следует, однако, ожидать, что нам всегда удастся наблюдать «в чистом виде» описанные выше изменения; в сущности, более вероятно возникновение морфологических изменений в результате сочетания различных морфогенетических явлений. Хорошим примером служит аллометрическая зависимость между длиной лопастной линии и общими размерами тела у аммонитов, о которой уже говорилось выше и которая представлена на рис. 4.4. Здесь наклон кривых для потомков круче, чем для предков (рис. 4.4,1), так что дифференцировка этих лопастных линий у более молодых видов ускорена по сравнению с предковыми видами. Но, кроме того, в филогенезе этой группы наблюдается выраженное увеличение общих размеров, и у потомков продолжается аллометрический рост лопастных линий, выходящий далеко за пределы размеров взрослых особей у предковых видов (гиперморфоз). Наконец, траектории видов-потомков располагаются выше, чем траектории предковых видов, так что потомки с самого начала уже обладают известным преимуществом, возможно, в результате какого-то предварения смещения.
Итак, все приведенные выше примеры показывают, каким образом изменения процессов развития могут оказывать существенное воздействие на дефинитивную морфологию взрослого организма. В принципе это может быть достигнуто при помощи мелких изменений в скоростях нескольких ключевых процессов, то есть путем мелких генетических изменений. В этом и заключается амплификация в процессе развития.
4.3. Канализация развития.
Одно из важнейших заключений, вытекающих из эмбриологических исследований, состоит в том, что развитие — процесс упорядоченный, способный в значительной степени сопротивляться нарушающим воздействиям, оказываемым на него «извне» (например, экспериментальные воздействия) или «изнутри» (например, мутации). Это можно проиллюстрировать следующими примерами.
1. Специалисты по экспериментальной эмбриологии уже довольно давно поняли, что у некоторых организмов процессы развития способны обеспечить образование хорошо сформированных адаптивных фенотипов даже при наличии значительных нарушающих воздействий извне — процесс, известный под названием гомеостаза развития. Так, например, еще в XIX в. Ганс Дриш (Hans Driesch) разрезал зародышей морского ежа на стадиях гаструлы и прегаструлы пополам (рис. 4.5) и получал из таких половинок вполне пропорциональных взрослых особей, хотя и несколько меньших размеров, чем обычные.
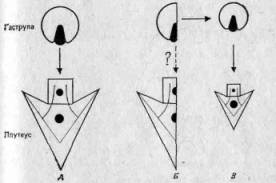
Рис. 4.5. Эксперименты Дриша на зародышах морского ежа. А. Нормальное развитие. Б. Гаст-рула, которую Дриш разрезал пополам, ожидая, что из нее разовьется «урод». В. Вместо ожидаемого урода из этой гаструлы в результате ее реорганизации развился маленький, но полный плутеус, способный в дальнейшем образовать нормальную взрослую особь.
2. Мутации в большинстве случаев рецессивны. В 20-х годах нашего века Морган (Morgan) заметил, что в природе все особи, принадлежащие к данному виду Drosophila, удивительно похожи друг на друга, и объяснял это тем, что все они обладают одним и тем же генотипом дикого типа; в сущности, это и предсказывал Дарвин (см. разд. 3.5). Добржанский (4), однако, показал, что подобное объяснение неверно; одинаковые на вид родительские особи могут иметь различные генотипы, поскольку генетическое разнообразие частично маскируется доминант-ностью. И в самом деле, само доминирование могло возникнуть именно по этой причине, то есть как проявление механизма, демпфирующего воздействие мутаций (см. разд. 3.7).
3. Эдмондс и Соуин (5) и Соуин и Эдмондс (10) изучали изменчивость строения дуги аорты у одомашненного кролика. На материале 3000 вскрытий они выделили всего лишь 20 типов строения, которые можно свести к 6 основным категориям (рис. 4.6). Эти 6 категорий встречаются с разной частотой. Такого рода наблюдения позволяют предполагать, что сложным системам органов свойственна ограниченная и не случайная изменчивость. Эдмондс и Соуин установили, что разные типы строения дуги аорты — результат различных скоростей роста передне-грудной области и осевого скелета.
4. При направленном отборе по отдельным признакам, проводимом в лаборатории, часто наблюдается следующая картина: после первоначальной быстрой реакции достигается определенный порог, и, несмотря на сильное давление отбора, дальнейшее изменение вызвать не удается (рис. 4.7). Подобная устойчивость фенотипа к сильному внешнему давлению отбора, возможно, обусловлена быстрым истощением изменчивости в популяции, подвергаемой отбору, и(или) участием внутренней, генетической и морфогенетической регуляции. Полагают, что последняя имеет важное значение.
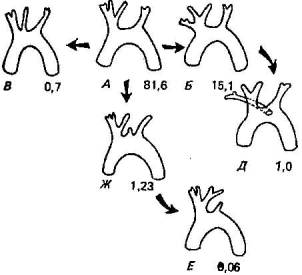
Рис. 4.6. Вариации в строении дуг аорты у кроликов, выявленные на материале 3000 вскрытий (10). Существует 6 основных типов строения, к которым относятся 99,7% всей изменчивости. Указана частота каждого типа.
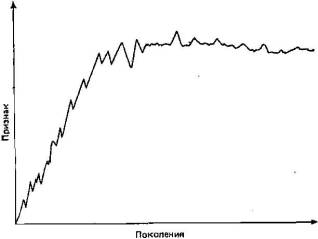
Рис. 4.7. Обычный тип реакции на направленный отбор. Объяснение см. в тексте.
5. Хоботок дрозофилы иногда превращается в усик, антенна— в ногу, голова — в грудной сегмент, проторакальный сегмент— в мезоторакальный и так далее. Морфологические изменения, в результате которых одна структура превращается в другую, называют гомоэотическими трансформациями. У насекомых такие трансформации встречаются довольно часто; при этом они возникают не