Принципы эволюции
У нас очень мало сведений о механизмах, стоящих за этими различными аспектами регуляции развития. Уоддингтон (12) назвал ее канализацией развития (каналы = траектории; Уоддингтон назвал их креодами) и представлял в виде мяча, перемещающегося по рельефному ландшафту (рис. 4.8). Мячик изображает продвижение развития. Средовые и генетические возмущения стремятся отклонить мячик с его пути; допускаемая степень такого отклонения зависит от глубины каналов, то есть от степени канализации. Один генотип может допускать развитие по одному из нескольких онтогенетических путей, а степень реализации каждого данного пути зависит от их относительной канализации. Какая-либо пертурбация, возникшая в среде, может выбить мячик из одного канала и столкнуть его в соседний канал. Вместе с тем такая пертурбация может привести к отбору на «углубление» альтернативного канала.
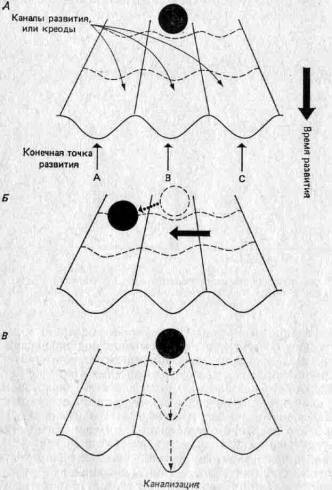
Рис. 4.8. Модель развития, предложенная Уоддингтоном. А. Мяч перемещается по каналу, или креоду, к некой конечной точке. Б. Возникающие в среде возмущения (черная горизонтальная стрелка) могут отклонить развитие, направив его к какой-то другой конечной точке. В. Отбор может углубить каналы и обеспечить преимущество одной конечной точки.
Это представляет собой одно из возможных объяснений наблюдения, что гомоэотические трансформации могут возникать под действием генетических изменений и (или) изменений в среде.
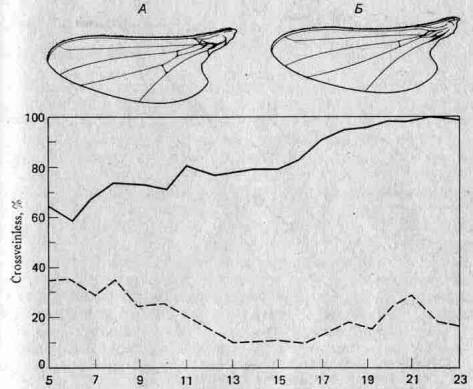
Рис. 4.9. Развитие у дрозофилы крыльев без поперечных жилок (crossveinless) под действием теплового шока. А. Нормальное крыло. Б. Крыло crossveinless; такое крыло может превратиться в нормальное в результате отбора среди мух с этим признаком после теплового шока (сплошная линия); штриховая линия — результаты отбора среди мух, которые не реагировали на тепловой шок.
Уоддингтон провел еще одно интересное исследование кана.-лизации. В обычных условиях у Drosophila melanogaster развивается крыло с нормальным набором поперечных жилок (рис. 4.9). Если подвергнуть мух во время развития тепловому шоку (40°С), то некоторые из этих жилок исчезают (то есть возникает состояние crossveinless; рис. 4.9). Более того, отбирая такие отклоняющиеся формы на протяжении нескольких поколений, Уоддингтон обнаружил, что крылья crossveinless могут возникать автоматически, без теплового шока. На первый взгляд создается впечатление, что мы здесь имеем дело с наследованием приобретенного признака; однако возможно и более правдоподобное неодарвинистское объяснение, которое иллюстрирует рис. 4.10. Генетический потенциал для признака crossveinless всегда имеется в виде «менее предпочтительной траектории».
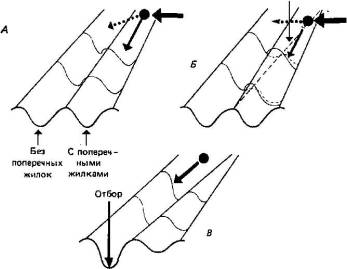
Рис. 4.10. Объяснение результатов, приведенных на рис. 4.9. А. Тепловой шок (черная горизонтальная стрелка) отклоняет мячик, направляя его на траекторию crossveinless. Б. Отбор понижает высоту «хребта» между траекториями, облегчая отклонение. В. Состояние crossveinless становится нормальным, а действие отбора углубляет (канализирует) эту траекторию.
Под действием теплового шока мячик перескакивает через холм на эту траекторию, и отбор (в данном случае — искусственный) приводит к уменьшению высоты холма и углублению альтернативного канала. Непосредственный эффект всего этого — создание фенокопий, а долговременный — реканализа-ция. Возможно, что такой же процесс участвовал в эволюции уплотненной кожи на подошвах ног у человека. Кожа обладает генетическим потенциалом к «уплотнению» при наличии соответствующего стимула, то есть стирания. Кожа на подошвах ног непрерывно стирается при ходьбе и поэтому уплотняется. Однако те индивидуумы, которые оказались способными наиболее эффективно реагировать на это (то есть те, у которых были «сравнительно низкие холмы» и более глубокие «каналы уплотненной кожи») могли иметь некое селективное преимущество. Таким образом, процесс уплотнения мог канализироваться, и теперь уплотненная кожа развивается без всякого стимула еще до того, как ребенок начинает ходить.
4.4. Заключения.
Тот факт, что мелкие генетические изменения могут ампли-фицироваться в процессе развития, приводя к более крупным фенотипическим эффектам, и что морфогенетические процессы часто проявляют устойчивость к нарушениям развития, создаваемым генетическими факторами и факторами среды, позволяет считать, что зависимость между генотипом и фенотипом носит нелинейный характер. Кроме того, изменчивость признаков, детерминируемых генами, ограничена и некоторые их изменения, по-видимому, более вероятны, чем другие. Следовательно, можно сказать, что возникновение генетически детерминированных фенотипических новшеств направляется фенотипом, и это ослабляет концепцию случайности в ее неодарвинистском понимании. Значение амплификации и канализации для эволюционной теории пока еще весьма неясно. Несомненно, однако, что как в адаптационистской, так и в генетической программе эволюционной биологии необходимо учитывать ограничения, налагаемые развитием.
4.5. Рекомендуемая литература.
Общим введением в проблемы «эволюционной биологии развития» могут служить книги Уоддингтона (12), Гоулда (6), Ол-берча и др. (2) и Олберча (1). Это сравнительно новая и сложная область, а поэтому читателю не следует рассчитывать, что он сможет найти в литературе достаточно последовательное и полное ее изложение.
Глава 5. МАКРОЭВОЛЮЦИЯ.
5.1. Введение.
Большая часть предыдущих глав была посвящена вопросу о том, каким образом организмы достигают соответствия со своей средой и постоянно поддерживают его (иногда это называют анагенезом). В этой последней главе мы займемся другим важным эволюционным процессом — происхождением разнообразия (иногда его называют кладогенезом). Макроэволюция— термин, означающий эволюционное развитие таксономических единиц видового и надвидового уровней. Эволюция этих единиц составляет основу создания таксономического разнообразия, и поэтому в рамках данной книги макроэволюция и кладо-генез будут использоваться как синонимы. Мы начнем с рассмотрения того, какие типы таксбнов можно различать и как их можно классифицировать.
5.2. Таксономические категории и система классификации.
Человек всегда стремился давать названия окружавшим его животным и растениям и обычно обращал внимание на существующую в живом мире иерархию таксонов. Последнее означает, что группы организмов, сходных по нескольким важным признакам, можно разделить на группы, обладающие этими и рядом других общих признаков, а эти группы можно подразделить в свою очередь на подгруппы и так далее. Линней рассматривал это как некую шкалу упорядоченности, приданную природе творцом, и представил ее в виде ряда категорий, расположенных в иерархическом порядке. Его система имела следующий вид:
ЦАРСТВО
КЛАСС
ОТРЯД РОД ВИД
Чем ниже место, занимаемое категорией в этом ряду, тем больше число общих признаков у входящих в нее подгрупп. С течением времени было создано много дополнительных категорий, но в основе системы классификации живых организмов все еще прочно лежит линнеевская иерархия. Большинство современных биологов различают следующие категории:
В ботанике и микробиологии типу соответствует отдел, а отряду—-по« рядок.
ЦАРСТВО
ТИП
КЛАСС
отряд
семейство .
РОД
вид
Все эти категории можно дробить дальше; так, например, на уровне отряда можно различать надотряды, отряды, подотряды и инфраотряды; подобные же категории можно создавать на любом другом уровне. В табл. 5.1 дана полная характеристика положения в системе медоносной пчелы и человека.
Таблица 5.1. Положение в системе медоносной пчелы и человека.
| Категория | Медоносная пчела | Человек |
| Тип | Arthropoda | Chordata |
| Подтип | Vertebrate | |
| Класс | Insecta | Mammalia |
| Подкласс | Pterygota | Eutheria |
| Отряд | Hymenoptera | Primates |
| Подотряд | Apocrita | Simiae |
| Род | Apis | Homo |
| Вид | mellifera | sapiens |
Примечание: название каждого вида слагается из двух слов — его родового и видового названий. Так,
Человек = Homo sapiens Медоносная пчела = Apis mellifera.
Такую систему обозначений называют биномиальной, и она также была введена Линнеем. Родовое название принято писать с прописной буквы, а видовое — со строчной; оба названия выделяют курсивом.
Для Линнея иерархическая система живых организмов отражала упорядоченность, которую заложил творец в свое создание. Для современных биологов это упорядоченность, в основе которой лежат общность происхождения и эволюционное родство. Основной единицей в том и другом случае служит вид: для Линнея — потому что он верил, что это единица, сотворенная богом, а для эволюционистов — потому что это та единица, на которую действует естественный отбор. В принципе вид можно теперь объективно определить как группу особей, способных обмениваться друг с другом генами, то есть скрещиваться между собой; тем самым эта группа обладает общим генофондом, доступным действию естественного отбора. Такое определение известно под названием биологической концепции вида. На практике однозначно идентифицировать биологические виды не удается, особенно если речь идет о мертвых и фоссилизирован-ных индивидуумах; поэтому обычно пользуются более прагматическим определением: вид — это категория, в которую систематики объединяют индивидуумов. Во всяком случае, современные биологи согласны в том, что эти группы эволюционировали от предковых видов, так что все современные формы связаны более или менее близким родством; поэтому они стараются распределить виды по группам, которые бы отражали эти эволюционные родственные связи.
Эволюция порождает явления двух разных типов, которые необходимо принимать во внимание при создании систем классификации: а) определенный порядок происхождения от предков; б) ту или иную степень дивергенции от предков. В общем, первое обусловливает черты сходства, а второе — различия. Представим себе три вида, возникающие одновременно от общего предка. У двух из них развились только мелкие различия, тогда как третий довольно заметно дивергировал от двух других (например, у него возник некий существенный новый признак). Если классифицировать эти формы на основании первого принципа, то следует считать, что все три вида связаны одинаковой степенью родства; если же применить второй принцип, то вид, обладающий новым признаком, следует отделить от двух других видов. Существует три разных взгляда на значимость этих критериев.
1. Кладизм (5, 7)
Этот подход основан на принципах, сформулированных энтомологом В. Хеннигом в 1950 г. (но см. (7)); главная роль в нем отводится генеалогии, то есть ветвящимся последовательностям, как единственному объективному способу установления систематического положения. (Слово «кладизм» происходит от греч. «кладос» — ветка или молодой побег.) Все члены данного так-сона (клады) должны брать начало от одного и того же предка, и организмы следует группировать только в соответствии с последовательностью их отделения от общего предка. Этот анализ обычно бывает основан на допущении, что все виды, существующие в любой данный момент времени, связаны родственными узами благодаря происхождению от общих предковых форм (рис. 5. 1, А, I но не //), не будучи сами предками каких-либо других существующих в это время видов. Следовательно, все современные виды можно объективно расположить в некой последовательности, строго основанной на генеалогическом родстве, и такое расположение можно схематически представить в виде кладограммы (рис. 5.1, А, III). Кладограммы строятся на основе наблюдаемого, или предполагаемого, числа признаков, встречающихся одновременно у всех групп. Однако к сходству как таковому следует относиться с осторожностью, так как может оказаться, что оно всего лишь отражает конвергенцию (развитие у различных структур внешнего сходства вследствие одинаковой функции; например, крылья летучих мышей, птиц и насекомых). Эволюционные родственные связи могут основываться только на признаках, сходство которых обусловлено тем, что они унаследованы от общего предка; такие признаки называют гомологичными. Чем больше общих гомологичных признаков имеется у двух видов, тем ближе родство между ними. Два вида, состоящие в самом тесном родстве, обладают гомологичными признаками, не встречающимися ни у каких других видов. Однако мы не смогли бы далеко уйти, если бы строили систему классификации на основе фундаментальных признаков, свойственных большинству организмов (таких, например, как многоклеточ-ность или даже пятипалое строение конечности у позвоночных), потому что, по определению, они действительно имеются у большинства организмов. Такие признаки называют общими примитивными признаками (иногда их называют симплезио-морфньши признаками). Кладисты утверждают, что ветвящиеся последовательности можно выделять лишь в том случае, если удается идентифицировать общие специализированные признаки (иногда их называют синапоморфными) — гомологичные сходства, наличествующие в самой точке ветвления. Возьмем, например, кошку, льва, тюленя и человека. У них много общих примитивных признаков (многоклеточность, кровь, пятипалые конечности и т. п.). Однако крупный головной мозг и бинокулярное зрение — это общие специализированные признаки, свойственные только приматам, и они определяют первую точку ветвления, отделяющую человека. У кошек и львов больше общих специализированных признаков (например, утрата верхних коренных, превращение верхних предкоренных в хищнические зубы), чем у каждого из них с тюленем, и это определяет нашу вторую точку ветвления. Кладограмма, получающаяся в результате такого анализа, изображена на рис. 5.1.А, III, где, а — человек, b — тюлень, с — лев, а — кошка.
И один последний вопрос: как