Принципы эволюции
Таким образом, как и традиционный неодарвинизм, теория прерывистого равновесия представляет себе начальный источник изменчивости как случайный по отношению к направлению-эволюции, но рассматривает эту изменчивость как сопряженную с изменениями гораздо большего масштаба. Кроме того, вследствие этого и последующего застоя теория прерывистого равновесия рассматривает источник изменчивости, то есть изоляцию или периоды видообразования, как самые важные элементы, определяющие направление и скорость эволюции (возврат к взглядам ранних менделистов?).
Но если это так, то в результате каких же процессов возникают адаптации и как создаются эволюционные направления, если и то, и другое — черты, ярко выраженные как в палеонтологической летописи, так и у ныне существующих видов? Для сторонников прерывистой эволюции ответом будет отбор видов (термин, созданный Стенли (18)). Согласно этой точке зрения, эволюционные направления могут возникнуть: 1) потому что некоторые случайно образовавшиеся изоляты более устойчивы, чем другие, либо (а) потому, что они лучше приспособлены в обычном смысле, либо (б) вследствие экологических условий той местности, в которой они оказались изолированными (например, случайное отсутствие какого-либо прожорливого хищника); и (или) 2) потому что у некоторых видов в результате их организации или экологии видообразование происходит чаще, чем у других. Эти возможности проиллюстрированы на рис. 5.4. Как в случае 1, так и в случае 2 создаются эволюционные направления, но возникающие при этом адаптации, особенно в случаях 16 и 2, вряд ли окажутся такими совершенными, как те, которые могут возникнуть в результате более обычного постепенного видообразования.
В ее современной форме теорию прерывистого равновесия отстаивают, в частности, Гоулд и Элдридж (6) и Стенли (18, 19). Однако, как уже отмечалось, она уходит своими корнями в работы Гольдшмидта (см. выше), а также де Фриза (3). Т. X. Хаксли, один из самых верных союзников Дарвина, был также склонен признавать значительные скачки в процессе эволюции — к вящему неудовольствию самого Дарвина!
5.5. Сравнение теорий постепенной и прерывистой эволюции.
Для того чтобы показать более конкретно различие между постепенной и прерывистой эволюцией в плане эволюционных направлений и адаптации, рассмотрим классический пример эволюции современной лошади, далеким предком которой был Hyracotherium — трехпалое существо величиной не больше собаки. Палеонтологическая летопись свидетельствует, по-видимому, о постепенном изменении размеров тела и формы, приведшем в конечном счете к хорошо знакомому нам Equus. Классическое объяснение с позиций постепенной эволюции сводится к прогрессивному изменению под действием естественного отбора (см. разд. 3.2). В противоположность этому теория прерывистого равновесия объясняет направления в эволюции лошадей как результат асимметрии генеалогического древа. Эволюционная история лошади рассматривается как видообразовательная линия, в которой возникали некоторые новые виды, отличавшиеся большими размерами тела и сокращением числа пальцев, а также другие виды с совершенно иными морфологическими изменениями. Виды с более крупным телом и редуцированными пальцами оказались более удачливыми, чем виды с более примитивными признаками — большим числом пальцев и меньшими общими размерами, — и это привело к асимметрии генеалогического древа. С течением времени «центр тяжести» явно склоняется в сторону более крупного вида с одним пальцем (как, например, на рис. 5.4).
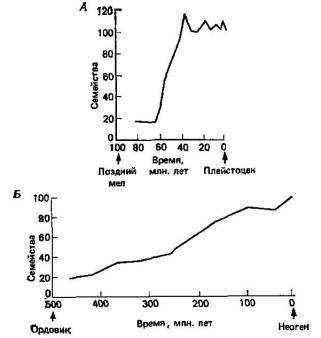
Рис. 5.5. Разнообразие семейств млекопитающих (А) и двустворчатых моллюсков (Б) на протяжении длительных периодов времени (19).
В табл. 5.2 перечислены главные различия между теориями постепенной и прерывистой эволюции. Таблица 5.2. Сравнение гипотез постепенного и прерывистого видообразования
| Фактор | Постепенное видообразование | Прерывистое видообразование |
| Изоляция | Случайный процесс, иногда неслучайный обычно аллопатрический | Изолированная подгруппа часто имеет неслучайный генетический состав; может быть симпатрическим или парапат-рическим |
| Источник изменчивости | Главным образом точковые мутации | Главным образом макромутации (то есть мутации в первоначальном смысле) |
| Отбор | Внутри популяций | Между популяциями (или видами) |
| Дивергенция | Медленная и непрерывная (и пропорциональная числу поколений) | Быстрая (непропорциональная числу поколений), но при отсутствии изменений в течение длительных периодов |
| Ограничения | Не очень существенные | Очень существенные |
| Адаптации | Очевидные и совершенные | Не столь очевидные и менее совершенные |
5.6. Проверка двух теорий эволюции.
Стенли (18,19) рассмотрел разного рода данные, которые можно использовать для сравнительной оценки теорий постепенной и прерывистой эволюции. К наиболее общим соображениям относится ожидание, что скорость макроэволюции (то есть скорость возникновения семейств и отрядов, отражающих крупные морфологические изменения) должна быть: 1) согласно модели постепенной эволюции, пропорциональна времени или, точнее, числу поколений, на протяжении которых могло развиваться разнообразие; и 2) согласно модели прерывистой эволюции, пропорциональна степени расщепления, то есть видообразования, которое имело место. Если удастся оценить как время, так и скорость расщепления, то тогда мы в принципе сможем провести различие между этими двумя гипотезами. На этой основе Стенли проводит сравнение между млекопитающими и двустворчатыми моллюсками. У млекопитающих скорость видообразования высокая и радиация в пределах группы, в результате которой возникло примерно 100 семейств, происходила в течение менее чем 30 млн. лет. У двустворчатых моллюсков, напротив, видообразование протекало медленно и соответственно происходила медленная радиация на протяжении более чем 300 млн. лет (рис. 5.5). Более того, среди двустворчатых моллюсков у одной группы сердцевидок (сем. Cardiidae) так называемого понтического ряда, изолировавшегося из Средиземноморья в Каспийском море, видообразование происходило быстрее, чем у ее близких родичей, и за менее чем 3 млн. лет эта группа достигла такого морфологического разнообразия, что ее теперь делят на четыре подсемейства.
Следствие, вытекающее из всех этих рассуждений, состоит в том, что в группах, в которых на протяжении длительных периодов геологического времени происходило мало эволюционных изменений, видообразование, очевидно, было незначительным. И действительно, так, по-видимому, обстояло дело со многими так называемыми живыми ископаемыми. Хорошим примером служат двоякодышащие рыбы. Быстрые морфологические изменения происходили у них только в период быстрого видообразования, в середине палеозоя, вскоре после их появления. После этого скорость видообразования резко понизилась, и вместе с ней упала и скорость морфологических изменений. Другим примером служат аллигаторы, строение которых в процессе эволюции изменялось мало, которые представлены в настоящее время всего двумя видами и никогда не отличались большим числом видов. Наконец, известен лишь один ныне живущий вид трубкозубов, а в палеонтологической летописи, вплоть до начала миоцена, к которому относятся самые ранние находки представителей этой группы, обнаружено лишь очень небольшое число их линий.
Все это свидетельствует в пользу теории прерывистой эволюции. Однако имеющиеся данные нельзя считать решающими, так как их анализ зависит главным образом от разделения ископаемых таксонов, которое может отражать в большей мере пристрастия систематиков, чем истинное течение эволюции; так, например, вопрос о том, какие группы видов образуют семейства, довольно субъективен. Даже соглашаясь принимать фактические данные, классический неодарвинист может заявить, что ряд факторов и, в частности, вариации в интенсивности естественного отбора перекрывают ожидаемую корреляцию между скоростью микроэволюции и временем, предсказываемую в пункте 1 в начале этого параграфа. Иными словами, неодарвинизм не настаивает на непременной постепенности. Он допускает возможность периодов быстрых изменений под действием интенсивного отбора и периодов медленных изменений под действием слабого отбора. Кроме того, застой в морфологии твердых частей тела — а именно они сохраняются в палеонтологической летописи—не обязательно означает застой в строении мягких частей, а также метаболических и поведенческих процессов. Таким образом, хотя фактические данные, очевидно, свидетельствуют в пользу теории прерывистой эволюции, они все еще далеко не окончательны, и вопрос остается открытым, вызывая горячие дебаты.
5.7. Была ли эволюция человека постепенной или прерывистой?
Креационисты (см. гл. 1) считали, что человек отделился от человекообразных обезьян с того момента, когда бог вдохнул в него душу! В ответ на это дарвинисты и неодарвинисты упорно настаивают на том, что человек произошел от человекообразных обезьян в результате постепенной прогрессивной эволюции. Исходя из этого, обычно принято помещать вид Homo sapiens в конец непрерывного ряда, после по крайней мере двух других видов (как, например, на рис. 5.6). Эти разные виды характеризуются следующим образом.
1. Ramapithecus (от Рама —индийское божество, и греч. пи-текос —обезьяна). Эта группа существовала примерно 8— 14 млн. лет назад. Она известна только по фрагментам нижней челюсти, которые позволяют считать, что лицевой отдел черепа у рамапитека был плоским, со слабо выступающей нижней
частью.
2. Австралопитек (от лат. austral —южный). Эта группа существовала 1,5—5 млн. лет назад. Лицевой отдел черепа у австралопитеков был плоским. Расположение черепа относительно позвоночника и костей задних конечностей относительно таза позволяет считать, что положение тела у него было вертикальным. Известны две главные группы австралопитеков: Australopithecus robustus с массивным черепом и крупными зубами, что свидетельствует о растительной диете, и группа, к которой относятся A. afarensis и A. africanus, с более изящным скелетом.
3. Homo habilis (человек умелый). Эта группа существовала 1,5—2 млн. лет назад. Ее представители были прямоходящими, имели относительно большой головной мозг и пользовались различными орудиями.
4. Homo erectus (человек прямоходящий). Эта группа существовала 1 млн. лет назад. У ее представителей походка была еще более сходна с нашей, мозг был крупнее, чем у Я. habilis, и они пользовались огнем.
5. Неандертальцы (от названия долины Неандерталь, где они были впервые найдены). Неандертальцы существовали примерно 0,5 млн. лет назад; они настолько сходны с современными людьми как по морфологии, так и по наличию определенной культуры с различными обрядами, что их считают одним из подвидов Homo sapiens.
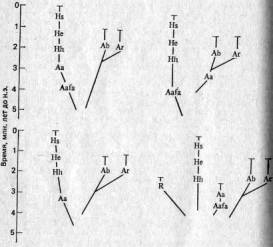
Рис. 5.6. Две разные филогении, предложенные для основных таксонов гоминид (2). R — Ramapi-thecus; Aafa—Australopithecus afarensis; Aa — A. africanus; Ab—A. boisei; Ar — A. robustus; Hh — Homo habilis; He — H. erectus; Hs — H. sapiens.
Недавно были обнаружены два важных факта, которые возродили точку зрения о том, что эволюция человека — процесс прерывистый (19). Во-первых, было высказано мнение, что одновременно существовал не один, а несколько видов гоминид, а это указывает на то, что филогения рода Homo была кустистой, а не линейной. Во-вторых, полагают, что имеются данные, свидетельствующие о наличии относительно длительных периодов застоя в филогении как группы автралопитеков, так и гоминид (см., например, Australopithecus africanus, Homo habilis и Я. erectus на рис. 5.7), а это довольно удивительно, принимая во внимание высокую абсолютную скорость, характерную для эволюции человека.
Вместе с тем данные о перекрывании во времени между видами рода Homo не бесспорны, и если даже они верны, то не отвергают интерпретацию эволюции человека как процесса постепенного.
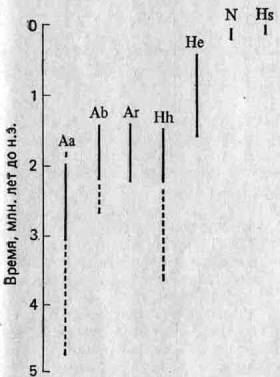
Рис. 5.7. Стратиграфические диапазоны гоминид (19). Прерывистыми линиями обозначены ископаемые остатки, предположительно отнесенные к тому или иному виду. Обозначения те же, что на рис. 5.6. N — неандерталец.
Ветвление могло просто увеличить число направлений, по которым эволюция человека протекала постепенно. Кроме того, что гораздо важнее, хотя разные таксоны гоминид резко различаются по некоторым морфологическим признакам, например по признакам черепа, количественные признаки, например размеры тела и емкость черепной коробки, изменяются почти непрерывно (рис. 5.8). Кроме того, по мнению некоторых антропологов, застой в пределах отдельных таксонов скорее кажущийся, чем реальный (2). Например, у самых ранних экземпляров Н. erectus лицевой отдел черепа более вытянутый и плоский, черепная коробка ниже, тоньше, менее прочна и емкость ее меньше, чем у более поздних Н. erectus.
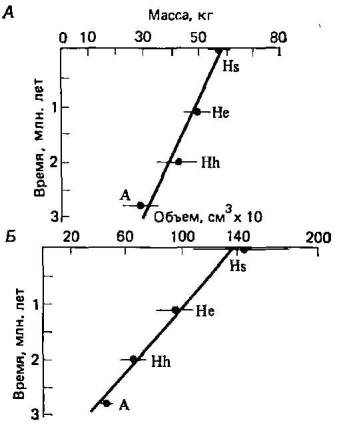
Рис. 5.8. Изменения среднего веса тела (Л) и объема черепной коробки (Б) у гоминид с течением времени (2). Обозначения те же, что на рис. 5.6.
5.8. Заключения.
Итак, остается все еще обширное поле для дискуссий между сторонниками прерывистой эволюции и традиционными неодарвинистами. Главная проблема, стоящая перед последними,— это,, вероятно, не скорость, с которой эволюционные изменения могут происходить в периоды быстрой эволюции, ибо при наличии соответствующих интенсивностей отбора быстрые изменения вполне осуществимы, а тот факт, что признаки могут оставаться неизменными на протяжении длительных периодов геологического времени. Так, например, Ланде (9) вычислил, что число элиминируемых отбором особей, необходимое для того, чтобы можно было объяснить изменения в некоторых скелетных структурах у кайнозойских млекопитающих, равно примерно 1 млн. Такое давление отбора настолько незначительно, что вполне могло возникнуть в результате совершенно случайных процессов. И тем не менее массовый дрейф генов, происходящий на протяжении миллионов лет, совершенно не входит в