Принципы эволюции
4. Признаки могут быть адаптивными и могут быть обусловлены отбором, но тем не менее различия между ними не обязательно должны иметь селективную основу. Иными словами, для решения одних и тех же проблем могут развиваться различные адаптации, то есть в адаптивном ландшафте имеются многочисленные адаптивные пики, и какой из них займет популяция, зависит от ее начального состава. Это может лежать в основе различия между индийским носорогом, имеющим один рог, и африканским носорогом, у которого два рога. Рога — приспособление для защиты от хищников, и вряд ли можно думать, что один рог — специфическое приспособление для индийских условий, а два — для африканских. Более вероятно, что изначально индийская и африканская популяции несколько различались, в частности по своим морфогенетическим системам, а поэтому под действием одних и тех же селективных сил они достигли различных адаптивных пиков (25).
Метод 2 (априорный/предсказательный подход). Этот метод используют не для объяснения корреляций между фенотипичес-кими признаками и экологической изменчивостью, а для того, чтобы предсказать, какими должны быть эти корреляции. В принципе он позволяет делать предсказания до проведения наблюдений. Подобного рода априорные эволюционные рассуждения часто бывают основаны на допущении, что естественный отбор — процесс оптимизирующий, то есть что в некотором смысле он ведет к эволюции наилучших из возможных признаков. Инженеры и экономисты, которые также стремятся избрать наилучшие решения для конкретных технических или экономических проблем, разработали специальные методы, например теорию оптимального управления, и эти методы находят также применение и в биологии (34). При использовании принципа оптимальности для решения любой проблемы должны быть выполнены следующие основные требования: 1) все возможные решения данной задачи должны быть известны; 2) каждому решению должно быть возможно приписать некоторые числа или сложные математические функции, соответствующие либо стоимости (и), либо цене (с) этого решения относительно какого-либо заранее заданного условия. Математическая задача принципа оптимальности состоит в том, чтобы среди значений v и с найти максимальное v или минимальное с.
Основное условие применимости принципа оптимальности состоит в том, чтобы прибыль и цену можно было измерить, а это зависит в свою очередь от ясного недвусмысленного определения того, какие требования предъявляются к системе. У инженеров и экономистов всегда есть заранее установленные критерии, с которыми можно сопоставлять поведение изучаемой системы. Согласно теории неодарвинизма (см. разд. 3.1), фенотипические особенности биологических систем должны быть такими, чтобы максимизировать расселение потомков (несущих данный признак), генов, а быть может, даже генных комплексов, так что прибыль и цену можно оценивать относительно этих требований. Если бы мы могли точно определять признаки в зависимости от их воздействия на выживание, время генерации и репродуктивный вклад, то было бы относительно легко выбрать те из них, которые максимизируют неодарвинистскую приспособленность. К сожалению, непосредственно вычислить эту величину обычно бывает возможно только для нескольких признаков, и приходится довольствоваться лишь косвенными допущениями. Поэтому весь метод сводится к следующему: 1) допускаем, что отбор максимизирует неодарвинистскую приспособленность (основная гипотеза); 2) переводим 1 в фенотипическую меру приспособленности (вспомогательная гипотеза); 3) используя соответствующие математические методы, находим признак, который максимизирует 2 (или минимизирует ее снижение); 4) сравниваем это предсказание с тем, что наблюдается в природе или обнаруживается в специально созданных экспериментальных условиях. В этой программе адаптационисты редко пытаются опровергнуть основную гипотезу. Они обычно исходят из допущения, что эта гипотеза более или менее верна, а затем пытаются уточнить свое понимание эволюции фенотипа, критически оценивая вспомогательные гипотезы.
Кон (7, 8), а позднее Милсум и Роберж (31) изучали адаптацию применительно к кровеносной системе позвоночных. Они хотели выяснить, какой ширине сосудов будет благоприятствовать естественный отбор. Конечно, оценить диаметр кровеносных сосудов исходя из его воздействия на выживание, скорость развития и размножения не представляется возможным, а поэтому необходима была какая-то вспомогательная гипотеза; такой гипотезой послужило допущение, что отбор должен благоприятствовать самой экономичной структуре. Оно было основано на том, что, чем меньше ресурсов будет затрачено на построение и поддержание кровеносной системы, тем больше их останется у организма для борьбы с болезнями и хищниками и для того, чтобы производить потомство. Кон и его соавторы рассматривали две оценочные функции (рис. 3.2): одна из них возрастает с уменьшением диаметра сосудов (потому что сопротивление трения потоку жидкости при этом возрастает и делает необходимым большую затрату энергии сердцем на прокачивание крови), а другая возрастает с увеличением диаметра (потому что на построение и поддержание системы больших размеров необходимо больше ресурсов). Вспомогательная гипотеза требует, чтобы отбор благоприятствовал той системе, которая обходится дешевле; именно это решение может быть получено графически (рис. 3.2) или из уравнений, определяющих оценочные функции.
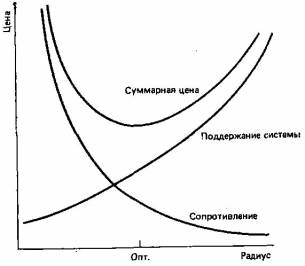
Рис. 3.2. Модель Кона, предсказывающая оптимальный радиус (Опт.) для кровеносных сосудов. Существуют две оценочные функции, одна из которых возрастает, а другая уменьшается с увеличением радиуса сосуда (см. текст). Оптимальным является тот радиус, который минимизирует сумму значений этих функций, то есть представляет собой наиболее экономичное решение.
Подставив в эти уравнения реальные числа, можно вычислить конкретные оптимальные диаметры и сравнить их с результатами наблюдений (табл. 3.2). Кон и его соавторы получили достаточно хорошее совпадение между реальными и ожидаемыми диаметрами. Следует, однако, помнить, что своей работой они не пытались опровергнуть неодарвинизм; они лишь хотели понять, что он означает применительно к развитию кровеносной системы. Данная вспомогательная гипотеза позволяет сформулировать некое онтогенетическое правило, которое может оказаться применимым и для других систем, а именно: системы органов должны быть возможно более экономичными по форме и функции.
Таблица 3.2. Предсказания Кона и результаты измерений реальных сосудов.
| Предсказания | Результаты измерений | |
| Радиус аорты, см | 0,43 | 0,5 |
| Диаметр капилляров, мкм | 2,2 | 4,0 |
Метод 2 также сопряжен с некоторыми затруднениями. Главные из них относятся к формулировке ряда допущенных решений, из которых можно было бы выбрать оптимальное. С одной стороны, мы не можем сделать этого, не прибегая к реальным наблюдениям, то есть метод 2 строится на основе метода 1, а это означает, что модели создаются в соответствии с фактическими данными, а не предсказывают их. С другой стороны, не все мыслимые решения реально осуществимы, а поэтому необходимо некоторым образом ограничить их. Иными словами, оптимизационные методы можно рассматривать как поиски на адаптивном ландшафте (см. разд. 2.3.3) самых высоких пиков, в условиях, когда доступны не все пики: некоторые пики могут соответствовать таким фенотипам, возникновение которых невозможно по морфогенетическим причинам, другие могут оказаться исключенными вследствие исходного генетического состава популяции до начала действия отбора. Возможно также, что уровень генетической изменчивости в популяции окажется недостаточным для достижения наивысшего пика. К сожалению, установить a priori эти ограничения чрезвычайно трудно, и применение метода 2 может дать о них столько же информации, сколько и о самой адаптации.
3.3. Меланизм у бабочек — подход a posteriori.
По мере развития промышленности в Великобритании энтомологи стали замечать, что у многих различных видов бабочек светлая окраска заменяется темной или черной. Особенно ярким примером этого служит березовая пяденица (Biston betularia), темная форма которой получила название carbonaria. Были обнаружены следующие факты: 1) самые ранние находки темных форм были сделаны вблизи районов с сильно развитой промышленностью; 2) самая высокая частота темных форм обнаружена вблизи промышленных центров (отсюда и название этого явления — индустриальный меланизм); 3) меланисты обычно встречаются у видов, которые активны ночью. Апостериорное эволюционное объяснение состоит в том, что светлые формы более заметны для хищников на закопченных ветвях и стволах деревьев, на которых они отдыхают днем. Существуют, конечно, и другие возможные объяснения. Прежде всего меланизм может иметь фенотипическую природу: например, он мог бы возникнуть в результате попадания в организм насекомых промышленных загрязнений. Однако в экспериментах по скрещиванию было показано, что меланизм контролируется генетически и что расщепление по этому признаку происходит так, как если бы он определялся одним доминантным аллелем. Есть и другие возможные объяснения. Так, например, темная окраска могла бы служить защитой от прямого действия загрязнения. Для дальнейшего изучения меланизма у березовой пяденицы Кеттлуэлл (21, 22) провел следующие полевые эксперименты.
1. Чтобы определить, не обладает ли форма carbonaria болы шей приспособленностью, чем типичная березовая пяденица, Кеттлуэлл выпускал меченых особей той и другой формы в промышленных и сельских районах. При повторном отлове в промышленных районах среди выловленных меченых особей было больше carbonaria, а в сельских — больше типичной формы.
2. Равное число особей carbonaria и типичной формы помещали на стволы деревьев в задымленной и незадымленной местностях и непосредственно наблюдали за тем, как их выедали хищники. Оказалось, что в сельской местности хищники уничтожили больше меланистических форм, а в промышленном районе— больше типичных особей.
3. Одна птица — пищуха — поедала без разбору обе формы. Кеттлуэлл указывает, что она кормится, перемещаясь вверх и вниз по стволам деревьев, и поэтому видит силуэт бабочки, сидящей на коре дерева, а не цвет ее крыльев.
Результаты экспериментов 2 и 3 служат особенно убедительными доводами в пользу того, что меланизм возник в ответ на давление со стороны хищников.
Приведенный здесь анализ индустриального меланизма основан на описанном выше методе 1, однако благодаря тщательно проведенным наблюдениям и экспериментам он зашел значительно дальше, чем это обычно бывает или чем это возможно. Кроме того, в этом случае удалось выявить генетическую основу наблюдаемого изменения. Подобного рода программы, основанные на методе 1, но учитывающие также экологические и генетические наблюдения, часто называют экогенетическими — подход, впервые примененный Е. Б. Фордом .(см. (16)) и Добр-Жанским (14).
3.4. Примеры априорного подхода.
3.4.1. Применение принципа оптимальности к адаптациям жизненного цикла
Большая часть рассматривавшихся до сих пор адаптации касалась либо морфологических, либо физиологических признаков. Между тем такие признаки, как характер морфогенетических процессов, скорости роста, общие размеры, продолжительность жизни и вклад в размножение, также, вероятно, подвергались естественному отбору. Все эти признаки участвуют в том, чтобы довести продукты размножения до такого состояния, в котором они могут воспроизводиться, и их называют признаками жизненного цикла или цикла развития. Со времени первой работы Лей-монта Коула (9) об эволюции жизненного цикла писали много (хорошие обзоры принадлежат Стирнсу (37, 38)).
Здесь в качестве иллюстрации мы рассмотрим количество ресурсов, затрачиваемых родительской особью на продуцирование гамет, и продолжительность пострепродуктивного периода ее жизни. То обстоятельство, что не все организмы бурно размножаются один раз в жизни, заставляет думать, что размножение сопряжено с большими затратами ресурсов. В противном случае приспособленность в неодарвинистском смысле была бы всегда максимизирована путем максимально возможного репродуктивного выхода, а следовательно, путем затраты максимального количества ресурсов на образование гамет. Принято считать, что, чем больше ресурсов данная родительская особь вкладывает в размножение, тем меньше их у нее остается для того, чтобы обеспечить защиту собственного организма от несчастных случаев, болезней и хищников, так что эти расходы можно оценивать в терминах выживаемости родительских особей. В результате с увеличением вклада в репродукцию шансы родителей на выживание в пострепродуктивный период снижаются; здесь мы используем фишеровскую меру приспособленности, то есть г (см. разд. 2.3.2), в сочетании с упрощенным вариантом принципа оптимальности, с тем чтобы исследовать, какого рода компромисс возможен между этими переменными.
Значение приспособленности г можно записать как
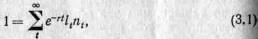
где It — выживаемость с момента рождения до времени t, a nt — число потомков, произведенных ко времени t (простой вывод этого уравнения см. у Уилсона и Боссерта (45)). В простейшем случае, когда размножение происходит один раз в год (t=1), плодовитость (п) зависит от возраста и родительские особи выживают после размножения, уравнение 3.1 принимает вид

где 1а и // — соответственно выживаемость взрослых особей и потомков, а п— число потомков на одну родительскую особь. Отсюда
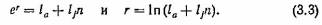
Таким образом, из уравнения 6.6 мы видим, что если построить график зависимости 1а от п, то изоклины равных г будут иметь вид прямых с наклоном, равным — l1 (рис. 3.3.).
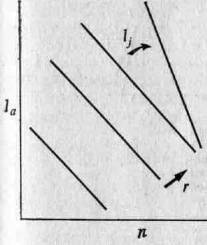
Рис. 3.3. На графике зависимости 1а от п изоклины т представляют собой прямые линии с отрицательными наклонами //. По мере увеличения выживаемости потомков наклон возрастает. В принципе приспособленность, то есть г, возрастает с увеличением la и п.
Однако вследствие компромисса между выживаемостью родительских особей и размножением не все комбинации 1а с п реально осуществимы. Можно представить себе некоторое число распределений реально