Принципы эволюции
На рис. 2.9, Д изображена большая популяция, разделенная на ряд субпопуляций, каждая из которых занимает части данного адаптивного ландшафта, несколько отличающиеся друг от друга. Такие популяции, вероятно, встречаются довольно часто. Степень отклонения каждой группы (в результате отбора или дрейфа) от среднего генетического состава популяции в целом зависит от интенсивности обмена генами (то есть миграции индивидуумов) между группами. Для того чтобы противодействовать отбору, поступление данного гена в субпопуляцию должно превышать его элиминацию отбором, а для того, чтобы противодействовать дрейфу, — превышать случайные потери этого гена. Когда такие субпопуляции более или менее изолированы, их называют демами. Демовая структура потенциально важна для эволюционных процессов, и мы обсудим этот вопрос в разд. 3.6. Генетический дрейф иногда называют эффектом Сьюэлла Райта и считают, что его действие направлено против действия отбора (рис. 2.9,Г). Однако, как это понимал Сьюэлл Райт, генетический дрейф может дать популяциям возможность покинуть локальные пики, пересечь имеющиеся в адаптивном ландшафте долины и подпасть под влияние факторов отбора, связанных с новыми пиками. Следовательно, генетический дрейф может способствовать адаптации, но может и препятствовать ей.
2.4. Выводы и резюме.
В процессе исторического развития генетических основ эволюции мы были свидетелями ряда важных переключений внимания с одних факторов на другие.
1. Сторонники Менделя уделяли главное внимание последствиям скрещивания пар особей с известной генетической конституцией. Их основное допущение заключалось в том, что признаки контролируются дискретными факторами, которые не сливаются друг с другом.
2. Холдейн и Фишер рассматривали эволюционное изменение, исходя из частот отдельных генов в популяциях.
3. Для Райта, однако, главными были популяции генов (то есть величины W, а не w), а Добржанский предложил обозначать их термином «генофонд» (см. Th. Dobzhansky, Genetics and the Origin of Species, Columbia Univ, Press, 1937).
4. Начиная с работ Вейсмана, ученые постепенно приближались к открытию физической основы наследственности. В конечном итоге это привело к переосмыслению концепций генов,, мутаций и т. п. в свете представлений о ДНК и синтезе белков.
Первая из этих позиций соответствует менделевской генетике, вторая и третья — популяционной генетике, а четвертая — молекулярной генетике. Позиции 2 — 4 составляют неодарвинизм.
Здесь уместно еще раз привести взгляды, которых придерживается большинство неодарвинистов. (Не все неодарвинисты разделяют в точности одни и те же взгляды, и различия в расстановке акцентов не раз оказывались причиной возникавших & дальнейшем разногласий.) Главные допущения неодарвинизма состоят в следующем.
1. В основе эволюции лежат генетические изменения.
2. Мутации (в их современном общем смысле) представляют собой в конечном счете источник изменчивости. Это могут быть мелкие (точковые) или крупные (хромосомные) мутации, однако мелкие мутации скорее могут привести к благоприятным изменениям, чем крупные, а поэтому они играют более важную роль в эволюции. Принципиально важное значение имеет тот факт, что эти мутации случайны, иными словами, они не направленны.
3. Центральная догма и принцип Вейсмана принимаются.
4. Эволюция осуществляется путем изменения частот генов.
5. Эти изменения могут происходить в результате мутаций, поступления генов в популяцию и оттока их из нее, случайного дрейфа и естественного отбора, причем отбору принадлежит наиболее важная роль.
6. Перечисленных принципов достаточно, для того чтобы объяснить разнообразие и адаптацию организмов на земном шаре.
Осталось еще несколько вопросов, к которым мы вернемся в дальнейших разделах. Это, во-первых, вопрос об • относительном участии генотипа и среды в формировании фенотипа (см. разд 3.2 и гл. 4). Во-вторых, кратковременные изменения генных частот в популяциях мало говорят нам о сохранении самих этих популяций в течение длительного времени. Между тем мы интуитивно ощущаем, что это последнее представляет собой по меньшей мере столь же важную меру эволюционного успеха, как и первое. Можно ли определить это долговременное сохранение с позиций неодарвинизма? И совместимо ли оно вообще с неодарвинизмом? Эти вопросы будут рассмотрены в разд. 3.6 и 5.4.
2.5. Рекомендуемая литература.
Можно назвать ряд хороших сводок по современной генетике: Гейл (7), Айала и Киджер (1), Берри (2). В этих работах используются почти исключительно коэффициенты отбора, тогда как изложение Риклефса (9) основывается На мальтузианском параметре (см. также Кук (4).) Несколько сложнее учебники Раухгардена (10) и Чарлзуорта (3), в которых рассматриваются популяции с перекрывающимися поколениями. Наиболее ясным изложением количественной генетики и, в частности, наследуемости (/i2) все еще остается книга Фальконера (6). С молекулярной генетикой можно познакомиться в книгах Уотсона (12) и Вудса (15). История генетики кратко и интересно изложена Лудовичи (8), а крайне субъективное, но тем не менее интересное описание бурного развития молекулярной генетики принадлежит Уотсону (13). Молекулярная генетика развивается так стремительно, что очень трудно уследить за всеми происходящими в ней событиями. Оригинальное изложение ее развития, дающее определенное представление об увлекательности предмета и о ряде важных его аспектов, можно найти в работе Уотсона и Туза 114).
Глава 3. АДАПТАЦИЯ.
3.1. Введение.
В гл. 2 мы определили приспособленность, исходя из относительного распространения генов в генофондах, то есть исходя из эффекта естественного отбора. Однако связь между распространением данного гена и самим геном зависит от того, как он взаимодействует со своей средой, а это взаимодействие он осуществляет не непосредственно, а через находящегося под генным контролем посредника — через фенотип. Поэтому полезно рассмотреть, почему в данных экологических условиях некоторые фенотипы способствуют передаче генов лучше, чем другие (более приспособлены), иными словами, рассмотреть причину отбора. Подобный подход носит название адаптационистской программы и сочетает в себе рассмотрение формы и функции фенотипов наряду с их экологией и эволюцией.
Со времен Дарвина такая адаптационистская программа всегда пользовалась популярностью у биологов, однако центр тяжести ее постоянно смещался. Как указывал, например, Доукинс (12, 13), дарвинисты пытались рассматривать признаки с точки зрения их полезности для выживания и размножения отдельных особей (то, что Доукинс называет подходом с позиций эгоистичного организма), тогда как после неодарвинистского переворота главное внимание стали уделять объяснению признаков с точки зрения их полезности для переноса генетических единиц (то есть генов и сцепленных групп генов). Этот новый взгляд на вещи привел к тому, что Доукинс называет подходом с позиций эгоистичного гена. При этом фенотипические признаки должно оценивать лишь с учетом того, какое влияние они могут оказывать на распространение тех генов, которые их контролируют. Наконец, признаки организма иногда оценивают в свете того, какую пользу они могут принести той группе (например, семье, популяции, виду), в которую входит данный организм. Такой подход можно назвать подходом с позиций неэгоистичного организма.
Большинство активных приверженцев адаптационизма придерживаются подхода с позиций эгоистичного организма, поскольку, по их мнению, такой подход более или менее совместим с концепцией эгоистичного гена, то есть рассматривает фенотипические признаки с точки зрения их значения для выживания и размножения организмов — носителей этих признаков, что в свою очередь должно быть связано положительной корреляцией с распространением генов, кодирующих эти фенотипические признаки. Дальнейшие объяснения этой методологии и соответствующие примеры будут приведены в разд. 3.2—3.5. Подход с позиций неэгоистичного организма рассматривается в разд. 3.6. Проблемы, в изучении которых были использованы оба подхода— с позиций эгоистичного и неэгоистичного организма,— обсуждаются в разд. 3.7; и, наконец, в разд. 3.8 мы вернемся к разбору взаимоотношений между эгоистичным геном и эгоистичным организмом.
3.2. Методология.
Существуют два различных, но, как станет очевидным, взаимозависимых пути, по которым развивалась адаптационистская программа (5).
Метод 1 (апостериорный!сравнительный подход). При этом методе изучают и сравнивают признаки у близких видов в разные периоды истории данной группы (то есть по ископаемым остаткам) или же — в современной фауне — у видов, занимающих различные экологические ниши. Затем (после такого изучения) дается объяснение обнаруженных различий в адаптивном плане. В отношении различий, коррелированных со временем, принимается допущение, что изменения в признаках следуют за изменениями экологических условий и (или) представляют собой прогрессивные адаптивные усовершенствования. Так, например, направления в эволюции лошадей (рис. 3.1) объясняют переходом их от жизни в лесах к жизни на равнинах. В процессе эволюции наблюдается: 1) увеличение общих размеров, в частности длины конечностей, которые при этом становятся и более стройными; 2) уменьшение числа пальцев до одного и разрастание «ногтя» этого оставшегося пальца с образованием копыта; 3) увеличение резцов в ширину и коренных зубов в высоту вместе с развитием сложных складок твердого цемента на их жевательной поверхности. Изменения 1 и 2 можно рассматривать как адаптации к быстрому передвижению по твердой почве, а изменение 3 — как адаптацию к питанию жесткой степной травой.
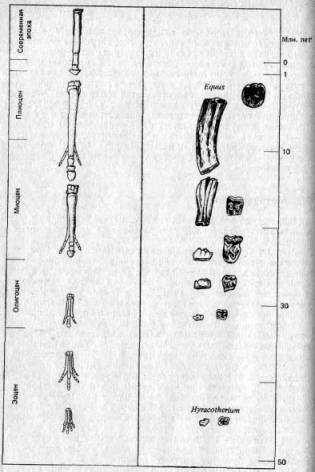
Рис. 3.1. Направления эволюции конечностей и коренных зубов у лошадей (объяснения см. в тексте).
Что касается изменений, коррелированных с пространством, то считается, что дивергенция признаков у популяций, принадлежащих к одному и тому же или к близким видам, произошла в результате различных давлений отбора, испытываемых этими популяциями в тех различных экологических условиях, в которых они находятся. Следовательно, нам важно иметь возможность точно определять различия в тех экологических условиях, под действием которых находятся организмы! Физиологическим экологам, изучающим прибрежную фауну, известно множество примеров близкородственных видов, обитающих в разных частях приливно-отливной зоны и поэтому в разной степени подверженных обсыханию в промежутке между двумя приливами и воздействию волн. Морфологические, физиологические и поведенческие различия между видами, обитающими в разных частях приливно-отливной зоны, во многих случаях можно объяснить как адаптации к этим экологическим различиям; один из таких примеров приведен в табл. 3.1. В этом случае большую устойчивость к высоким температурам и иссушающим условиям у Patella vulgata, обитающей в верхней части этой зоны, чем у P. aspera, обитающей в ее нижней части, можно рассматривать как приспособление к более частому и более длительному пребыванию в воздушной среде в промежутке между приливами. Кроме того, более низкую скорость потери воды в воздушной среде у P. vulgata по сравнению с P. aspera можно отнести за счет различий в форме раковины у этих двух видов (у P. vulgata поверхность, обсыхающая в воздушной среде, меньше); таким образом, морфологические различия поддаются объяснению с позиций адаптационизма.
Таблица 3.1. Некоторые аспекты физиологической экологии морских видов блюдечка (по данным Девиса (10,11))
| Признак | patella vulgata | Patella aspera |
| Зона обитания Выживаемость при t<30°C Скорость потери воды тканями Способность противостоять потере воды | Верхняя Высокая Низкая Высокая | Нижняя Низкая Высокая Низкая |
| Форма раковины |

|

|
В связи с методом 1 возникает ряд проблем.
1. Не во всех случаях можно твердо установить, являются ли наблюдаемые различия генотипическими или лишь фенотипиче-скими. Так, например, различия в форме раковины, приведенные в табл. 3.1, можно отнести за счет прямого воздействия волн, то есть в этом случае, если бы оба вида развивались в одних и тех же условиях, никаких различий между ними не было бы. Подобного рода негенетические различия (называемые иногда фенотипической пластичностью) в данном контексте интереса не представляют. Отметим, однако, что фенотипическая пластичность может быть детерминирована генетически, а может быть адаптивной. Примеры исследований, в которых был проведен более точный генетический анализ, будут даны в разд. 3.3.
2. Наличие корреляции само по себе нельзя считать доказательством существования причинно-следственной зависимости. Возможно, что в возникновении различий участвуют какие-то скрытые переменные, играющие более важную роль. Возможна также, что различия в форме раковины у блюдечка обусловлены различиями в выеданий хищниками, а это последнее регулируется воздействием волн или обсыханием в промежутке между приливами. В таком случае различия в признаках следовало бы объяснять в свете того, в какой степени раковины определенной формы обеспечивают защиту от хищников, а не от обсыхания или воздействия волн.
3. Не все различия обязательно должны быть адаптивными. Некоторые из них могли возникнуть случайно (дрейф, эффект основателя). Другие могли возникнуть не в результате прямого .отбора, а как «побочные эффекты» признаков, обладающих селективным преимуществом, например в случаях плейотропии (один ген имеет несколько фенотипических эффектов, причем не все они должны быть адаптивными) или аллометрии (см. разд. 4.2). Одним из таких признаков может быть старение. Его нельзя назвать явно адаптивным, поскольку оно, по определению, снижает жизнеспособность и повышает уязвимость затронутых им организмов. Старение может быть адаптивным применительно к группе в целом, например, в том смысле, что оно освобождает место для новых мутаций, связанных с молодыми особями, которые замещают старых особей и, следовательно, стимулируют эволюцию и долговременное выживание группы, однако такую точку зрения с позиций группового отбора разделить трудно (см. разд. 3.6).
В отличие