Принципы эволюции
Скорость и характер изменения генных частот от поколения к поколению зависят: 1) от степени доминантности или рецессивности данного аллеля (которая изменяет соотношение значений: W, то есть при доминировании waa= WAa =/= Waa, а в отсутствие доминирования или при сверхдоминировании Waa =/= waa =/= Wqq).
2) от того, какому аллелю благоприятствует отбор (например как уже говорилось, вредный рецессивный аллель может быть скрыт в гетерозиготе, что замедлит его элиминацию; или же благоприятный рецессивный аллель в гетерозиготном состояние будет элиминироваться отбором, что задержит его распространение в популяции); 3) от интенсивности отбора. Использование этих величин приводит к тому, что представленные выше уравнения для изменения частот аллелей приобретают другой вид; вывод всех этих уравнений можно найти в большинстве учебников по популяционной генетике. Однако решения этих уравнений нельзя найти аналитически (то есть исходя из алгебраически уравнений); их можно получить только подстановкой конкретных вещественных чисел вместо q и W (то есть моделированием). Результаты, полученные на одной такой модели, действительно построенной Холдейном, приведены в табл. 2.4. Они относятся к случаю, в котором доминантный аллель обладает преимуществом при относительно низком давлении отбора. Это показывает, что изменение частоты генов зависит от их исходной частоты. При очень низких частотах отбор действует медленнее, чем при промежуточных, а по мере приближения данного аллеля к закреплению (то есть вытеснению другого аллеля) скорость изменения его частоты заметно снижается. Это происходит потому, что менее благоприятный аллель сохраняется в гетерозиготах и его трудно вытеснить полностью. Рецессивному аллелю, обладающему преимуществом, закрепиться при низких частотах еще труднее, поскольку, находясь в гетерозиготном состоянии, он элиминируется из популяции отбором, направленным против менее благоприятного доминантного аллеля, однако закрепление такого рецессивного аллеля происходит быстрее. Ряд моделей, в которых 5> или равно 0,001 и в которых рассматривались разные соотношения между Wгомоз. и Wгетероз., показывает, что сдвиги в генных частотах благоприятных аллелей от 0,1% до более чем 50% особей данной популяции происходят за менее чем 104 поколений. К этому числу мы еще вернемся.
Таблица 2.4. Число поколений, необходимых для того, чтобы произошло да! ное изменение в частоте доминантного аллеля, если доминант оставляют 1000 потомков на 999 потомков рецессивов, т. е Waa = 0,999 или Saa = 0,01
| Р Число поколений | 0,001 до 1% 6920 | 1 до 50% 4819 | 50 до 99% 11664 | 99 до 99,999' 309780 |
Если под действием отбора частота благоприятного аллел возрастает, то отбор должен также повышать среднюю приспособленность популяции в целом (то есть W). Кроме того, поскольку изменение частоты происходит медленнее всего, когда частота одного аллеля очень низка или высока, изменение это, вероятно, будет наибольшим при промежуточных частотах, то есть когда значения частот аллелей наиболее близки друг к другу. Это интуитивная формулировка принципа, который был строго доказан Фишером и считался основной чертой эволюции путем естественного отбора. Его часто называют основной теоремой естественного отбора Фишера, которая формулируется следующим образом: «скорость повышения приспособленности любого организма в любое время равна его генетической дисперсии по приспособленности в это время». Формулировка Фишера неудачна, так как под «организмом» он несомненно имел в виду популяцию. Генетическая дисперсия по W тем больше, чем ближе частоты аллелей и, следовательно, разброс значений W.
Фишер называл свою теорему основной, потому что она строго определяла зависимость между двумя краеугольными камнями дарвиновской теории — изменчивостью внутри популяций и скоростями эволюционного изменения. Однако эта зависимость оказалась не столь несомненной, как полагал Фишер. Так, например, если приспособленность сама зависит от генетической дисперсии (что представляется правдоподобным в некоторых ситуациях; см. разд. 3.5), то скорость изменения приспособленности не должна быть связана с этой дисперсией простой зависимостью. Кроме того, Фишер вывел свою зависимость для случая одного локуса с двумя аллелями; если же рассматривать примеры с участием более чем одного локуса, то зависимость между этими двумя переменными может оказаться значительно сложнее (см. разд. 2.3.3). Есть также и другие потенциальные неясности и проблемы (11). Таким образом, вытекающее из основной теоремы Фишера следствие, что действие естественного отбора всегда направлено на максимизацию приспособленности, нельзя принимать безоговорочно, и из этого в свою очередь вытекает ряд следствий, которые необходимо учитывать при изучении адаптации (см. гл. 3). С основной теоремой Фишера связана еще одна концепция — концепция генетического груза (различие между максимальной потенциальной приспособленностью популяции и W). Это различие создается любым процессом, порождающим генетическую изменчивость, в том числе мутационным процессом (мутационный груз) и процессом генетической перестройки, обусловленной расщеплением (сегрегационный груз). Как и основная теорема Фишера, а возможно, именно из-за нее, концепция генетического груза небесспорна и вызывает разногласия, а поэтому в дальнейшем мы о ней говорить не будем.
Вернемся теперь к вопросам, поставленным в начале этого раздела: насколько отбор важнее, чем повторные мутации? Обратите внимание на то, что для повышения частоты данного аллеля в результате мутирования при отсутствии отбора необходимо, чтобы данная мутация время от времени возникала вновь, то есть повторялась. Рассмотрим мутирование в одном направлении от Л к а, происходящее с частотой и. Вообще обычно происходит также обратное мутирование от а к А, уравновешивающее эффект первого процесса. Однако мы пренебрежем обратными мутациями и используем наиболее благоприятную систему для изменения частоты аллеля путем мутаций. Согласно оценке Холдейна, сделанной на основе наблюдений по дрозофиле и примуле, частота мутаций равна примерно 10~6 на один ген; эта оценка была подтверждена в дальнейшем исследованиями, проводившимися на других организмах. Холдейн вычислил потенциальное воздействие мутаций следующим образом: частота аллеля А в первом поколении потомков (pi) равна (1—и)р<> (где ро — исходная частота Л), а во втором поколении потомков (р2) она равна (1 — и)р! или (1 — и)2р0 и так далее. Записав эти формулы в общем виде, pt=( — и)*р0, и разделив правую и левую части на ро, а затем прологарифмировав, получим
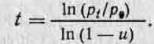
Теперь мы можем использовать это уравнение для выяснения того, сколько потребуется поколений при частоте мутаций 1:106, чтобы сдвинуть частоту аллеля а (то есть д) с 0,1 до 50%. Если р=—д, то, следовательно, частота аллеля А должна при этом измениться от 99,9 до 50%; поэтому
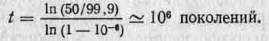
Вспомним, что соответствующее значение для действия слабого отбора составляло менее 104 поколений. Таким образом, даже при самых благоприятных допущениях для мутационного процесса и неблагоприятных для естественного отбора последний оказывается гораздо более мощным (почти на два порядка) фактором изменения, чем первый.
Конечно, при этом все еще остается открытым вопрос относительно важности крупных мутаций по сравнению с мелкими. Фишер, как и Дарвин (см. разд. 1.5), утверждал, что вероятность ценности любой мутации обратно пропорциональна ее величине, поскольку вряд ли можно ожидать, что значительное резкое изменение окажется совместимым с другими признаками, с которыми оно должно образовать единое целое. К этому вопросу мы вернемся в гл. 5.
2.3.3. Сьюэлл Райт, адаптивные ландшафты и случай.
Приведенные выше анализы были основаны на рассмотрении пар аллелей, находящихся в одном и том же локусе. Однако большая часть фенотипических признаков контролируется совокупностями генов с участием многих аллелей и локусов. Эти гены могут быть в разной степени сцеплены друг с другом; кроме того, между ними могут происходить различные взаимодействия (см. разд. 2.1.2). Следовательно, приспособленность определенных аллелей в одном локусе зависит от аллелей, лежащих в дру* гих локусах, и, в сущности, на нее оказывает влияние вся генетическая среда, в которой они находятся. Быть может, группы сцепления, целые хромосомы или даже геномы представляют собой более значимые единицы отбора, чем отдельные гены (см. разд. 3.8). К сожалению, генетика таких полигенных систем чрезвычайно сложна, а поэтому мы не можем охватить ее в такой мере, как случай двух аллелей, лежащих в одном локусе. Мы исходим из допущения, что основные принципы остаются теми же, даже если существуют различия в деталях. Однако здесь возможны серьезные исключения.
Другой основатель неодарвинизма, Сьюэлл Райт (Sewall Wright), разработал концептуальную систему, позволяющую рассмотреть взаимодействие между генами и их влияние на приспособленность (см. Wright, 1931, Genetics, 16, 99—159). Она получила название адаптивного ландшафта или пространства приспособленности. В этой системе каждая из осей я-мерного пространства определяет частоту каждого гена в данной попу-ляции,_причем последняя ось определяет среднюю приспособленность W, так что каждое сочетание генов определяет некую частную приспособленность. Так, в простейшей из возможных трехмерной модели две оси соответствуют частоте двух аллелей в каждом из двух локусов, а пространство между этими осями — всем возможным сочетаниям этих генов. Третья ось соответствует значениям W для каждого сочетания. Итак, мы имеем трехмерный ландшафт (более сложные ситуации порождают п-мер-ный ландшафт, с которым столь же трудно иметь дело, как и просто представить его себе). Пример адаптивного ландшафта изображен на рис. 2.8. В этой модели наиболее приспособленная популяция находится на вершине «холмов», а действие отбора направлено на то, чтобы заставить популяции подниматься на вершины холмов и закрепляться на них. Не все адаптивные пики будут или должны быть заняты, поскольку число потенциально возможных сочетаний аллелей у одного вида больше числа самих видов. В связи с этим многие пики ни разу не будут «опробованы» и некоторые из них будут выше чем другие. На какой пик поднимутся популяции, зависит от близости популяций к этим пикам и, следовательно, от исходных генетических условий до начала отбора. В этом теория Райта существенно отличается от модели «два аллеля — один локус», которая предсказывает, что W всегда будет максимальным (то есть популяции должны подниматься только на самые высокие пики), а из того обстоятельства, что это не есть непременное условие, вытекает ряд следствий, имеющих значение для вопросов, относящихся к адаптациям организмов, которые мы рассмотрим в гл. 3.
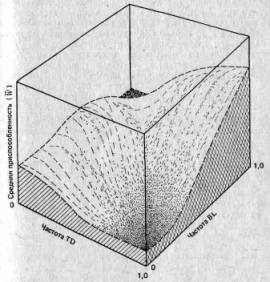
Рис. 2.8. Адаптивный ландшафт при различных частотах двух хромосомных инверсий у одного из представителей прямокрылых. BL — инверсия Blundell; TD —инверсия Tidbinbilla. (Shorrocks В., The Genesis of Diversity, Hodder a. Stoughton, London, 1978, по данным Lewontin R. C., White M. J. D., Evolution, 1960, 13, 561—564.)
На рис. 2.9 адаптивные ландшафты использованы для того, чтобы представить в качественном аспекте некоторые возможные эволюционные ситуации. (Следует помнить, что мы рассматриваем эти ландшафты сверху, то есть видим их контуры.) На рис. 2.9, А показано, чего следует ожидать в случае ослабления действия отбора или усиления мутационного процесса: область, занимаемая некой популяцией, распространяется по склонам ее адаптивного пика, и если это происходит достаточно интенсивно, то вид, к которому она принадлежит, будет вынужден занять еще один пик. На рис. 2.9, Б изображены результаты усиления отбора; в этом случае популяция оказывается сосредоточенной на высшем уровне своего адаптивного пика. Рис. 2.9, В иллюстрирует результаты изменений в среде; в этом случае рельеф ландшафта изменяется, так что адаптивный пик может «рухнуть» под тяжестью популяции, которая таким образом окажется в «долине». Затем под действием отбора популяция начнет подниматься на какой-либо близлежащий пик.
Как показывают рис. 2.9, Л и Б, для того чтобы популяция оставалась на занятом ею пике, необходим непрерывный отбор; такой отбор получил название стабилизирующего отбора: в результате, непрерывного отбора против мутантов популяция сохраняет стабильность в отношении как морфологических, так и физиологических признаков. Процесс В, хотя в его основе лежат те же механизмы, приводит к другим результатам: под его воздействием популяция приобретает новое адаптивное сочетание признаков. Такой отбор получил название направленного отбора.
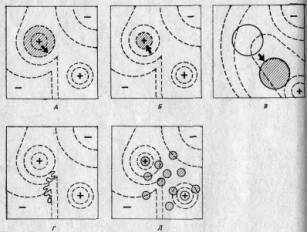
Рис. 2.9. Несколько адаптивных ландшафтов — вид сверху. А. Ослабление отбора или усиление мутационного процесса. Б. Стабилизирующий отбор. В. Направленный отбор. Г. Случайный дрейф-Д. Популяция, разделившаяся на демы. (Wadd-ington С. Н., An Introduction to Modern Genetics, George Alien a. Unvin Ltd, London, 1939.)
На рис. 2.9, Г представлена небольшая популяция. Здесь случайные события могут вызвать сдвиг в сторону от адаптивного пика, несмотря на отбор, и это та возможность, которую Сьюэлл Райт сформулировал вполне определенно. В принципе каждый индивидуум может случайно стать жертвой несчастного случая или