Биофизика
Kristallis on aatomid seotud valents-sidemetega, moodustades seega nagu hiiglaslikke molekule. Sidemed vхivad olla kovalentsed vхi ioon-sidemed, nii nagu molekulidegi puhul. Tььpiline ioonkristalli nдide on keedusool, aga ka teised leeleismetallide soolad (kuupvхre). Ьhesugustest aatomitest moodustuvad kristallid kovalentsete sidemete abil. Nдiteks toome teemanti, milles sьsiniku sp4 hьbridiseerunud orbitaalid on seostunud naabersьsiniku orbitaalidega.
Kristallilised ained on elastsed. See tдhendab, et kui neile rakendada jхudu, siis aatomid veidi nihkuvad oma tavalistelt, stabiilsetelt asukohtadelt, kuid pььavad siiski stabiilsesse seisundisse tagasi pццrduda. Makroskoopiliselt vдljendub see keha (nдiteks metallvedru) paindumises. Paindumisel vedru ьks pool surutakse kokku, teine aga venitatakse vдlja. Deformatsiooni suurus (nihke suurus) on vхrdeline rakendatava jхuga ja vastupidi, vedru poolt avaldatav jхud on vхrdeline kokkusurumise (venituse) suurusega. Kui deformatsioon ьletab teatava piirsuuruse, siis toimuvad kristallide tasapindade omavahelised nihked ja aatomid ei naase enam endistesse asukohtadesse, vaid moodustavad sidemed teiste naabritega. Niisugune deformatsioon on jддv ehk plastiline deformatsioon. Mхned metallid, nagu seatina, on vдhe-elastsed ja alluvad kergesti plastilisele deformatsioonile, teised, nagu teras, on vдga elastsed ja vхivad plastiliselt ьldse mitte deformeeruda, ennem murdudes.
Aatomite soojusliikumine on tahkistes ikka sellesama energiaga nagu gaasides ja vedelikes, 1/2RT vabadusastme kohta. Vabadusastmete arv on aga kristallilises kehas ьsna keeruliselt mддratav suurus ja seetхttu on tahkiste mool-soojusmahtuvus (soojushulk, mis kulub ьhe mooli aine temperatuuri tхstmiseks ьhe kraadi vхrra) raskesti ennustatav. Kindel on, et peaaegu ainuke liikumisvorm on vхnkumine. Kхik aatomid vхnguvad, kord lдhenedes kord kaugenedes, mingi keskmise kauguse ьmber. Temperatuuri tхustes vхnke-energia, seega vхnke-amplituud, suureneb. Amplituud saab aga suureneda pхhiliselt sel viisil, et maksimaalne kaugus suureneb, samal ajal kui minimaalne kaugus palju ei vдhene. See tдhendab, et aatomitevaheline keskmine kaugus suureneb. Makroskoopiliselt vдljendub selles tahkiste soojuspaisumine: temperatuuri tхustes tahke keha mххdud suurenevad. Soojuspaisumine on suhteliselt vдike, protsendi murdosa kraadi kohta, kuid muutub oluliseks kui temperatuur tхuseb palju. Nдiteks, klaasnхud vхivad puruneda, kui neid kuumutada ebaьhtlaselt, nii et mхni koht paisub rohkem ja mхni vдhem.
Tahkumine ja sulamine
Vedeliku tahkumine tдhendab aatomite (molekulide) vaheliste sidemet tugevnemist sedavхrd, et aatomite asukohad ьksteise suhtes fikseeruvad. Eriti selge on see krsistallstruktuuri moodustumisel, kus aatomid (molekulid) asuvad kindlatele kaugustele ja kindlates suundades. Kristalli moodustumisel tekivad uued sidemed, mis vedelikus ei olnud aktiivsed, millel on kindel pikkus ja suund. Nende sidemete moodustumisel aatomid ьldiselt veelgi lдhenevad teineteisele ja vabaneb sidemete moodustumise energia (aatomite lдhenemisel vabaneb tхmbejхudude potentsiaalne energia). Seega, tavaliselt on tahkes olekus aine ruumala vдiksem kui vedelas ja tahkumisel vabaneb teatud hulk energiat, sarnaselt, nagu energiat vabanes auru (gaasi) kondenseerumisel vedelikuks. Tahkise sulamisel aga vastupidi, neeldub energiat, et lхhkuda kristalli-sidemeid. Niisuguse tahkumis/sulamissoojuse olemasolu on hдsti nдhtav tahkete kehade soojendamisel kindla vхimsusega, nдiteks kьttes neid kindla voolutugevuse ja pingega elektrienergia abil (vхimsus = pinge x voolutugevus). Tahke olekus sojeneb keha mingi kiirusega, mis iseloomustab keha soojusmahtuvust, seega molekulide vabadusastmete arvu tahkes olekus. Sulamistemperatuuri saabudes temperatuuri edasine tхus lakkab ja sama temperatuuri juures hakkab suurenema vedeliku hulk ja vдhenema tahkise hulk. Sulamistemperatuuril kogu juurdeantud soojusenergia kulub kristalli-sidemete lхhkumiseks, keha temperatuur ei tхuse. Niisugune konstantsel temperatuuril sulamine on iseloomulik just kristallilistele, tхelistele tahkistele. Amorfsed tahkised, mis tegelikult on vдga viskoossed vedelikud, pehmenevad ja muutuvad voolavaks aeglaselt ьle laia temperatuurivahemiku, kusjuures ekstra sulamis-soojust on nende puhul peaaegu vхimatu mдrgata: temperatuur tхuseb ьhtlase kiirusega kui juurdeantav vхimsus on konstantne.
Sulamissoojust saabki mдarata soojushulga jдrgi, mis tuleb konstantsel temperatuuril lisada, et kogu tahkis sulatada. Jдд sulamissoojus on 80 kcal kg-1 (1.44 kcal mol-1 = 6.02 kJ mol-1), mis on tunduvalt vдhem kui vee aurumissoojus (550 kcal kg-1 = 9.9 kcal mol-1 = 41.4 kJ mol-1). Jдд sulamissoojus on tahkiste hulgas ьks suuremaid, nдiteks elavhхbedal on see ainult 2.75 kcal kg-1. Isegi arvestades, et elavhхbeda aatomkaal on 80, tuleb tema mool-sulamissoojuseks 220 cal mol-1 , mis on siiski 6.5 korda vдiksem kui veel. See vahe on pхhjustatud suhteliselt tugevatest sidemetest, mis jддkristallis molekule koos hoiavad.
Peale suhteliselt suure sulamissoojuse on veel veel teisigi omapдrasid. Enamik vedelikke rхhu suurenedes tahkestuvad, eriti kui temperatuur on tahketumistemperatuuri lдhedal. Jдд aga vastupidi, sulab rхhu suurenedes. See tuleb anomaalsest ruumalamuutusest tahkestumisel: nimelt vee ruumala tahkestudes suureneb, vastupidiselt enamusele ainetele (niisamasugused erandid on veel vismut ja antimon. Null kraadi juures on jдд ruumala umbes 9% suurem kui vee ruumala. See pхhjustabki, et rхhu suurenedes kьlmumistдpp langeb umbes 1° 130 atm kohta. Uisutaldade all vхib rхhk ulatuda kuni 80 kG/(0.2 cm x 10 cm)=40 kG/cm-2. Null kraadi lдhedal aitab see jддd sulatada ja muudab sхidu libedamaks, lisaks hххrdumisel tekkivale soojusele, mis ka jддd sulatab.
Sulamistemperatuur sхltub ka kristallvхre puhtusest. Lisandid langetavad sulamistemperatuuri, seetхttu on metallide sulamite sulamistemperatuur tavaliselt madalam kui puhastel komponentidel. Nдiteks seatina ja inglistina segu, mida kasutatakse jootmisel, sulab palju madalamal temperatuuril kui komponendid eraldi vхetuna.
Vee omapдrad
Kuna vesi/jдд on bioloogiliselt tдhtsaim keskkond, peatume sellel eraldi. Nagu цeldud, on jдд sulamissoojus tunduvalt suurem kui nдiteks metallidel, mis nдitab kristallsideme suhtelist tugevust. Teiseks, jддkristall on suurem kui sama mass vett, mis nдitab, et jддd moodustavad sidemed on pikemad kui vett koos hoidvad sidemed. Vahe pole kьll suur, kuupjuur 1.09 = 1.03 ehk kolm protsenti, kuid bioloogiliselt on see absoluutselt oluline. Kui jдд oleks vest raskem ja vajuks pхhja, kьlmuksid veekogud pхhjani ja talvine vee-elu oleks vхimatu vхi vдhemalt nхuaks veelgi radikaalsemaid kohastumisi.
Teame, et vees hoiavad molekule lдhestikku Van der Waalsi orientatsioonijхud, mis pхhinevad vee molekulide polaarsusel. Ilmselt moodustuvad jддs uued sidemed, mis hoiavad molekule veelgi kхvemini koos, kuid seejuures tхukavad nad omavahel kaugemale kui nad on vees. Ilmselt peavad niisugused sidemed olema valents-iseloomuga, sest neil sidemetel on nii kindel suund kui ka kindel pikkus. Need ongi meile juba tuntud vesiniksidemed, ehk doonor-aktseptorsidemed, mis moodustuvad vee hapniku vaba elektronpaari abil mхne teise molekuli vesinikuaatomi tьhja orbitaaliga, millelt elektron on ajutiselt lahkunud hapniku elektronegatiivsuse tхttu. Kokku vхib ьks vee molekul olla seotud teistega kuni nelja vesiniksideme kaudu. Kaks nendest moodustavad tema enese hapniku kaks elektronpaari (hьbridiseerunud 2s- ja 2p-paarid), kaks aga on doneerinud teiste molekulide hapnikud esimese molekuli vesinikele. Huvitav on seejuures see, et kхik vesiniksidemed ei ole ьhepikkused, vaid sхltuvad suunast kristallvхres (2.76 ja 1.77 A, sхltuvalt suunast). Niisugused mitmekordsed sidemed kхigi molekulide vahel hoiavadki jдд kristallstruktuuri.
Jдд sulamisel vesiniksidemed katkevad, selleks vajalik energia ongi sulamissoojus. Ometi ei katke 0°C juures kohe kхik vesiniksidemeid vaid vees sдilivad veel suhteliselt suured, mхne kuni mхnekьmne molekuli suurused klasterid (mikrokristallid). Samal ajal ei ole need klasterid permanentsed vaid pidevalt ьmberorganiseeruvad, ьhtede sidemete katkedes ja teiste tekkides. Nende jдд-sarnaste klasterite olemasolu tхttu ei ole vee ruumala minimaalne 0° juures, vaid temperatuuri tхustes kahaneb, sest klasterite arv ja ruumala vдhenevad. Ruumala saavutab miinimumi (tihedus maksimumi) 4°C juures. Sel temperatuuril ei ole klasterid mitte tдielikult kadunud, vaid on saabunud tasakaal kahe protsessi vahel, millest esimene on ruumala vдhenemine vesiniksidemete arvu vдhenemise tхttu, teine aga ruumala suurenemine molekulide vхnkeliikumise amplituudi suurenemise tхttu. Kхrgematel temperatuuridel kui 4°C on ruumala suurenemine ьlekaalus, kuidi vesiniksidemeid sдilib kuni keemistemperatuurini.
Isolaatorid ja elektrijuhid.
Osa tahkeid aineid ei juhi elektrit. See tдhendab, et elektronid on aatomitega (molekulidega) seotud ja ei ole vхimelised ьhelt aatomilt teisele liikuma. See kehtib ka kristallilise struktuuriga isolaatorite kohta, nagu nдiteks teemant.
Metallides on aatomid moodustanud kristallstruktuuri tavaliselt koordinatsioonisidemete abil, samal ajal kui viimase kihi valentselektronid on selleks kasutamata. Need elektronid vхivad ema-aatomist lahkuda ja moodustada kristallvхres ьhise elektronpilve, nn. elektrongaasi. Elektrongaasi olemasolu nдiteks suurendab metallide soojusmahtuvust (lisaenergia 3/2RT kulub elektrongaasi soojendamiseks). Tдhtsam aga on, et elektrongaas pхhjustab metallide kьllaltki hea elektrijuhtivuse. Vastasmхju elektronide ja kristallvхre vahel pхhjustab aga elektritakistuse olemasolu. Vдga madalatel temperatuuridel (absoluutse nulli lдhedal) ulatub iga elektroni lainefunktsioon lдbi kogu metalli ruumala ja vastasmхju kristallvхrega kaob. Niisugune seisund on ьlijuhtivus. Elektrisignaal levib lдbi metalljuhtme valguse kiirusega, nii kiiresti nagu ьhest otsast juurdetulnud elektronide elektrivдli levib. Samal ajal ei liigu elektronid ise mitte nii kiiresti. Nдiteks voolutugevusel ьks amper liigub lдbi juhtme laeng ьks kulon sekundis. Ьks kulon on 96500 korda vдiksem kui Avogadro arv, seega liigub lдbi juhtme ristlхike sekundis 1/96500 mooli elektrone. Kui vaskjuhtme diameeter on 2 mm, siis ьks mool vaske (63.5g) moodustab juhtme pikkuse 254 cm. Teades, et sekundis lдbib juhet 1/96500 mooli elektrone, leiame, et need liiguvad edasi pikkuse 254/96500 = 0.0026 cm = 0.026 mm vхrra sekundis.
BIOENRGEETIKA ALUSED
Rakkude energiaallikaks on elektronide liikumine molekulidelt, millel orbitaalid on kхrgema energiaga (tuumadest kaugemal) molekulidele, millel orbitaalid on madalama energiaga (tuumadele lдhemal). Elektroni ьlekandereaktsioone nimetatakse redoks-reaktsioonideks ja need on organismi primaarseks energia-allikaks. Redoks-reaktsioonides vabanev energia muutub osaliselt soojuseks, osaliselt aga salvestatakse teises bioloogilises energiakandjas, ATPs.
Adenosiin-trifosfaadi (ATP) molekulis on kolm ortofosfaadirьhma jдrjestikku ьhendatud hapniku molekuli kaudu. Dissotsieerunud OH rьhmad ja reastikku paigutud hapniku aatomid moodustavad rea ligistikku asetsevaid negatiivseid laenguid, mis tхukuvad, kuid ei saa kaugeneda hapniku-sideme tхttu. ATP molekul on energeetiliselt sarnane vedru-pьssiga, mille vedru on kokku surutud (negatiivsed laengud ligistikku surutud) ja siis triklisse kinni pandud (O-sillaga seotud). Tarvitseb vaid trikkel pддsta (O-sild hьdrolььsida), kui pьssikuul (kolmas fosfaatrьhm) lendab suure kiirusega eemale. Selle nдite alusel on kerge mхista, et ATP energia aluseks on kokkusurutud tхukejхud, samal ajal kui redoks energia aluseks on lahkutхmmatud tхmbejхud. Redoks-energia on aga primaarne ja ATP-energia genereeritakse redoks-energia arvel. Seda ei tehta mitte otse, sest elektronid ei saa ATP sьnteesi ensььmi kдivitada, vaid vahepealse energiakandja, prootonite (vesinik-ioonide) abiga. Redoks-energia vabanedes transformeeritakse osa sellest prootonite energiaks, mille abiga lхpuks sьnteesitakse ATP.
Prootonite energia seisneb selles, et nende kontsentratsioon ьhel pool biomembraani on suurem kui teisel pool. Kuna biomembraan on lipiidne kasik-kiht, mis ei luba ioone lдbi liikuda, siis on vхimalik prootonite kontsentratsiooni suurendada ьhel pool membraani ja vдhendada seda teisel pool membraani. Vastavad valgukompleksid, mis tццtavad prootonpumpadena kui neid lдbib redoks-reaktsiooni elektronvoog, on tuntud nii kloroplastides kui mitokondrites. Tulemusena kogunevad prootonid ьhele poole membraani tunduvalt suurema kontsentratsioonis kui teisele poole. Kloroplastides pumbatakse prootonid tьlakoidi (membraanist kotikesetaolise moodustise) sisemusse, mitokondrites aga seest vдlja, tsьtoplasmat ja mitokondrit eraldavate kahekordsete membraanide vahele.
Elektrivдlja energia membraanil
Kui prootonid liiguvad lдbi membraani, siis tekib membraanil otsekohe elektripotentsiaalide vahe, potentsiaal on positiivsem sealpool, kus prootoneid on rohkem. Mitokondri membraanil vхib potentsiaalide vahe ulatuda kuni 0.15 V. Juhul, kui membraanis on kanalid, mille kaudu prootonid saavad tagasi kiikuda, siis vabaneb energiat, nagu elektrivoolu puhul ikka. Tuletame meelde elektri pхhisuurused ja seosed.
Elektrilaengu ьhikuks on Kulon (lьhend C, prantsuse teadlase nimest Coulomb), mis vхrdub ??? prootoni (vхi elektroni) laenguga.
Voolutugevus on suurus, mida mххdetakse elektrijuhet ajaьhikus lдbinud laenguьhikute arvuga. Voolutugevuse ьhikuks on Amper (lьhend A, prantsuse teadlase nimest Ampere). Voolutugevus on ьks A, kui juhet lдbib ьks C s-1. Tegelikult kulon defineeritaksegi voolutugevuse kaudu. Kui kahte ьhe meetri kaugusel asuvat paralleelset juhet lдbib vool 1 A, siis mхjub nende vahel magnetjхud 1 N.
Elektrivдlja kahe punkti potentsiaalide vahet (rahvakeeles “pinget”) mххdetakse tццga, mida tuleb teha, et ьhikulist laengut viia ьhest vдlja punktist teise. Tццd tehakse siin elektrivдlja jхu vastu.
Potentsiaalide vahe ьhik on Volt (lьhend V, itaalia teadlase nimest Volta). Elektrivдlja kahe punkti potentsiaalide vahe on ьks V, kui laengu 1 C viimisel ьhest punktist teise tehakse tццd 1 J. Nдiteks meie elektrivхrgus on kahe juhtme potentsiaalide vahe 220 V, galvaani elemendis on see 1.5V, auto seatina-akus 2V.
Nendest definitsioonidest on selge, et laengu ьks C liikumisel lдbi mitokondri membraani tehakse tццd 0.15 J, kui potentsiaalide vahe ьhel ja teisel pool membraani (lьhidalt ka ‘membraanpotentsiaal’) on 0.15 V.
Laengu ьhik C tuletati elektrivoolu magnetjхu kaudu, sidudes selle mehaanikas defineeritud jхu ьhikuga. Sellest tulenevalt osutus tдiesti juhuslikult, et ьhes Kulonis on ???? prootonit (vхi elektroni). Keemias aga kasutatakse molekulide hulga mххtmiseks suurust mool, mis sisaldab Avogadro arvu (Na = 6.02 1023 ) molekuli. Neid arve vхrreldes leiame, et ьks mool prootoneid kannab laengut 96500 kulonit. Seega, kui ьks mool prootoneid lдbib elektrivдlja potentsiaalide vahe 1 V, siis tehakse tццd 96500 J mol-1 = 96.5 kJ mol-1. Seda arvu nimetatakse Faraday arvuks (lьhend F, inglise teadlase nimest). Membraanpotentsiaalide vahe puhul 0.15 V on vastav tцц 14.5 kJ mol-1 . Niiviisi arvutamegi membraanpotentsiaali energiat (tццd) membraani lдbivate prootonite mooli kohta:
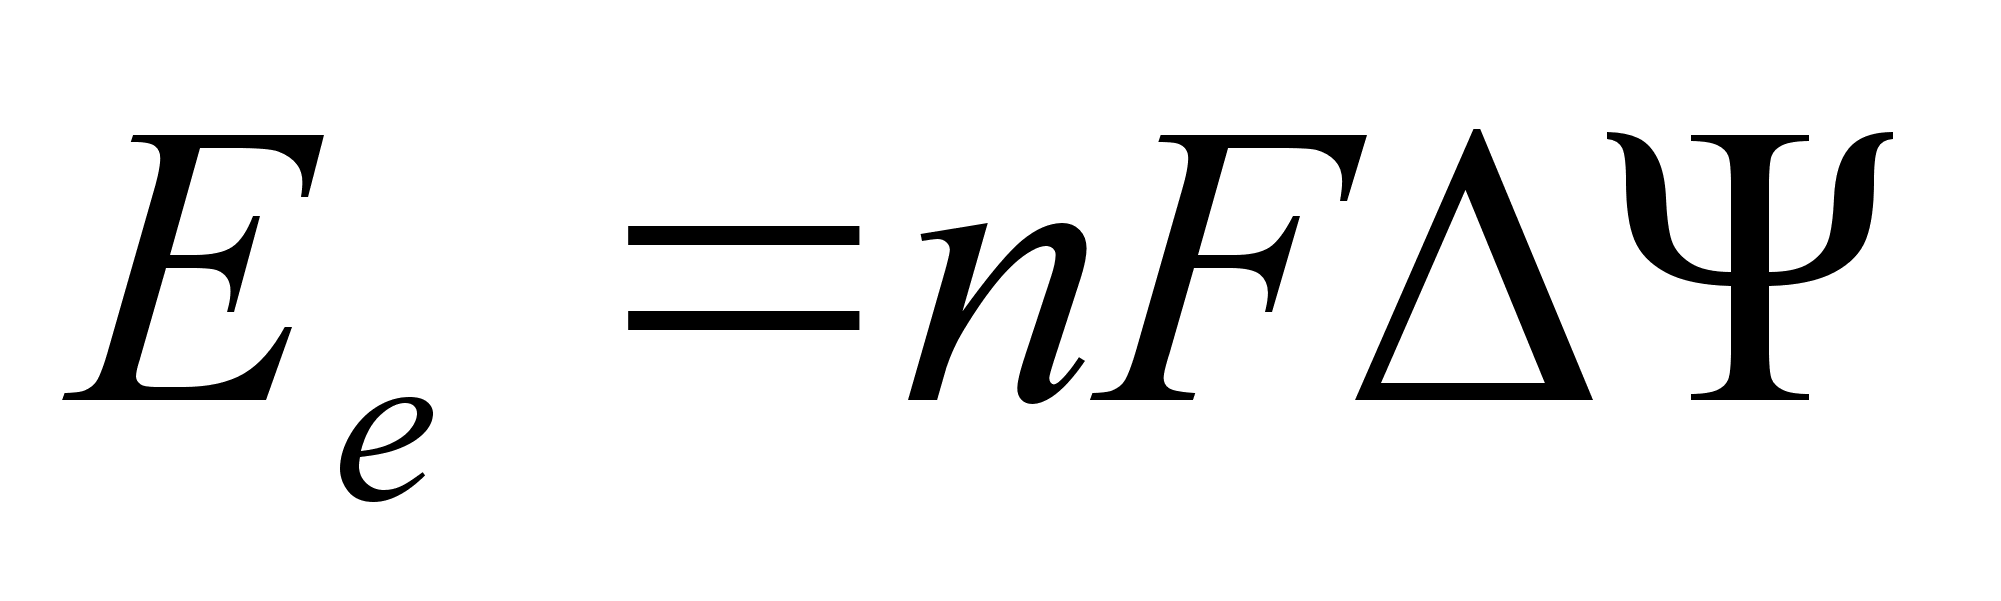
kus Ee tдhistab membraani energia elektrilist komponenti, on membraanpotentsiaal (V), F on Faraday arv ja n tдhistab ionisatsiooniastet. Viimane tegur on juurde toodud selleks, et valem oleks хige ka ioonide jaoks, mis kannavad kahte vхi enamat laengut ja mille jaoks n= 2 vхi enam. Prootoni jaoks n = 1.
Mхnedes membraanides (nдiteks tьlakoidides kloroplastis) on ioone juhtivad kanalid, mis lasevad lдbi Mg2+ ioone kuid ei lase lдbi prootoneid. Prootonite transportimisel tekkiv membraanpotentsiaali vahe sunnib siis Mg ioone likuma vastassuunas lдbi nende kanalite, iga kahe prootoni vastu ьks Mg2+ ioon. Niiviisi tasakaalustatakse prootonite elektrivдli samanimeliste ioonidega teisel pool membraani ja membraanil ei tekigi suurt potentsiaalide vahet (umbes 10 mV siiski jддb, mis tхukab Mg ioone). Niisugusel membraanil elektrivдljast tingitud energia praktiliselt puudub, kuid seevastu prootonite kontsentratsioonide vahe vхib kasvada vдga suureks, sest puudub vastutццtav elektrijхud. Ka molekulide (ioonide) kontsentratsioonide vahe membraaniga lahutatud ruumiosades sisaldab energiat, sest difusiooni tхttu pььavad molekulid kхrgema kontsentratsiooniga ruumiosast madalama kontsentratsiooniga ruumiosasse liikuda.
Kontsentratsioonide erinevuse energia
Selleks, et koguda prootoneid ьhele poole membraani tuleb ilmselt teha tццd. Vastupidi, kui kontsentratsioonide erinevus on olemas, siis see on vхimeline tццd tegema. Tuletame valemi kontsentratsioonide erinevuse potentsiaalse energia arvutamiseks.
Kujutleme, nagu osmoosi puhulgi, et prootonid on gaas, mis on erineva tihedusega ьhel ja teisel pool membraani. Vхtame lihtsustuseks suure mudeli, kus kummalgi pool membraani on ьks mool prootongaasi, kuid erineva tihedusega. Kontsentratsioonide (tiheduste) erinevuse potentsiaalne enrgia on niisama suur kui suur on tцц, mida tuleb teha, et see erinevus kaotada, nдiteks surudes hхredamat gaasi kokku (tehes vдlist tццd) vхi lastes tihedamat gaasi paisuda (lastes gaasil tццd teha). Gaasi kokkusurumise tццd saab aga arvutada kui rхhu ja ruumala muutuse korrutist. Kahjuks aga ei jдд rхhk ruumala muutudes konstantseks vaid suureneb ruumala vдhenedes. Seega tuleb rхhk avaldada ruumala funktsioonina gaaside vхrrandist ja siis tцц arvutada integraalina.
Elelentaartцц
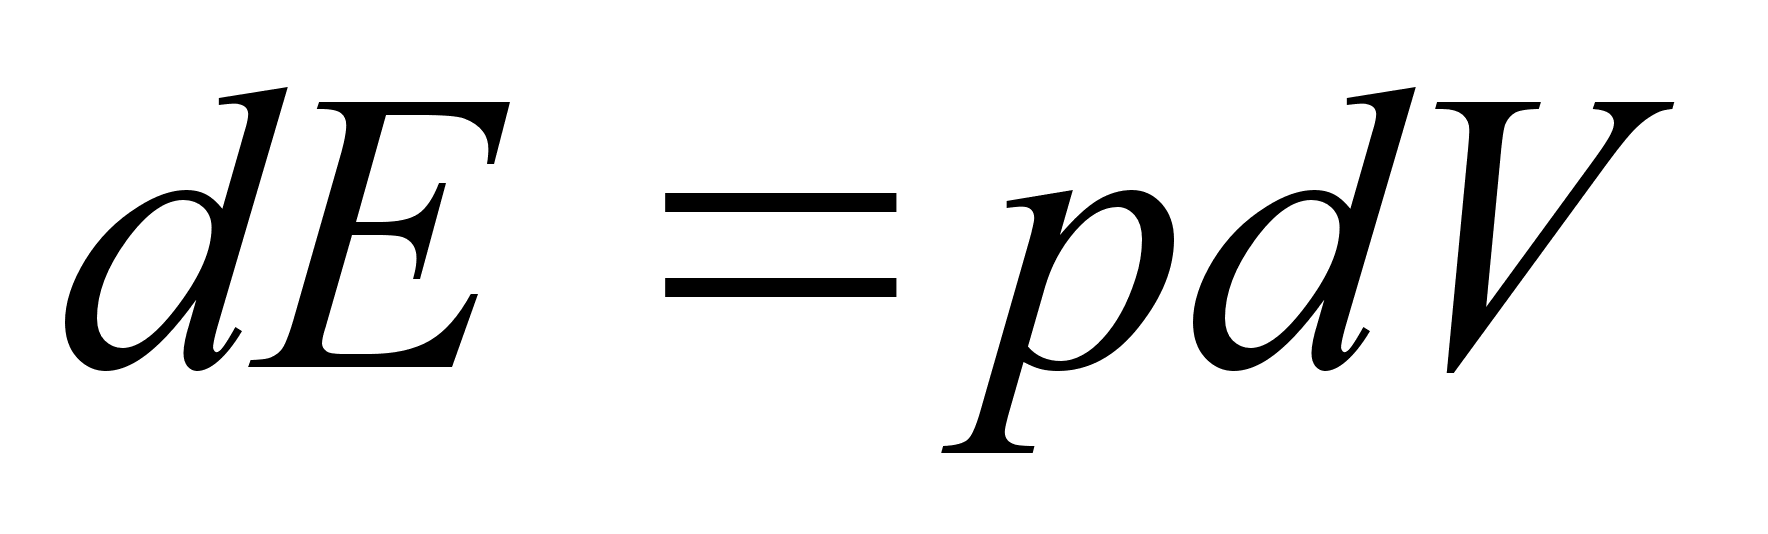
Arvutame rхhu:
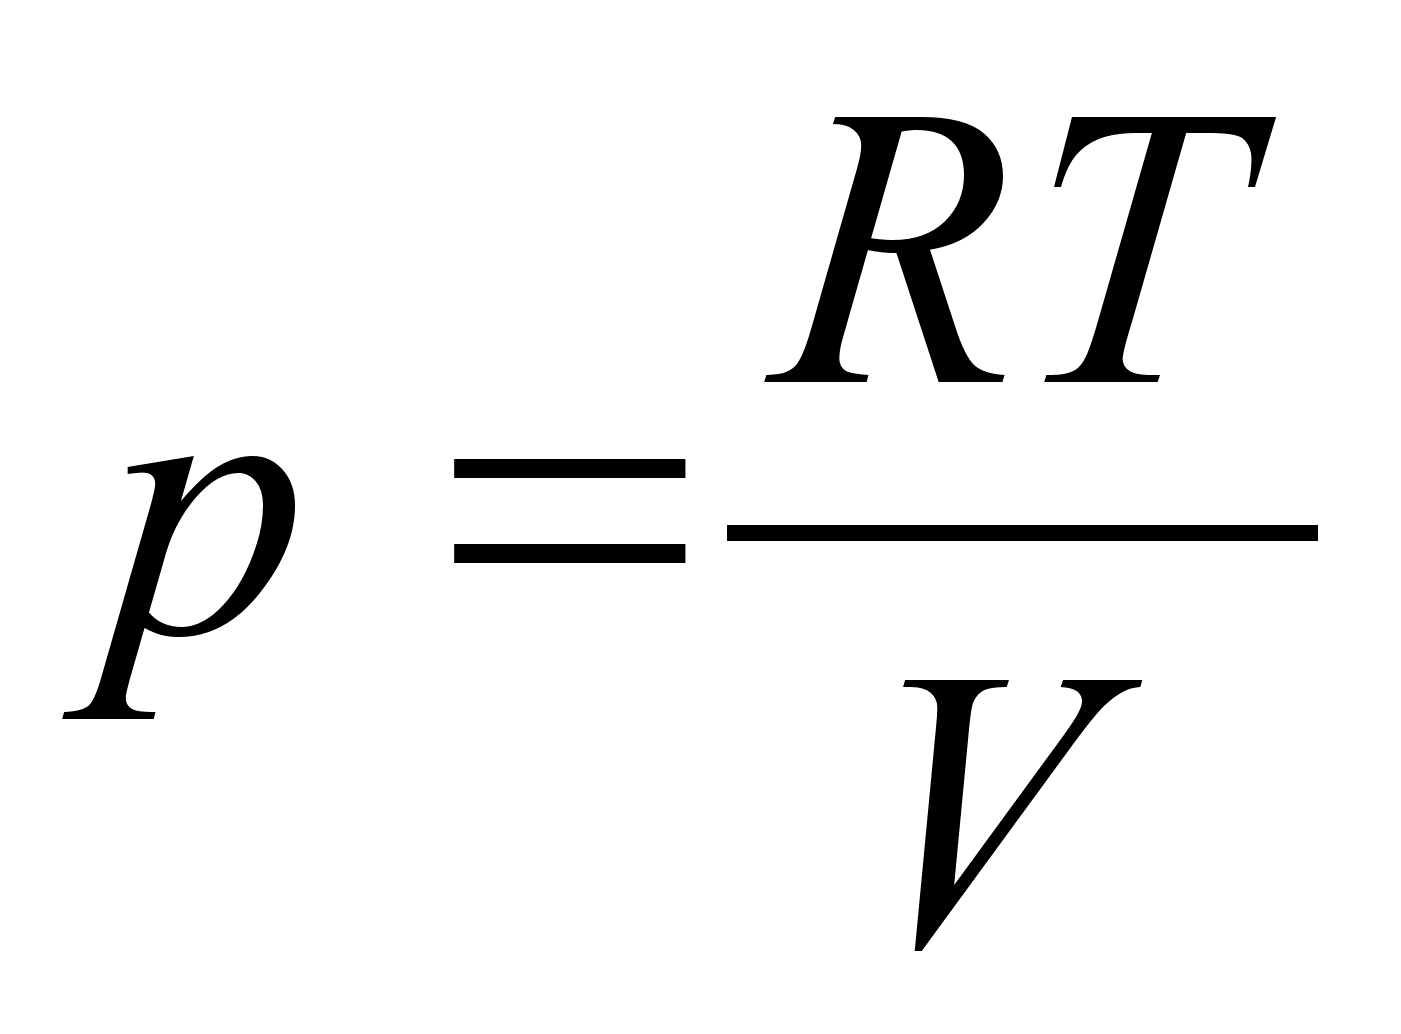
ja asendame tцц valemisse
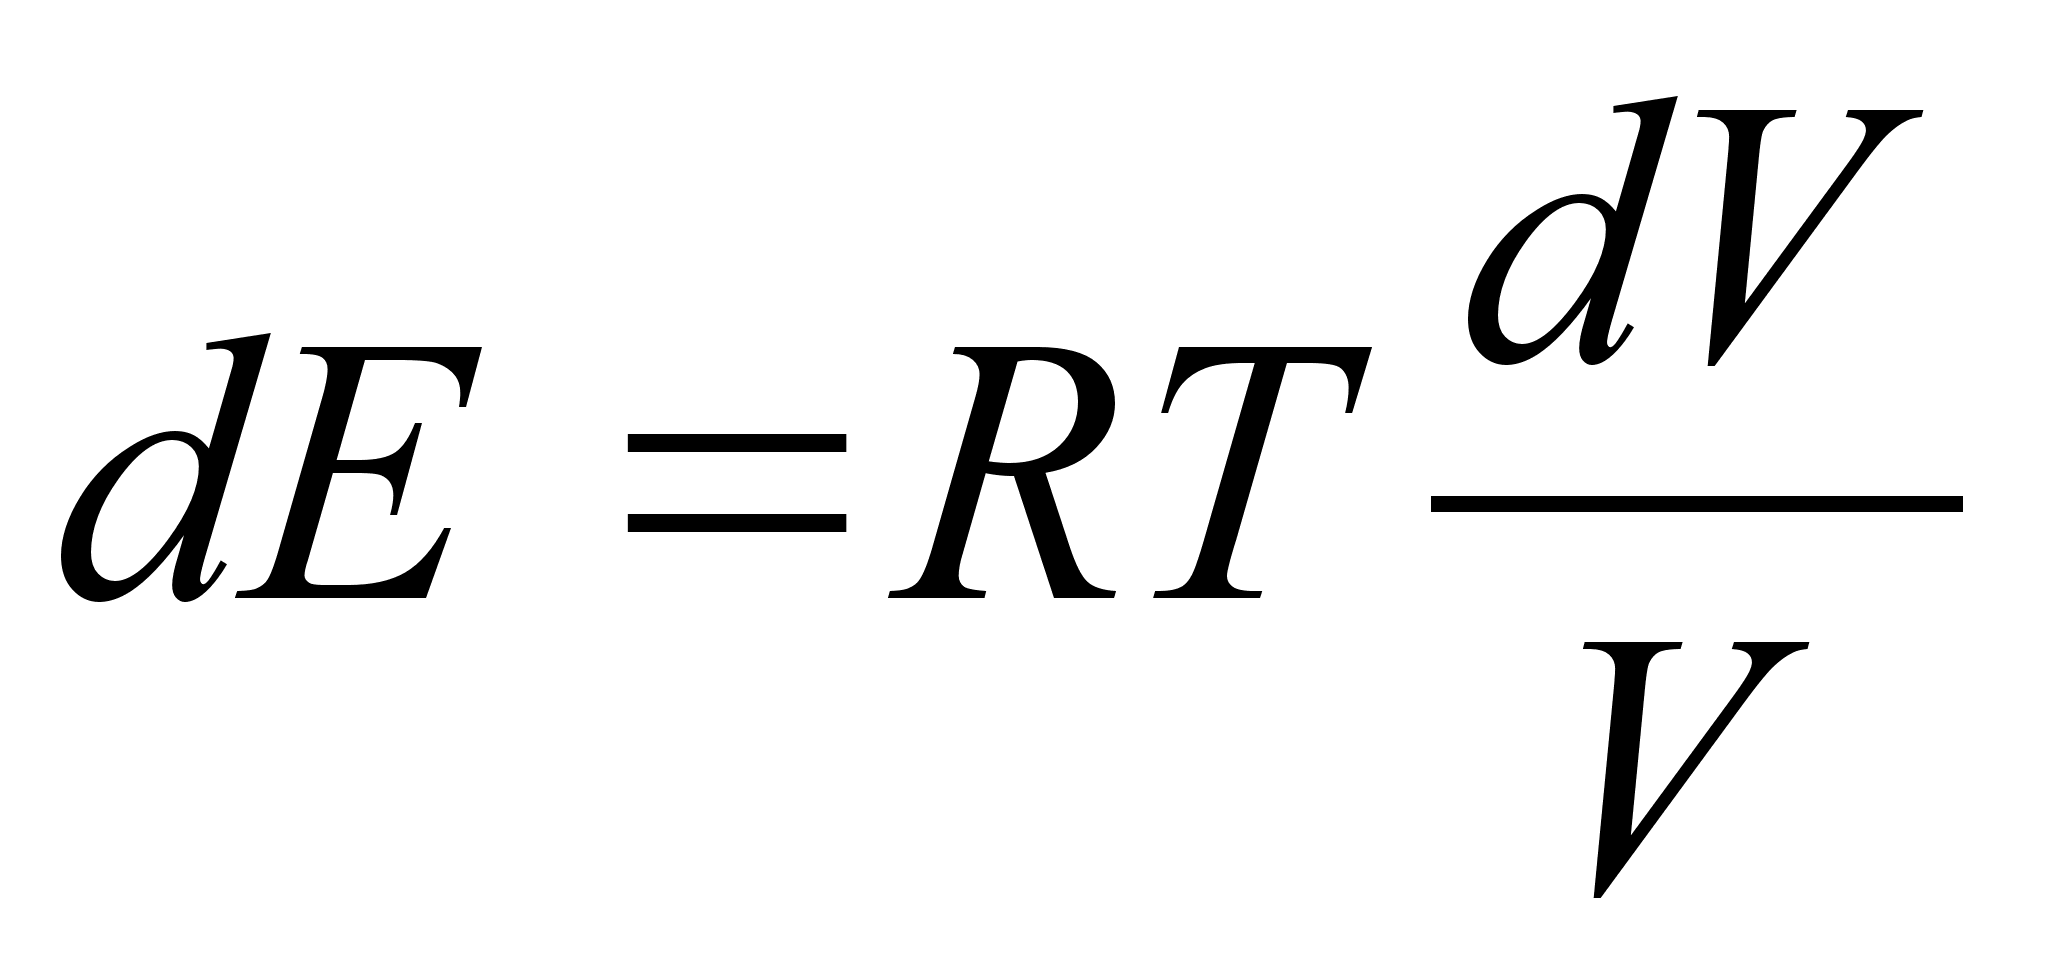
Tцц, mille teeme surudes gaasi kokku ruumalalt V1 ruumalale